



-
金线莲Anoectochilus roxburghii是兰科Orchidaceae濒危药用植物,对急慢性肝炎、高血压、糖尿病等有疗效,在民间有“药王”“神草”之称[1]。金线莲药理学活性与其特有的活性成分金线莲苷密切相关,该成分已获国家药品监督管理局一类新药临床批件(批件号为2023LP01541)。金线莲是工业化制备金线莲苷的唯一药源。同时,金线莲株型小巧,叶片卵圆形或卵形,颜色艳丽[2−3],是制备观赏盆景的材料。然而,金线莲野生资源濒危,人工种植金线莲产量和质量不稳定[4−9],不能为工业化生产金线莲苷提供优质药源,也无法持续为盆景制作提供优色材料,从而遏制了金线莲产业的发展。实现优质优色金线莲精准育种是缓解这一困境的必要途径。栽培模式是影响中药材优质、优色品质形成的重要因素[10−11]。然而,金线莲主要栽培模式(组织培养、林下种植及大棚种植)对金线莲表型特征、金线莲苷积累及叶片呈色的影响尚不明确。
金线莲苷(化学名为3R-β-D-吡喃葡萄糖氧基-γ-丁内酯)是金线莲特征性活性成分[12−15],是治疗多种肝病的有效药物。金线莲苷产量极低,标准品价格高达3.5~5.0万元·g−1,限制了其广泛应用。从金线莲中分离、提取是工业化生产金线莲苷的唯一方法。金线莲苷差向异构体,化学名为3S-β-D-吡喃葡萄糖氧基-γ-丁内酯,与金线莲苷具有相同的分子量,相似的理化特性,不同的药理学活性[16],是金线莲苷制备过程难以去除的杂质[17]。根据金线莲中金线莲苷及其差向异构体质量分数将金线莲分为金线莲苷型和混合型2种化学型[18]。混合型金线莲地上部分和金线莲苷型金线莲全草有望成为工业化制备金线莲苷的优质药源[18−19]。然而,目前尚不明确组织培养、林下种植和大棚种植如何影响金线莲化学型、金线莲苷质量分数及分布模式。金线莲叶片正面墨绿色,具金红色带有绢丝光泽的网状网脉,背面淡紫红色。金线莲叶片颜色具有“一品系一色泽”特征,并呈现“上深下浅”模式[18]。然而,目前也不清楚组织培养、林下种植和大棚种植如何影响金线莲叶片呈色。
为解析金线莲主要栽培模式对金线莲表型和品质的影响,本研究整合表型、高效液相色谱-蒸发光散射检测器(HPLC-ELSD)和代谢组学分析,评价组织培养、林下种植和大棚种植对金线莲表型、化学型、金线莲苷质量分数及其分布模式的影响。研究结果可为金线莲质量评价提供基础数据,为基于优质优色质量预测的金线莲精准育种奠定基础。
-
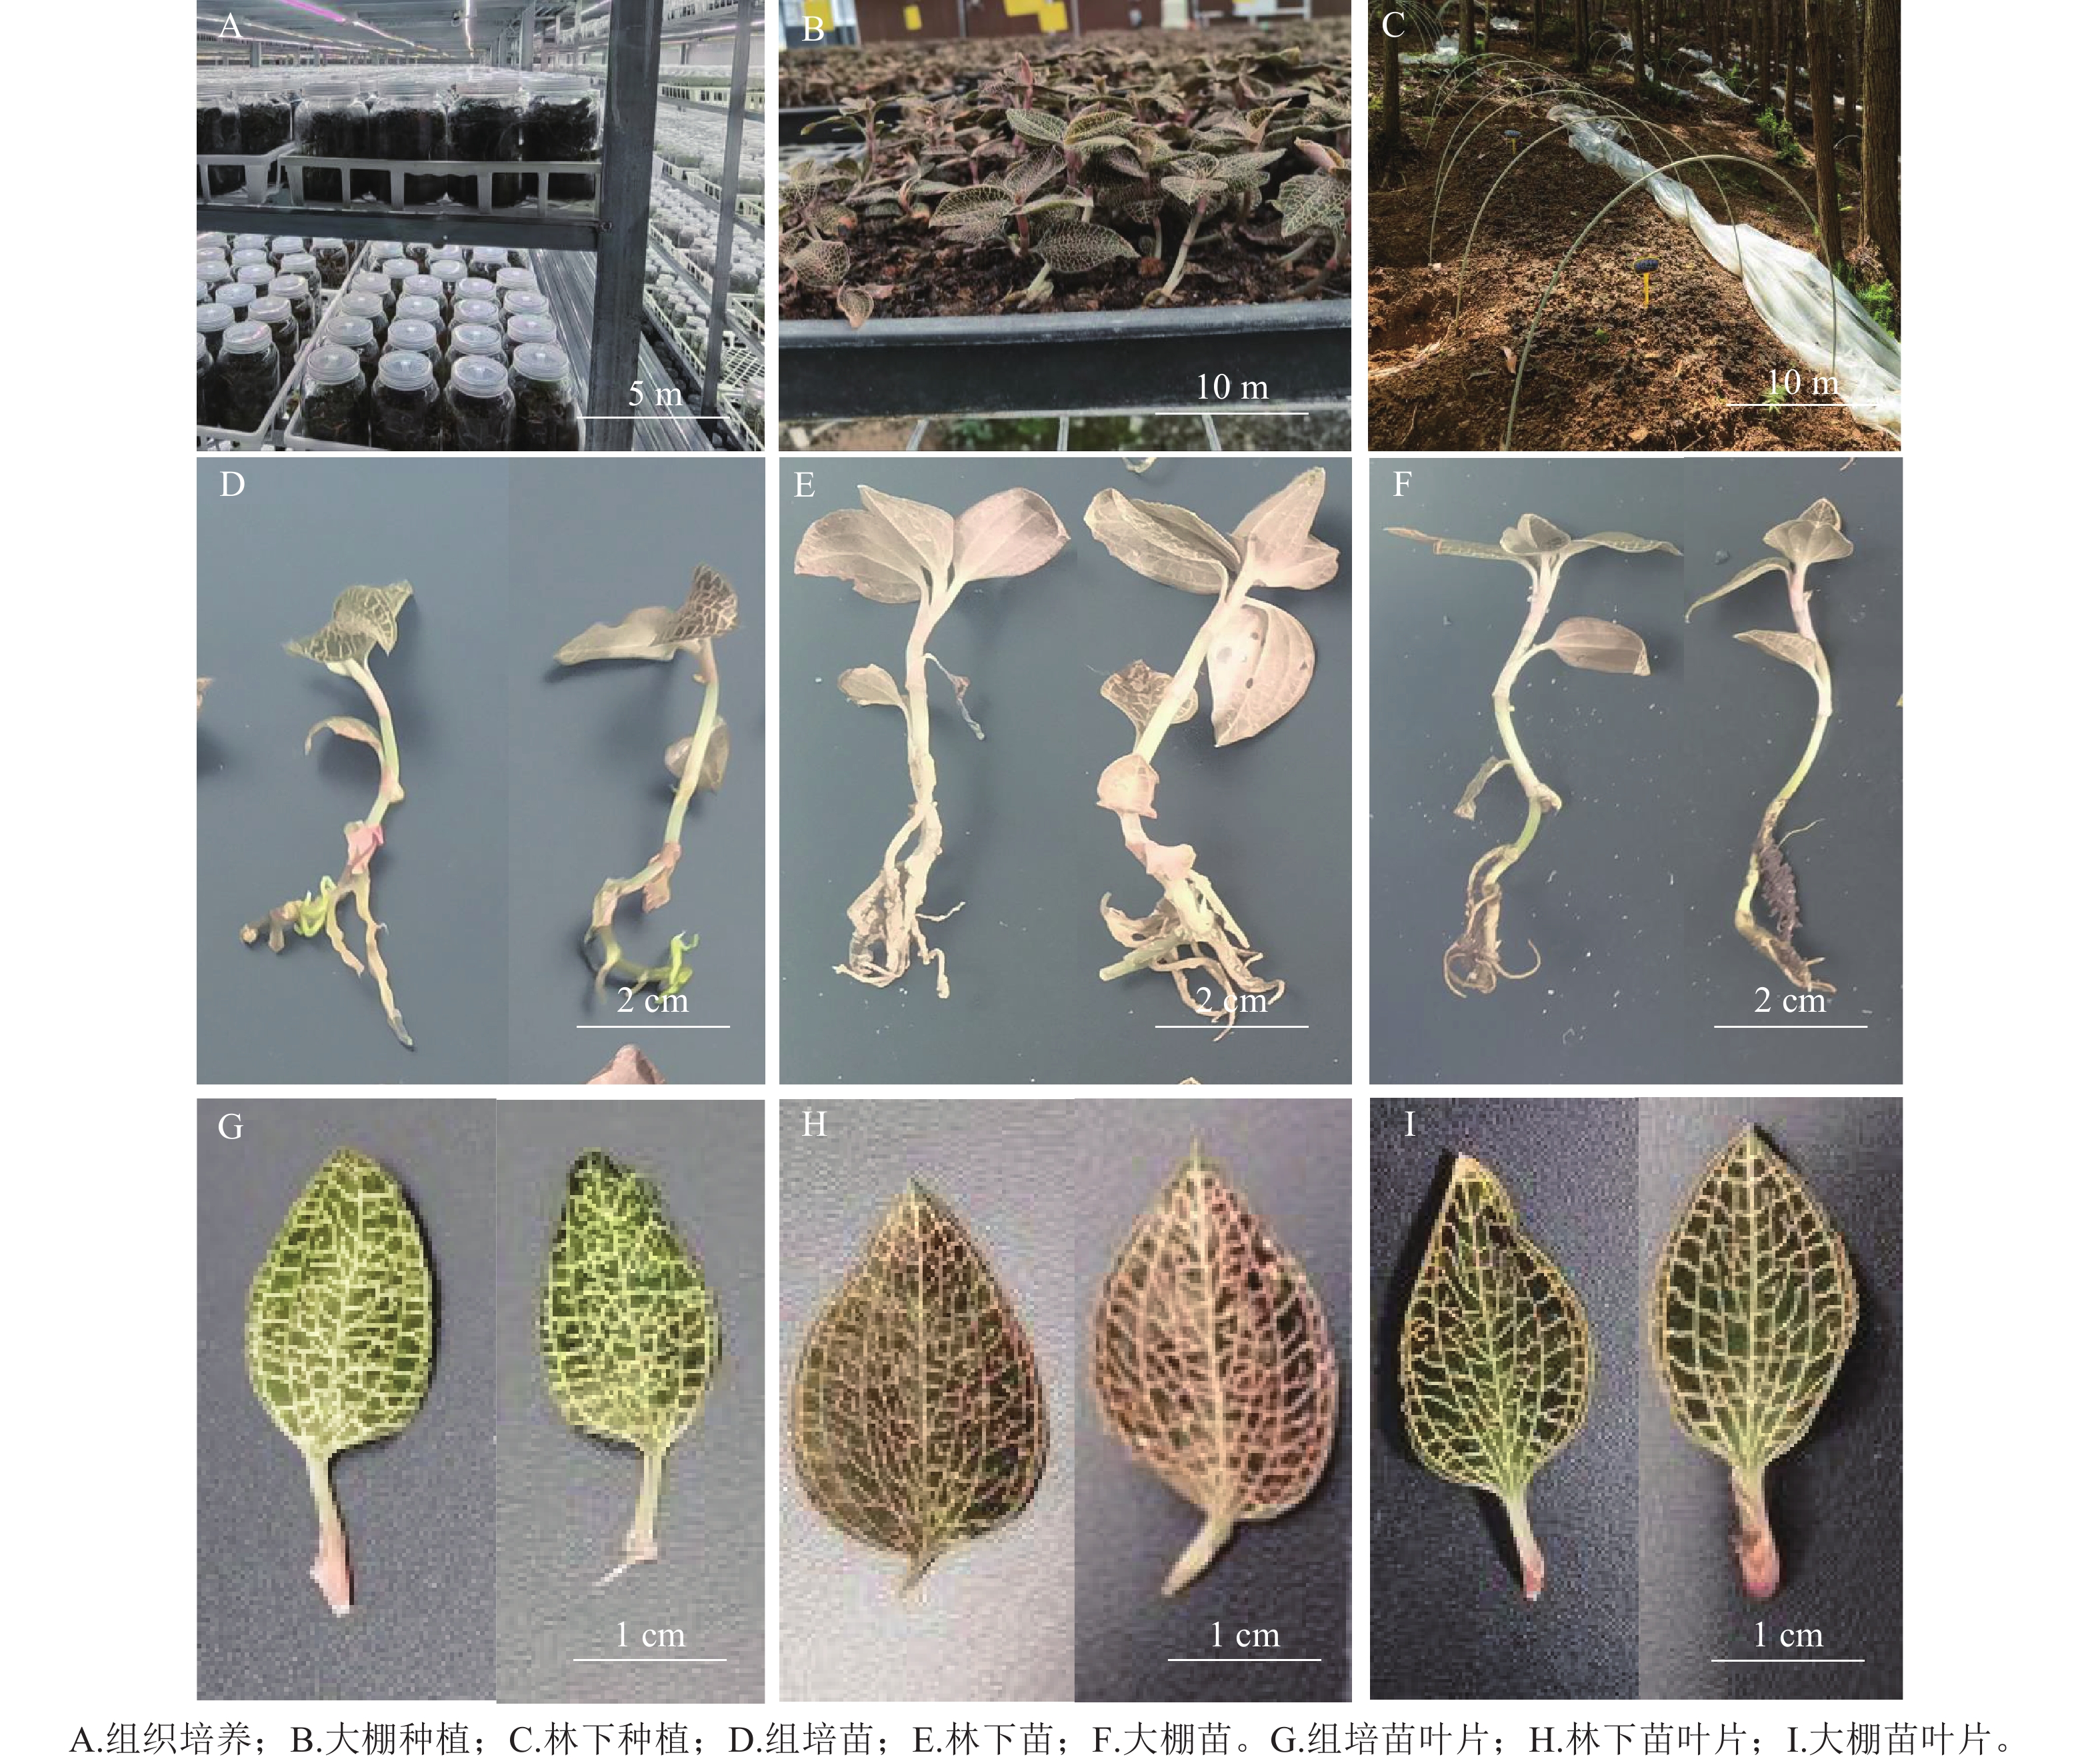
以苗高为5~6 cm的尖叶品系金线莲瓶苗(购自浙江省金华市荆龙生物科技有限公司)为种苗,分别经组织培养(图1A)、大棚种植(图1B)和林下种植(图1C) 3个月后,获组培苗、林下苗和大棚苗(图1D~F)。组织培养在浙江农林大学中药学科组培室(30.15°N, 119.43°E)进行,培养条件:温度为(25±2) ℃、光周期为16 h光照/8 h黑暗,相对湿度为75 %。大棚种植在浙江农林大学百草园(30.15°N,119.43°E),种植条件:气温为(25±2) ℃,光照条件为自然光加适当补光至光周期为16 h光照/8 h黑暗,相对湿度为75 %,用兰科植物专用土穴盘种植。林下种植在浙江省杭州市杨村桥金线莲种植基地(29.57°N,119.45°E),种植条件:白天及晴天时,杉木Cunninghamia lanceolata林下自然光照及温度,夜间低温及雨天通过覆盖塑料膜控制温度及雨水量,杉木林下原土种植。3种栽培模式在2024年及2025年4月中旬至6月中旬各重复1次,共2次。采集组培苗、大棚苗和林下苗用于表型分析。采集金线莲全草、根、茎和叶,用于测定金线莲苷及其差向异构体质量分数。采集叶片用于代谢组学分析。
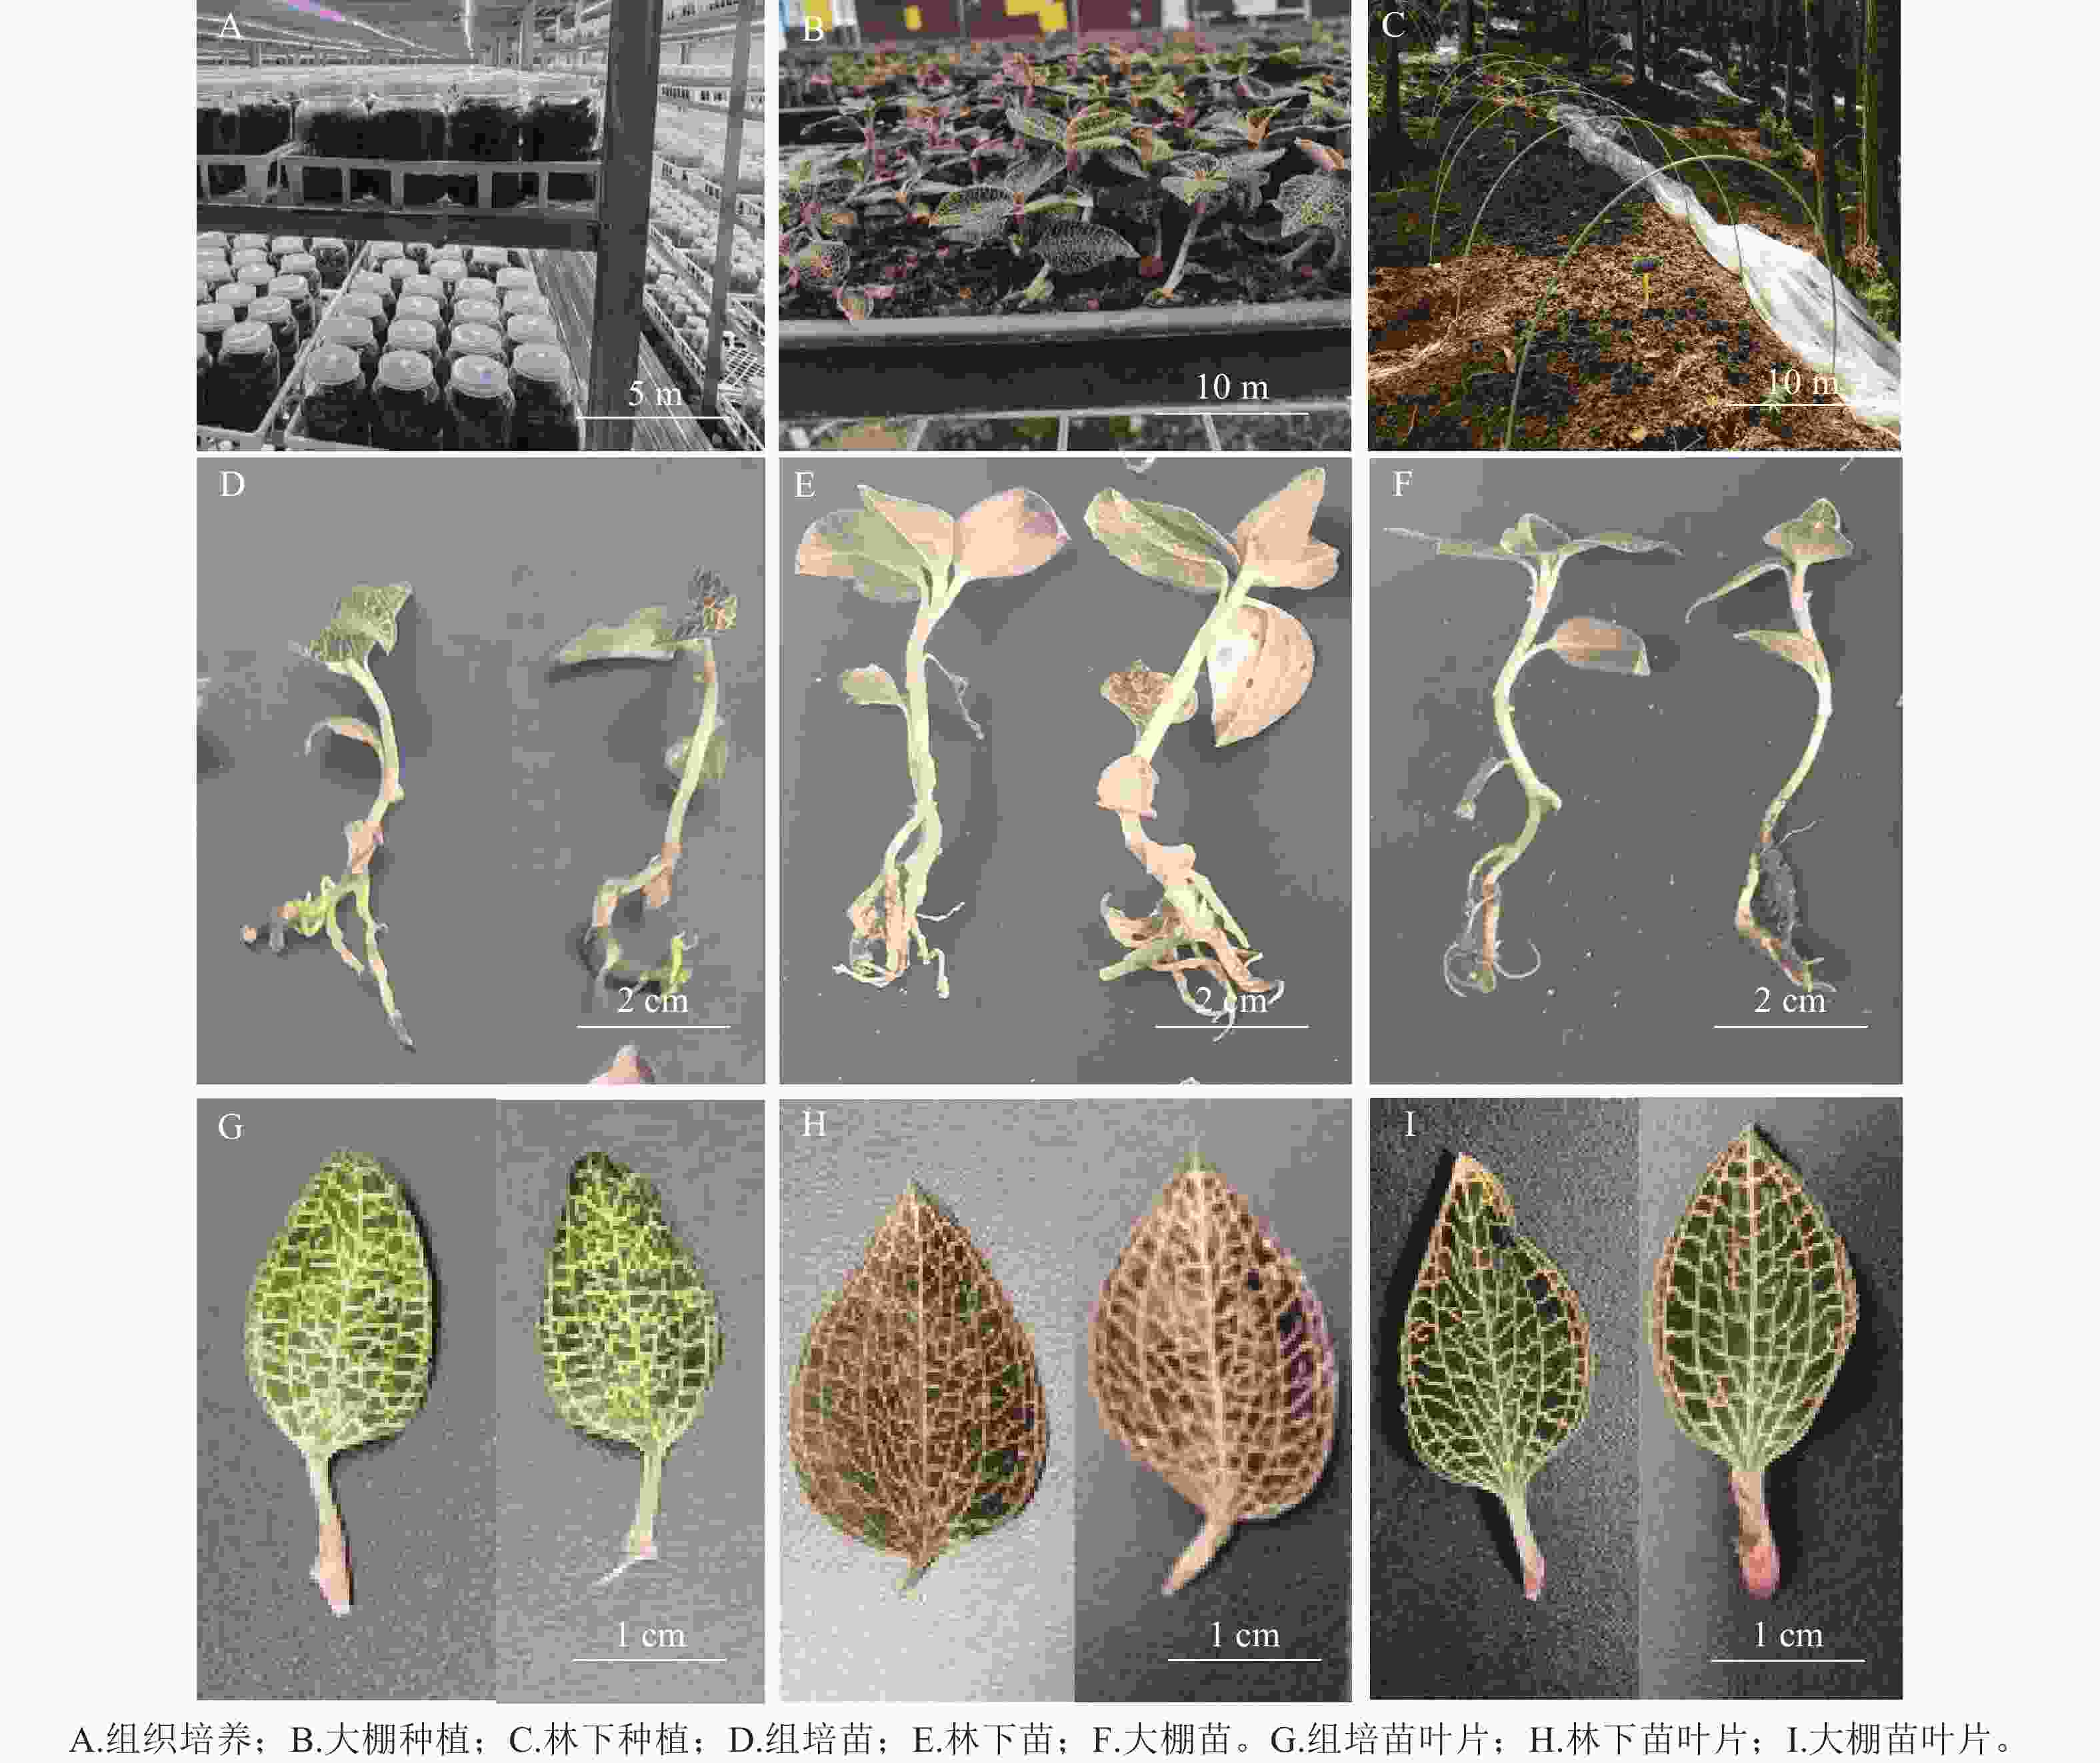
图 1 金线莲栽培模式、植株及叶片表型
Figure 1. Cultivation modes, plant and leaf phenotypes of A. roxburghii
-
观察和测定组培苗、大棚苗和林下苗单株生物量、茎长和茎直径、叶片数目和叶片面积、根数和根长等指标。利用显微镜分析茎段纵切面和叶片下表皮细胞形态,并记录细胞长度、细胞宽度、单位面积内表皮细胞的数量。每种栽培模式取样10株用于表型分析。观察金线莲叶片表面颜色,并利用ImageJ软件中红色(R)、绿色(G)和蓝色(B)检测方法对叶片表面颜色进行数值化分析,叶片表面颜色值= 0.299R+0.587G+0.114B,叶片表面非绿色颜色值= 0.299R+0.114B。每种栽培模式取30片叶片进行分析。
-
金线莲中金线莲苷及差向异构体的分离、提取及质量分数测定参照本课题组已发表的方法[18-19]。金线莲苷及其差向异构体标准曲线参照已发表文献[19]。
-
非靶向代谢组利用液相色谱-质谱联用(LC-MS,LC, Vanquish UHPLC, Thermo Fisher; MS, Q Exactive™ HF-X, Thermo Fisher)检测,由北京诺禾致源科技股份有限公司完成。称取样本(100 mg)置于500 µL的80%甲醇中匀浆,冰浴5 min,15 000 r·min−1离心20 min。上清液经0.22 µm滤膜过滤后,备用。所有样品重复6次。LC-MS分析采用电喷雾电离正离子(ESI+)和电喷雾电离负离子(ESI−)模式。色谱分离条件:Hypersil Gold C18色谱柱(100 mm×2.1 mm, 1.9 μm),柱温为 40 ℃,进样体积为2 µL,流速为 0.2 mL·min−1。ESI+离子模式用0.1%甲酸水(A)和甲醇(B)梯度洗脱,ESI−离子模式用5 mmol·L−1醋酸铵(pH 9.0)(A)和甲醇(B)梯度洗脱。ESI+和ESI−离子模式洗脱条件:2% B (0~1.5 min),2%~85% B (1.5~3 min),85%~100% B (3~10 min),100%~2% B (10~11 min),2% B (11~12 min)。电喷雾电离(ESI)源设置:喷雾电压为3.5 kV,鞘气流速为3 510 L·min−1,辅助气流速为10 L·min−1,离子传输管温度为320 ℃,辅助气加热器温度为350 ℃。质谱(MS)扫描范围[ 质荷比(m/z)]为100~1 500,原始LC-MS/MS数据利用Compound Discoverer 3.1软件进行峰对齐、提取与定量,参数设置:保留时间偏差为0.2 min和质量偏差为5×10⁻⁶ 进行峰对齐,设置质量偏差为510−6、信号强度偏差30%、信噪比3、最小信号强度、加和离子等信息进行峰提取和代谢物定量。整合目标离子,经与mzCloud、mzVault和Masslist数据库比对对定量结果进行标准化处理,获得代谢物的鉴定和相对定量结果。使用京都基因与基金组百科全书(Kyoto Encyclopedia of Genes and Genomes,KEGG)数据库、人类代谢组数据库(Human Metabolome Database,HMDB)和脂质图谱数据库(Lipid Metabolites and Pathways Strategy,LIPID MAPS)进行注释。使用metaX对数据转换后进行主成分分析(principal components analysis,PCA)和偏最小二乘法判别分析(partial least squares discriminant analysis,PLS-DA),获得代谢物变量重要性投影值(关于VIP(variable importance in projection,VIP)。计算2组间代谢物差异倍数(fold change,FC),并通过t检验计算2组间各代谢物差异显著性(P),筛选差异代谢物(DAMs)参数为:VIP>1,P<0.05, 同时满足FC≥1.5 或 FC≤0.67,其中 VIP>1 保证代谢物具备区分2组样本的模型分类能力;P<0.05 保障差异的统计学可信度;FC阈值用于筛选具有显著生物学变化幅度的代谢物,最终获得DAMs。绘制 DAMs 交集韦恩图,解析其在各比较组中的分布特征。
-
宏观和微观表型指标、金线莲苷及其差向异构体质量分数用平均值±标准差表示,利用SPSS 27.0分析样品差异显著性。
-
与组培苗相比,林下苗和大棚苗植株高大,茎较长,叶片面积大,根数多,根更长(图1),且林下苗这些表型略优于大棚苗。表型指标测定结果与观察结果一致,林下苗和大棚苗单株生物量、茎长、叶片面积和根长均显著(P<0.05)高于组培苗(表1),说明植株大小、茎长、叶片面积、根长是区分林下苗、大棚苗和组培苗的重要指标。
表 1 3种栽培模式金线莲表型指标
Table 1. Phenotypic indicators of A. roxburghii under 3 cultivation modes
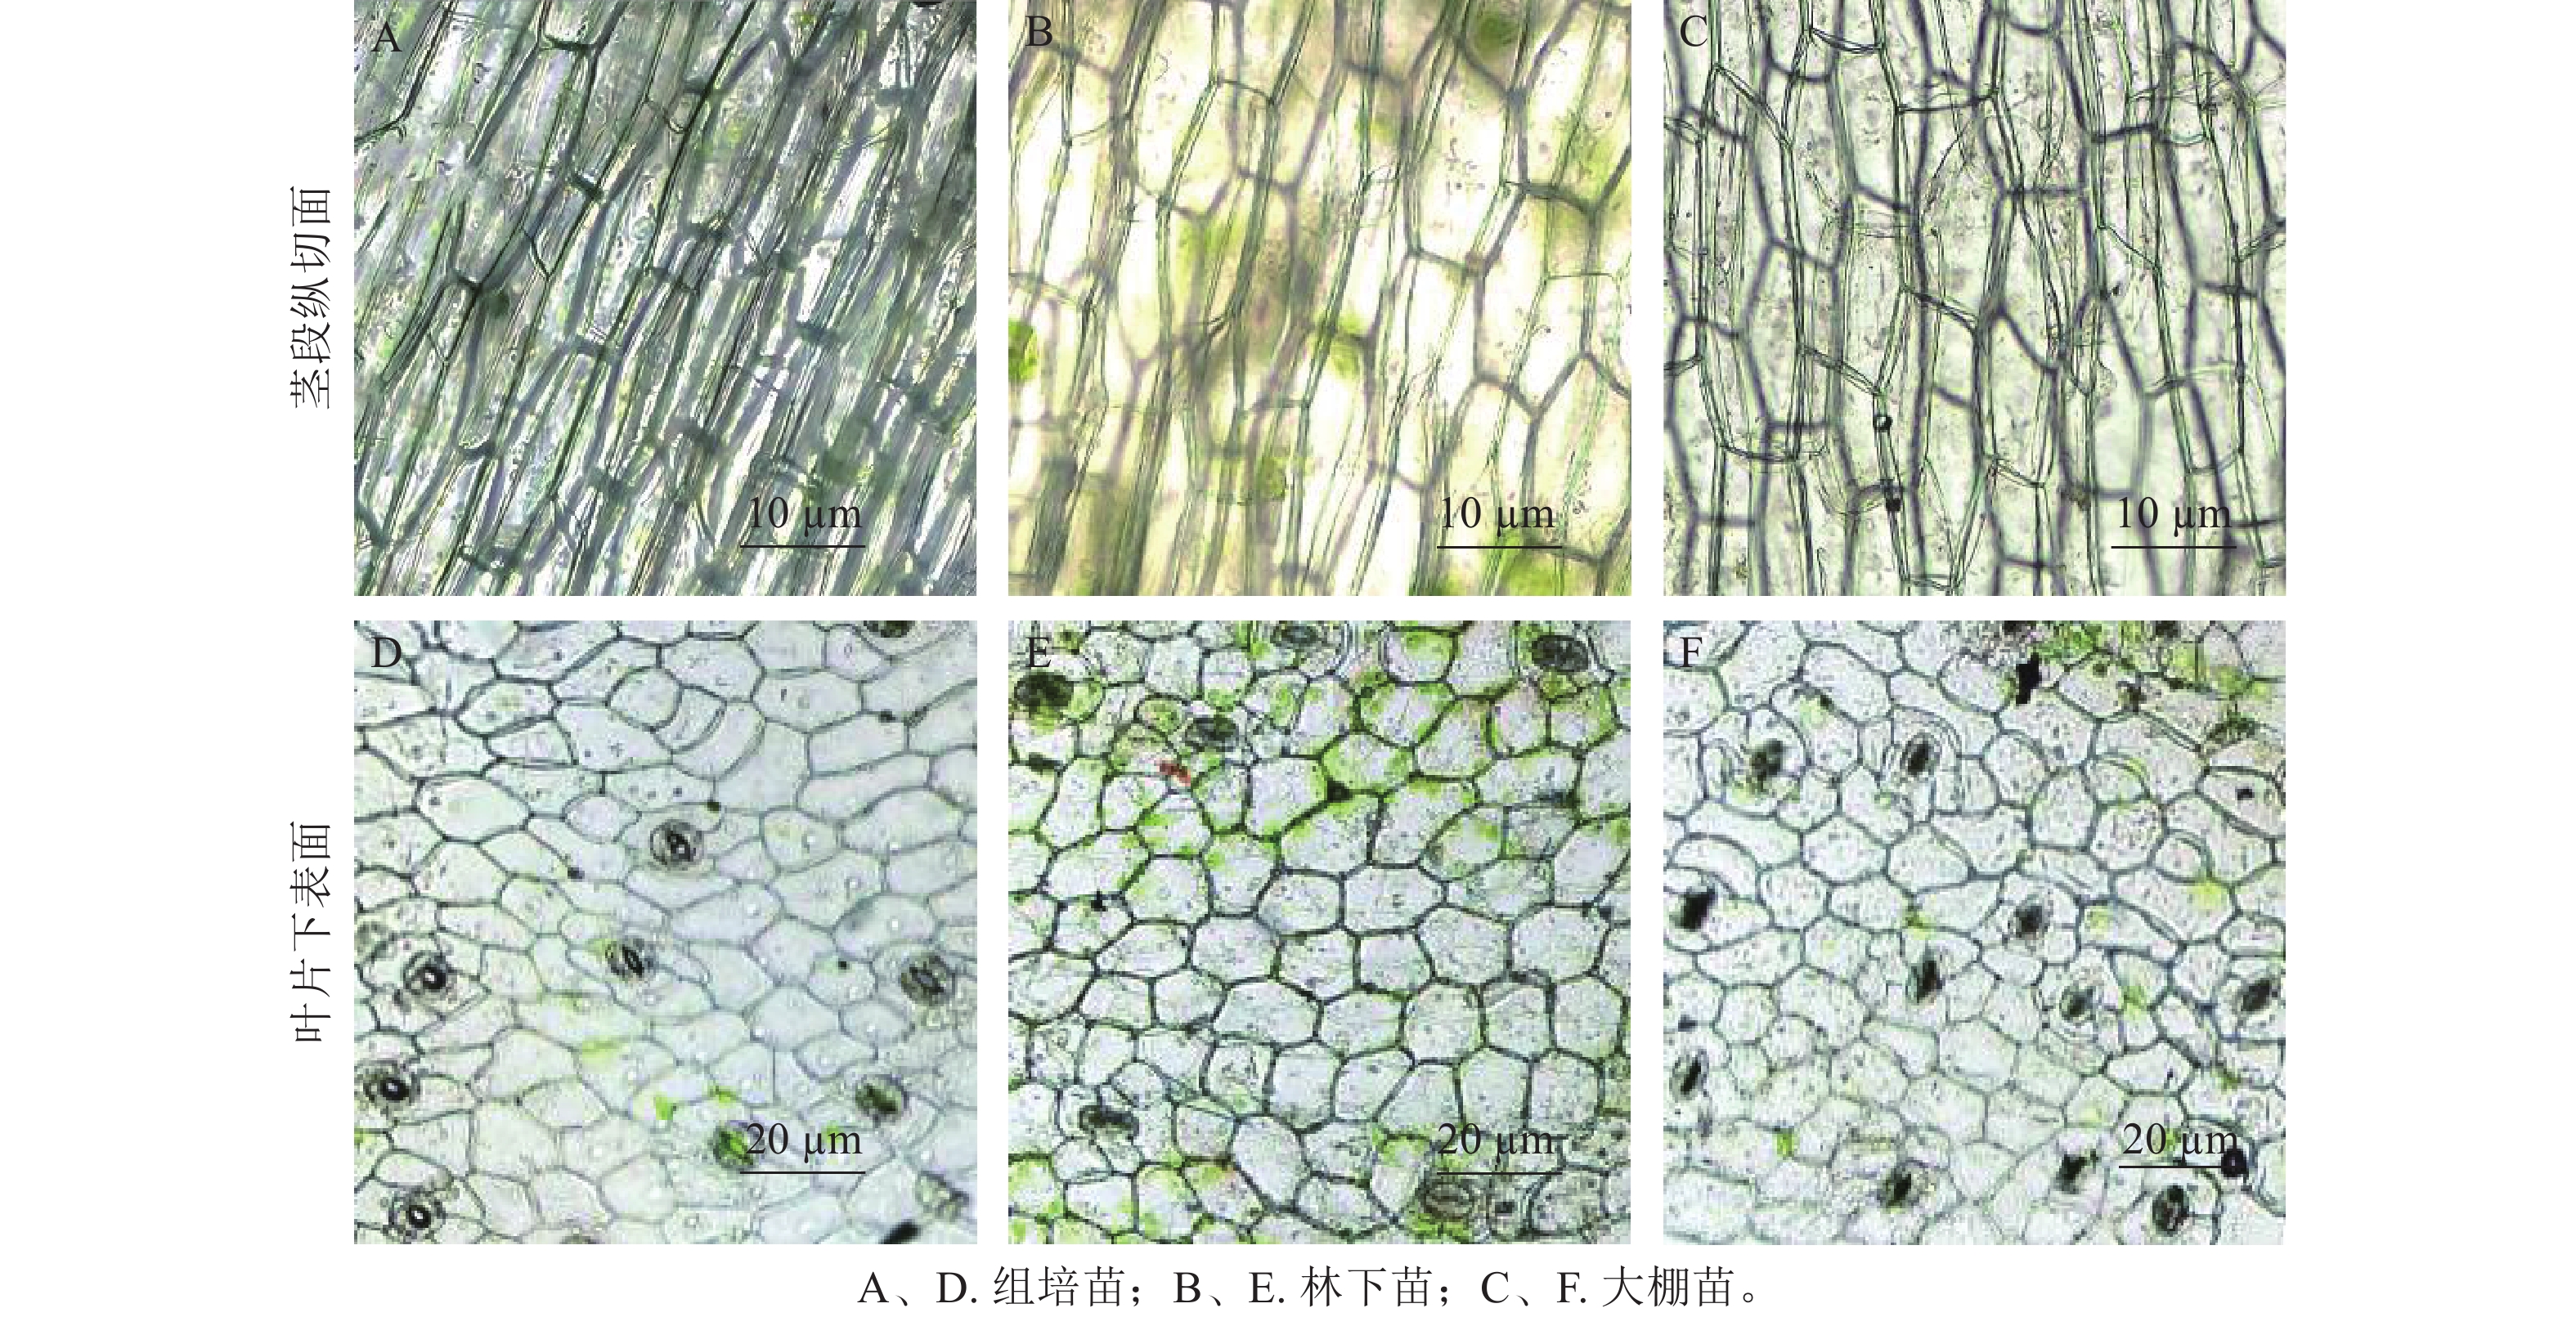
名称 生物量/g 茎长/mm 茎直径/mm 叶片数/张 叶片面面积/cm2 根数/条 根长/mm 组培苗 1.55 ± 0.48 b 117.15 ± 10.05 b 2.80 ± 0.32 a 4.30 ± 0.48 a 15.10 ± 3.12 b 4.20 ± 1.49 a 75.71 ± 14.50 b 林下苗 2.38 ± 0.51 a 135.84 ± 10.53 a 2.78 ± 0.47 a 4.70 ± 0.82 a 22.65 ± 6.36 a 4.90 ± 1.10 a 149.89 ± 78.55 a 大棚苗 2.29 ± 0.38 a 130.89 ± 9.02 a 3.05 ± 0.38 a 4.80 ± 0.63 a 22.60 ± 3.49 a 4.80 ± 0.79 a 129.98 ± 29.24 a 说明:同列不同小写字母表示不同栽培模式间差异显著(P<0.05)。 分析3种栽培模式金线莲茎段纵切面细胞形态可知:组培苗茎段纵切面细胞呈长梭形,细胞壁较厚,细胞间隙小,纵向紧密排列(图2A)。林下苗茎段纵切面细胞呈长纺锤形,细胞壁较薄,细胞间隙略大,纵向疏松排列(图2B)。大棚苗茎段纵切面细胞呈短纺锤形,细胞壁较厚,细胞紧凑排列(图2C)。林下苗单个细胞最长、最宽,大棚苗单个细胞长度、宽度居中,组培苗单个细胞最短、最窄(表2)。该结果与3种栽培模式金线莲茎长和茎直径表型差异一致,说明栽培模式通过影响细胞形态、大小和排列方式影响茎长。分析金线莲叶片下表面表皮细胞形态、气孔形态及气孔数目可知:3种栽培模式金线莲叶片下表面表皮细胞均呈不规则多边形,叶绿体少(图2D~F)。气孔呈卵圆形或椭圆形,由2个肾形保卫细胞和2~3个形态不规则副卫细胞组成,气孔张开或关闭(图2D~F)。其中,组培苗叶片表皮细胞垂周壁较平直,细胞排列紧密且规则,细胞间隙较小(图2D),气孔数目居中(表2)。林下苗叶片表皮细胞垂周壁呈波浪状弯曲,细胞排列较疏松,细胞间隙较大(图2E),气孔数目最少(表2)。大棚苗叶片表皮细胞垂周壁平直,细胞排列疏松且杂乱,细胞间隙明显(图2F),气孔数目最多(表2)。该结果说明栽培模式通过影响表皮细胞形态、大小和排列方式影响叶片面积。
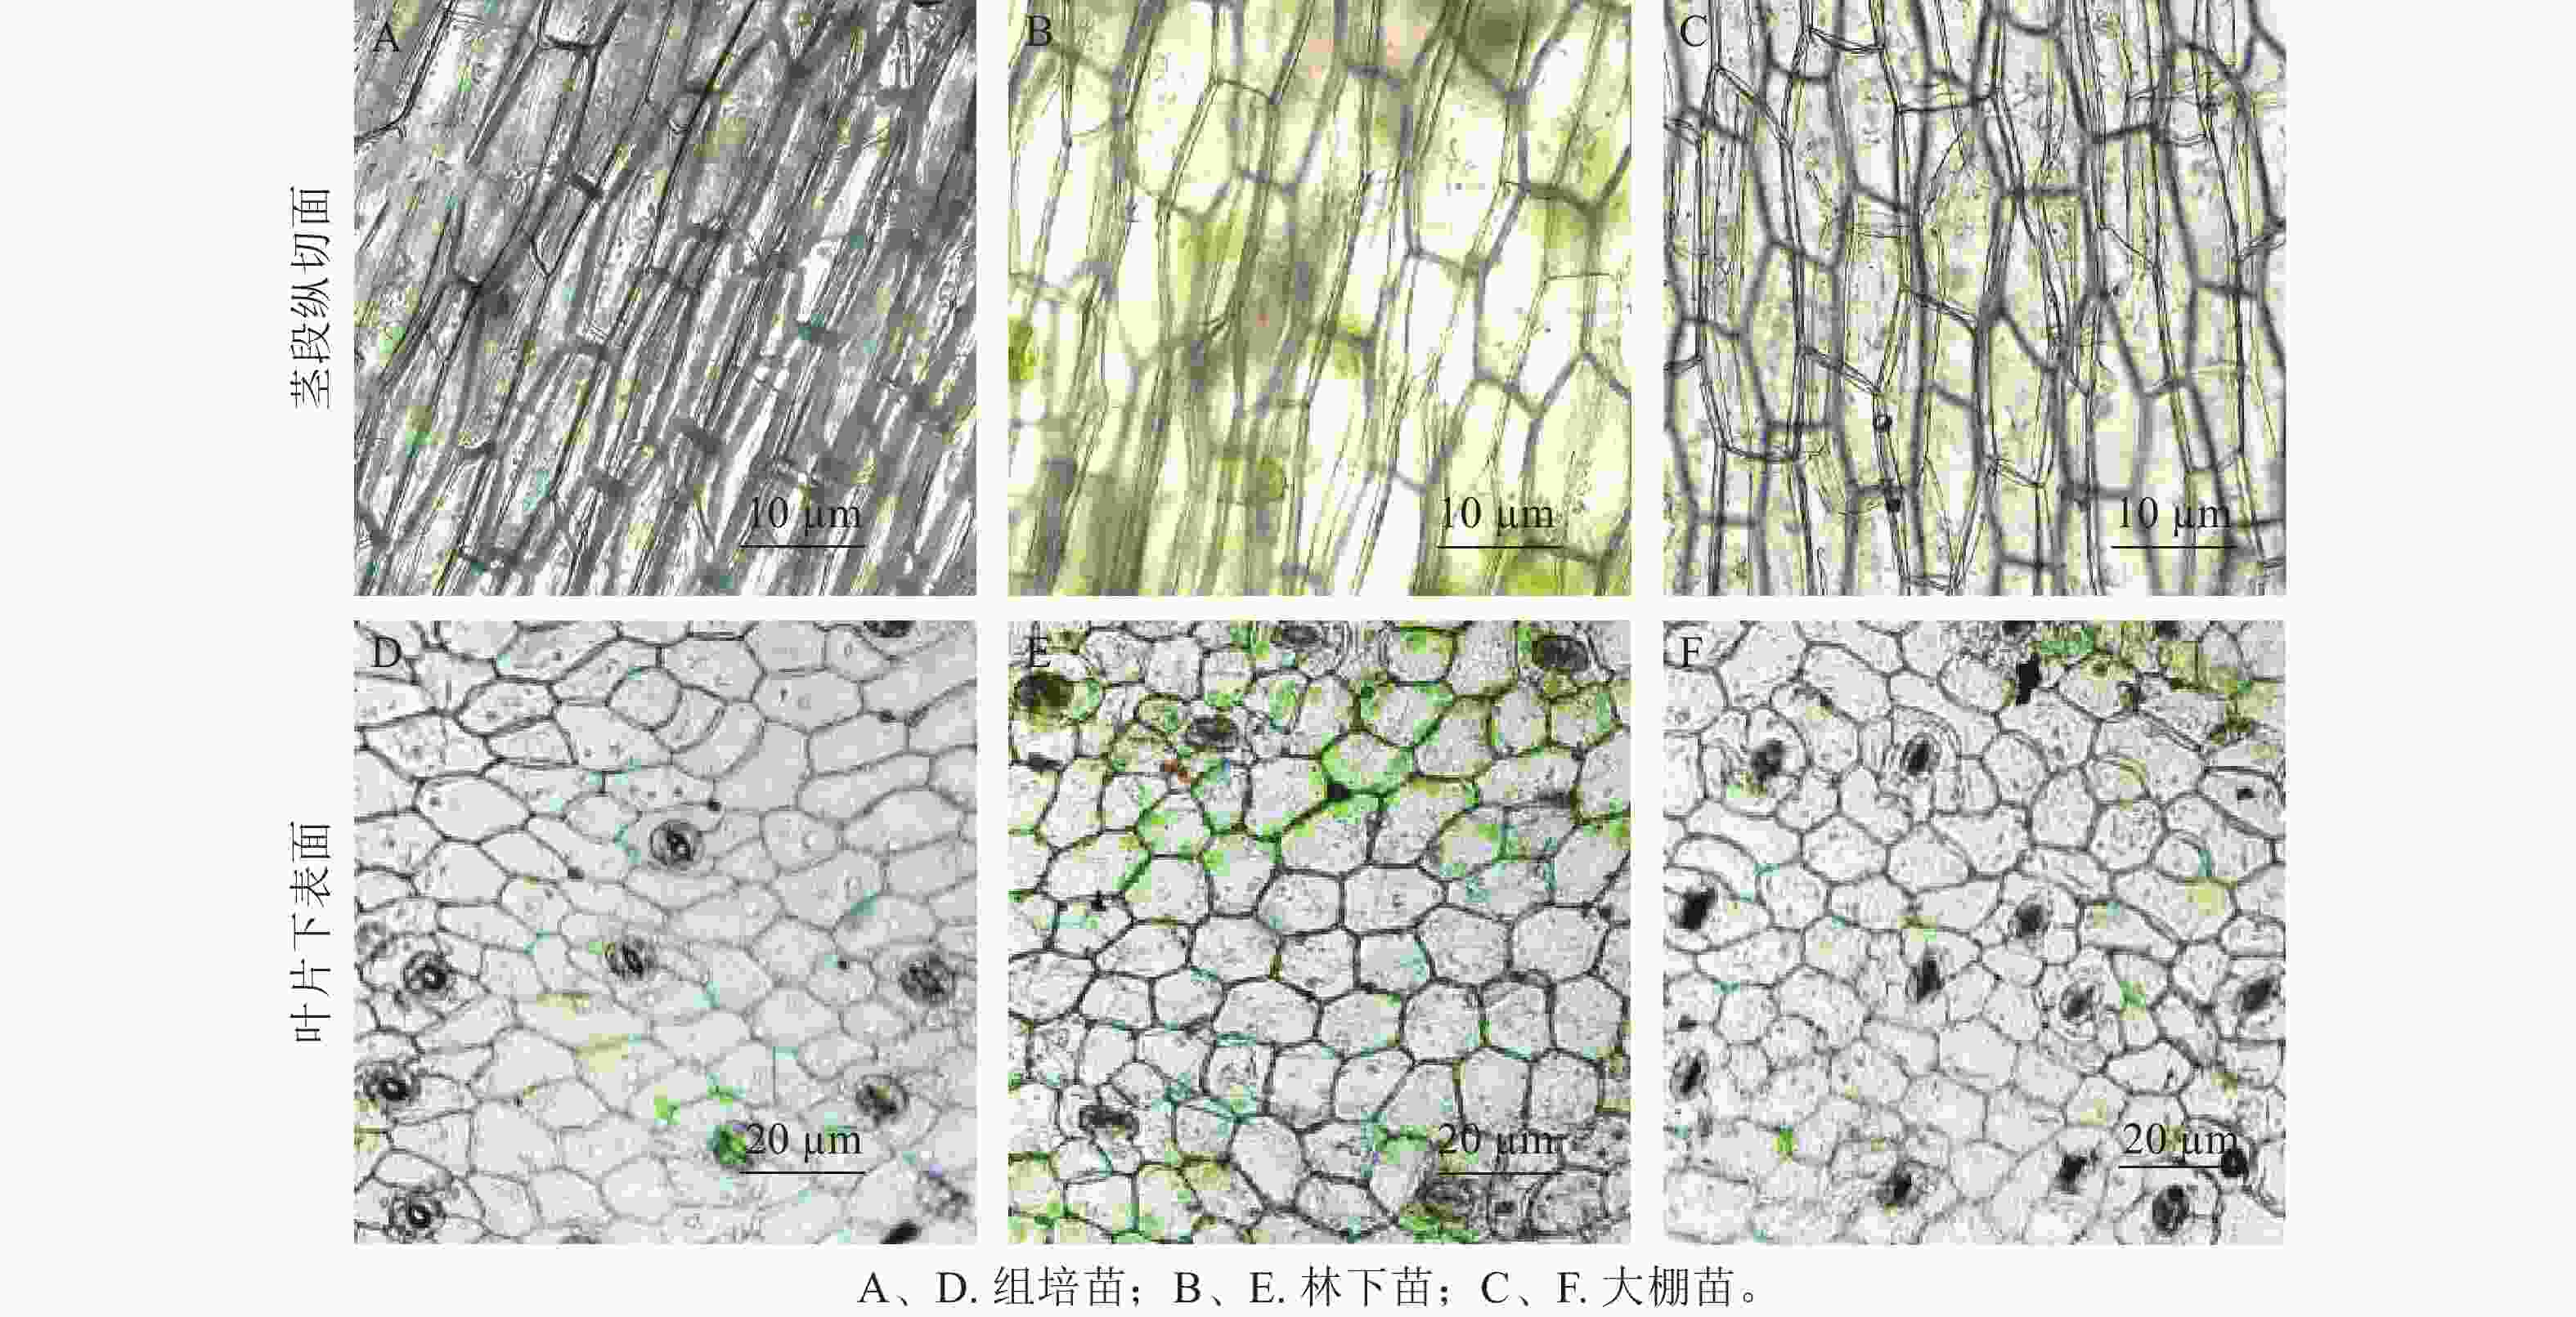
图 2 3种栽培模式金线莲茎段纵切面和叶片下表面显微结构
Figure 2. Longitudinal sections of stems and microscopic structures of the lower leaf surface of A. roxburghii under 3 cultivation modes
表 2 3种栽培模式金线莲茎段纵切面细胞长、宽及叶片下表面气孔密度
Table 2. Cell length, cell width of stem longitudinal sections, and stomatal density on lower leaf surfaces of A. roxburghii under 3 cultivation modes
名称 茎段纵切面单个细胞长/μm 茎段纵切面单个细胞宽/μm 气孔密度/(个·mm−2) 组培苗 11.46 ± 0.70 c 3.38 ± 0.32 c 880.0 ± 83.7 c 林下苗 16.46 ± 0.70 a 6.36 ± 0.32 a 680.0 ± 83.7 b 大棚苗 14.49 ± 0.70 b 4.45 ± 0.32 b 1180.0 ± 83.7 a说明:同列不同小写字母表示不同栽培模式间差异显著(P<0.05)。 -
3种栽培模式金线莲叶片下表面呈淡红棕色(图1D~F)。组培苗叶片上表面为淡绿色,具淡黄色叶脉(图1G);林下苗叶片上表面为深绿色,具金红色叶脉(图1H);大棚苗叶片上表面颜色为墨绿色,具金黄色叶脉(图1I)。3种栽培模式金线莲叶片呈色各异,具有“一种栽培模式,一种叶片颜色”特征,并呈现显著的“上深下浅”模式。对3种栽培模式叶片上表面颜色进行数值化分析,数值越大,表明叶片表面颜色越浅,反之越深。3种栽培苗中,组培苗叶片颜色数值最大,大棚苗叶片颜色次之,林下苗叶片表面颜色数值最低(表3)。叶片颜色数值化分析结果与叶片颜色表型差异基本一致,说明叶片颜色是区分3种栽培模式金线莲的核心指标。
表 3 3种栽培模式金线莲叶片颜色数值
Table 3. Leaf color values of A. roxburghii under 3 cultivation modes
名称 红色 绿色 蓝色 叶片表面颜色 非绿色颜色 组培苗 172.36±4.66 a 165.63±4.02 a 116.11±1.81 a 161.97±3.43 a 64.70±1.60 a 林下苗 142.97±0.59 b 120.65±0.69 c 104.29±0.76 b 122.61±0.66 c 50.05±0.28 c 大棚苗 153.85±0.30 b 141.58±11.57 b 103.24±11.63 b 132.88±9.67 b 57.48±4.52 b 说明:同列不同小写字母表示不同栽培模式间差异显著(P<0.05)。 -
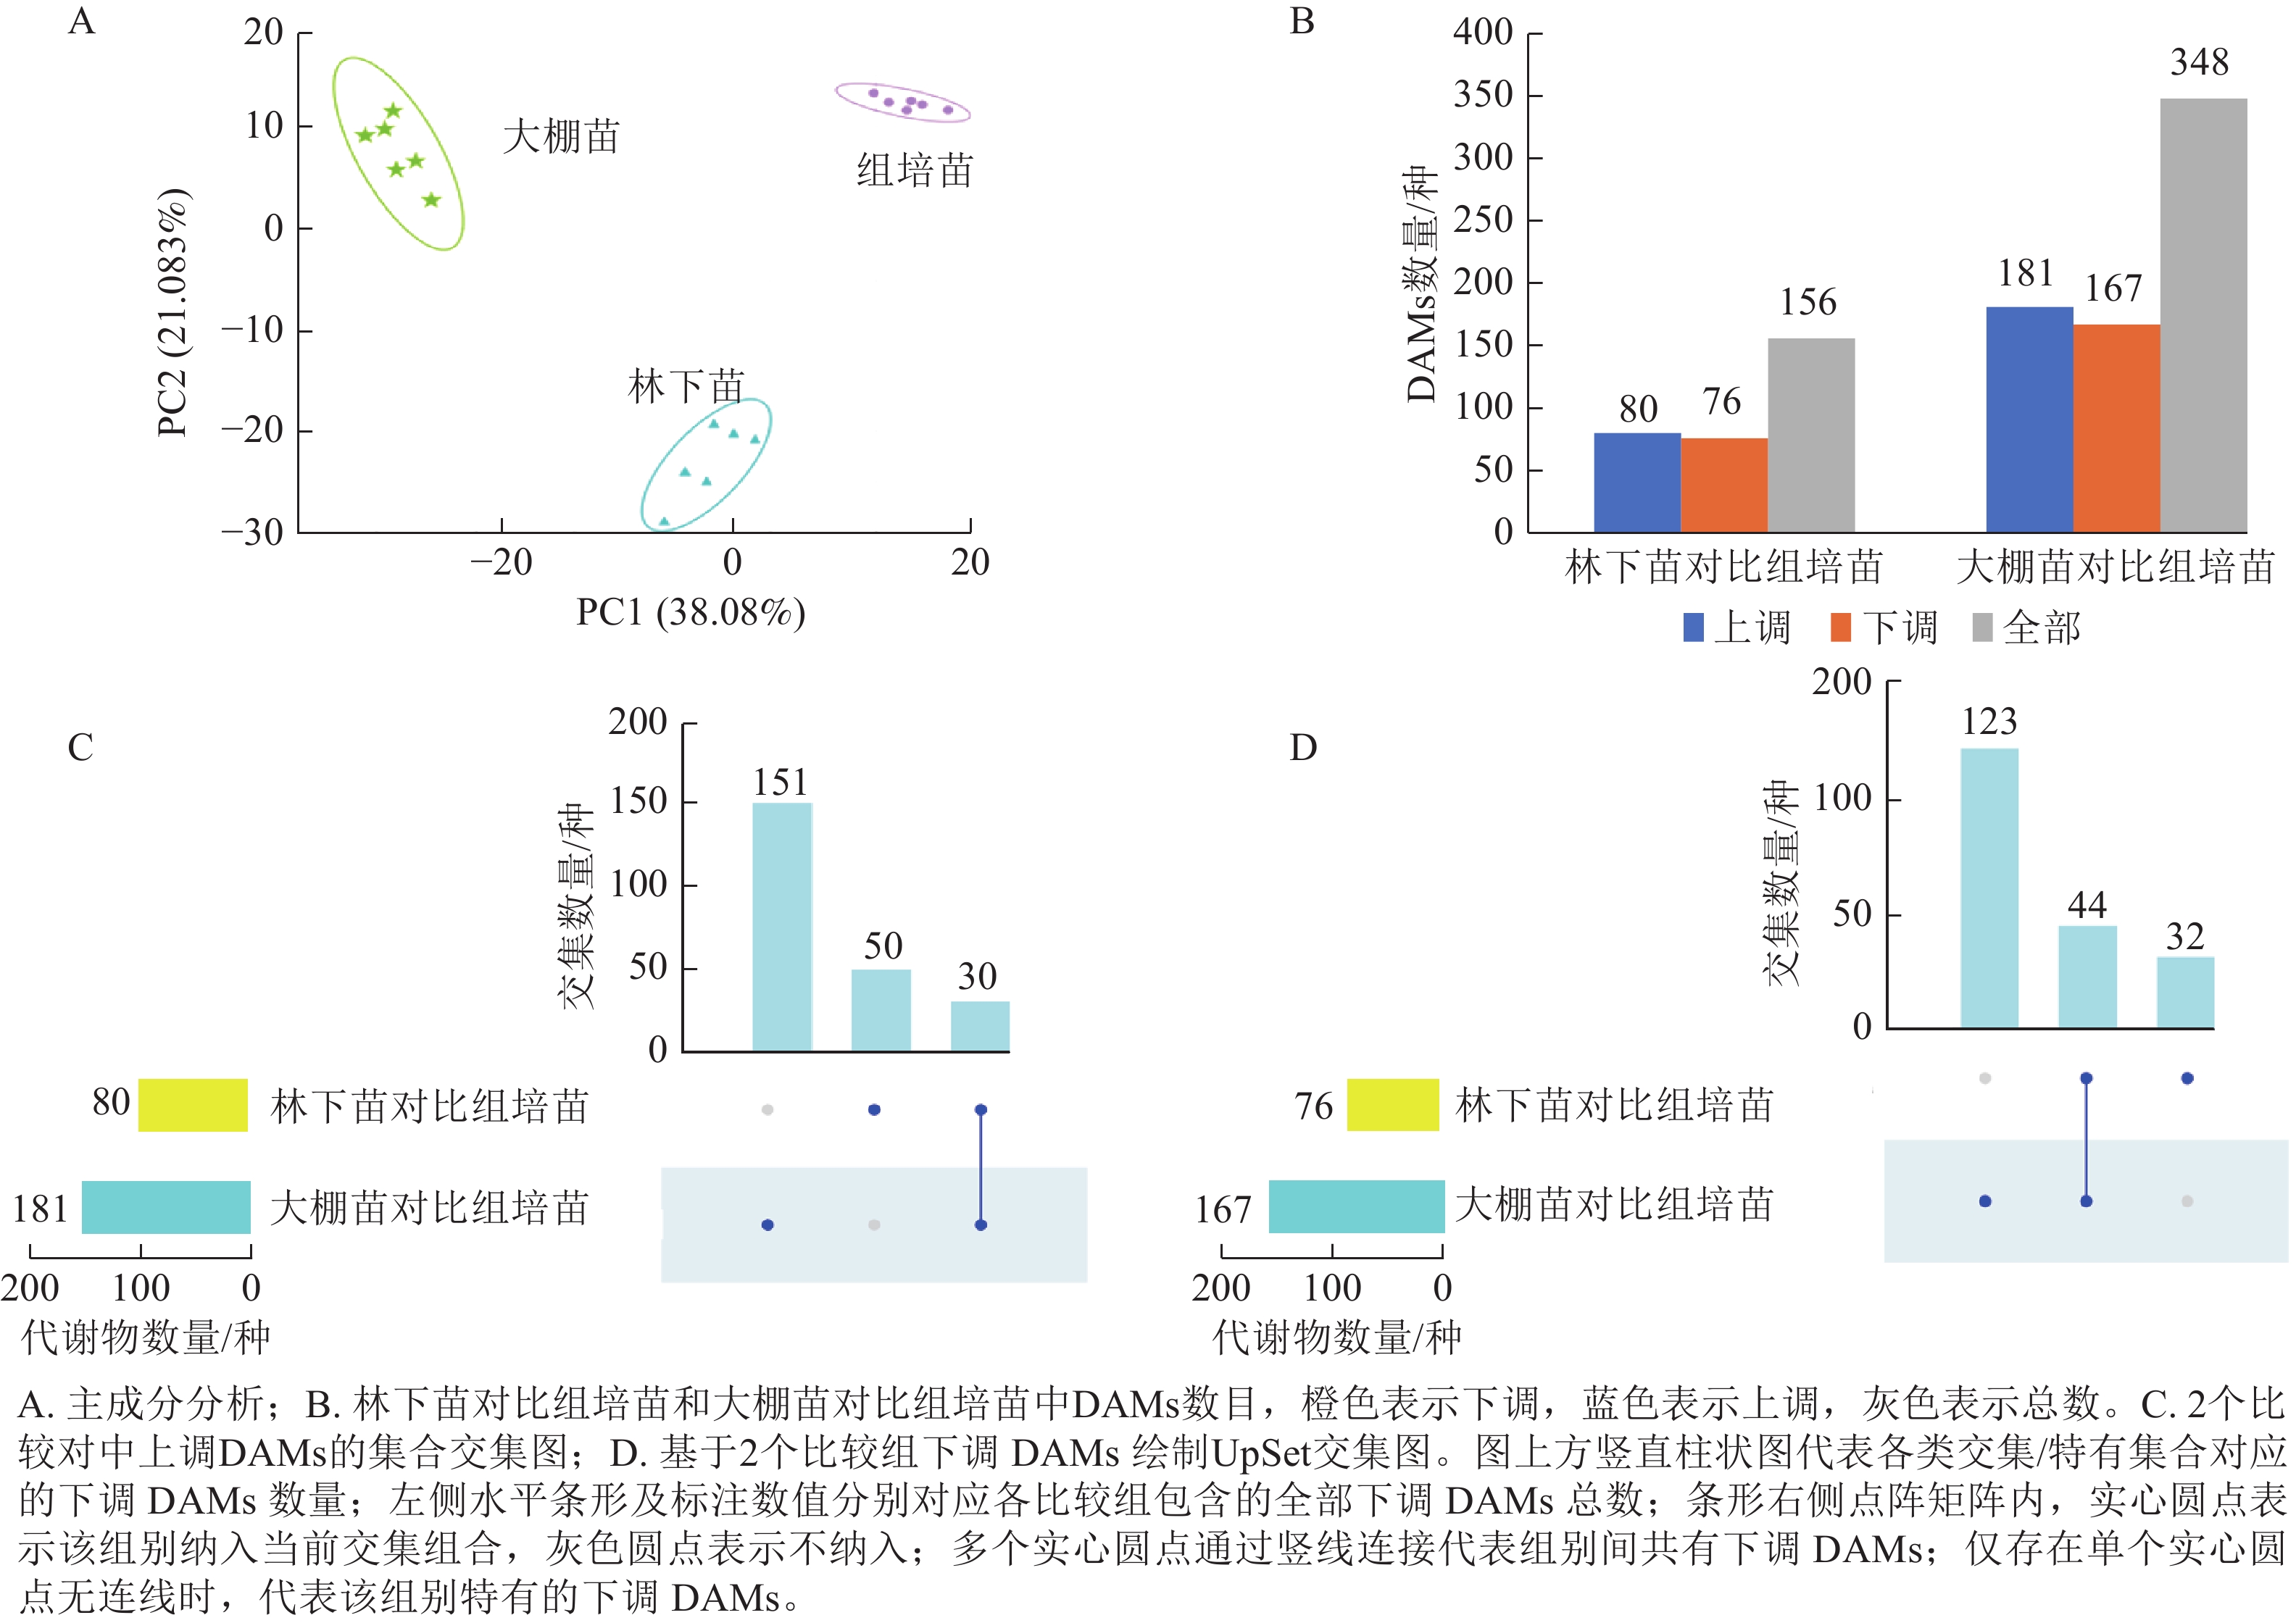
从3种栽培模式金线莲叶片中共鉴定到1 266种代谢物。主成分分析结果显示:3种栽培模式金线莲代谢组沿2个主成分明显分开,同一栽培模式样品聚在一起,说明3种栽培模式金线莲叶片代谢组差异显著(图3A)。分析林下苗对比组培苗、大棚苗对比组培苗2个比组中的DAMs数量。结果表明:DAMs数量分别为156种(80种上调,76种下调)和348种(181种上调,167种下调,图3B)。2个比较对中共有DAMs 74种(30种上调,44种下调),林下苗对比组培苗和大棚苗对比组培苗中组别特异性上调DAMs分别有50和151种(图3C),组别特异性下调DAMs分别有32和123种(图3D),说明3种栽培模式金线莲叶片中DAMs积累模式存在明显差异。这些数据为解析栽培模式对叶片中金线莲苷积累和呈色影响奠定了基础。
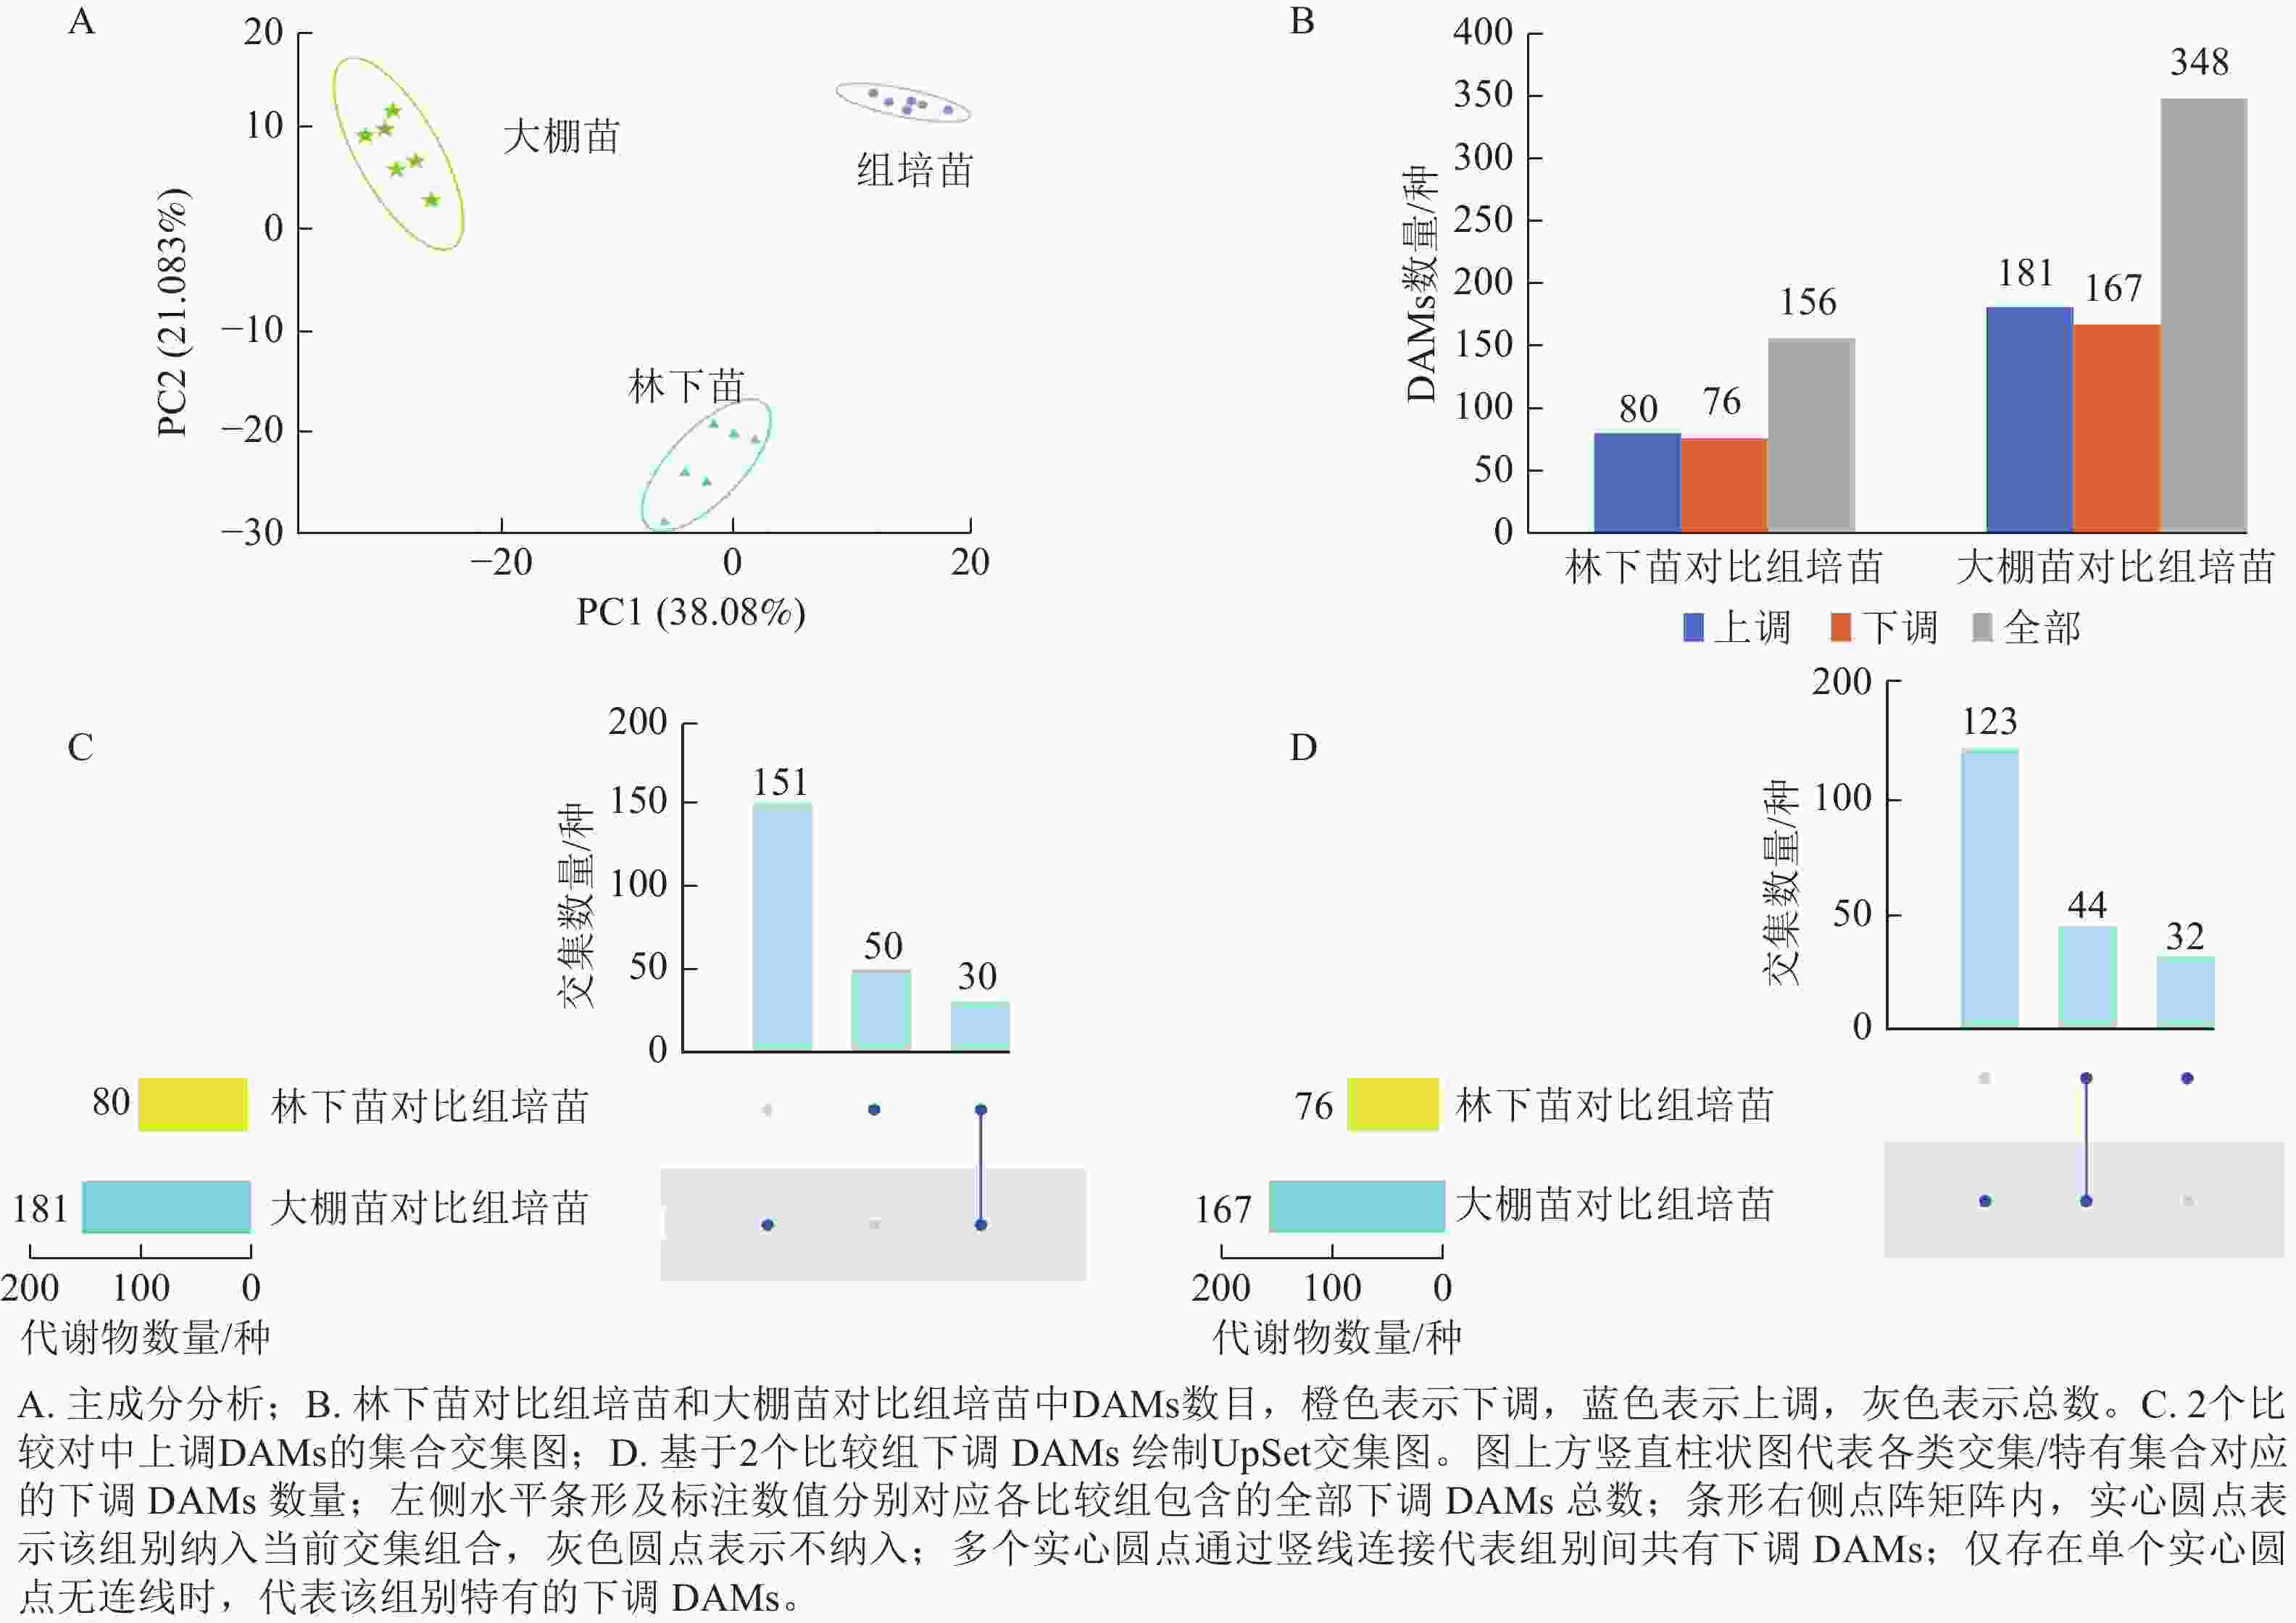
图 3 3种栽培模式金线莲代谢组学
Figure 3. Metabolomics of A. roxburghii under 3 cultivation modes
-
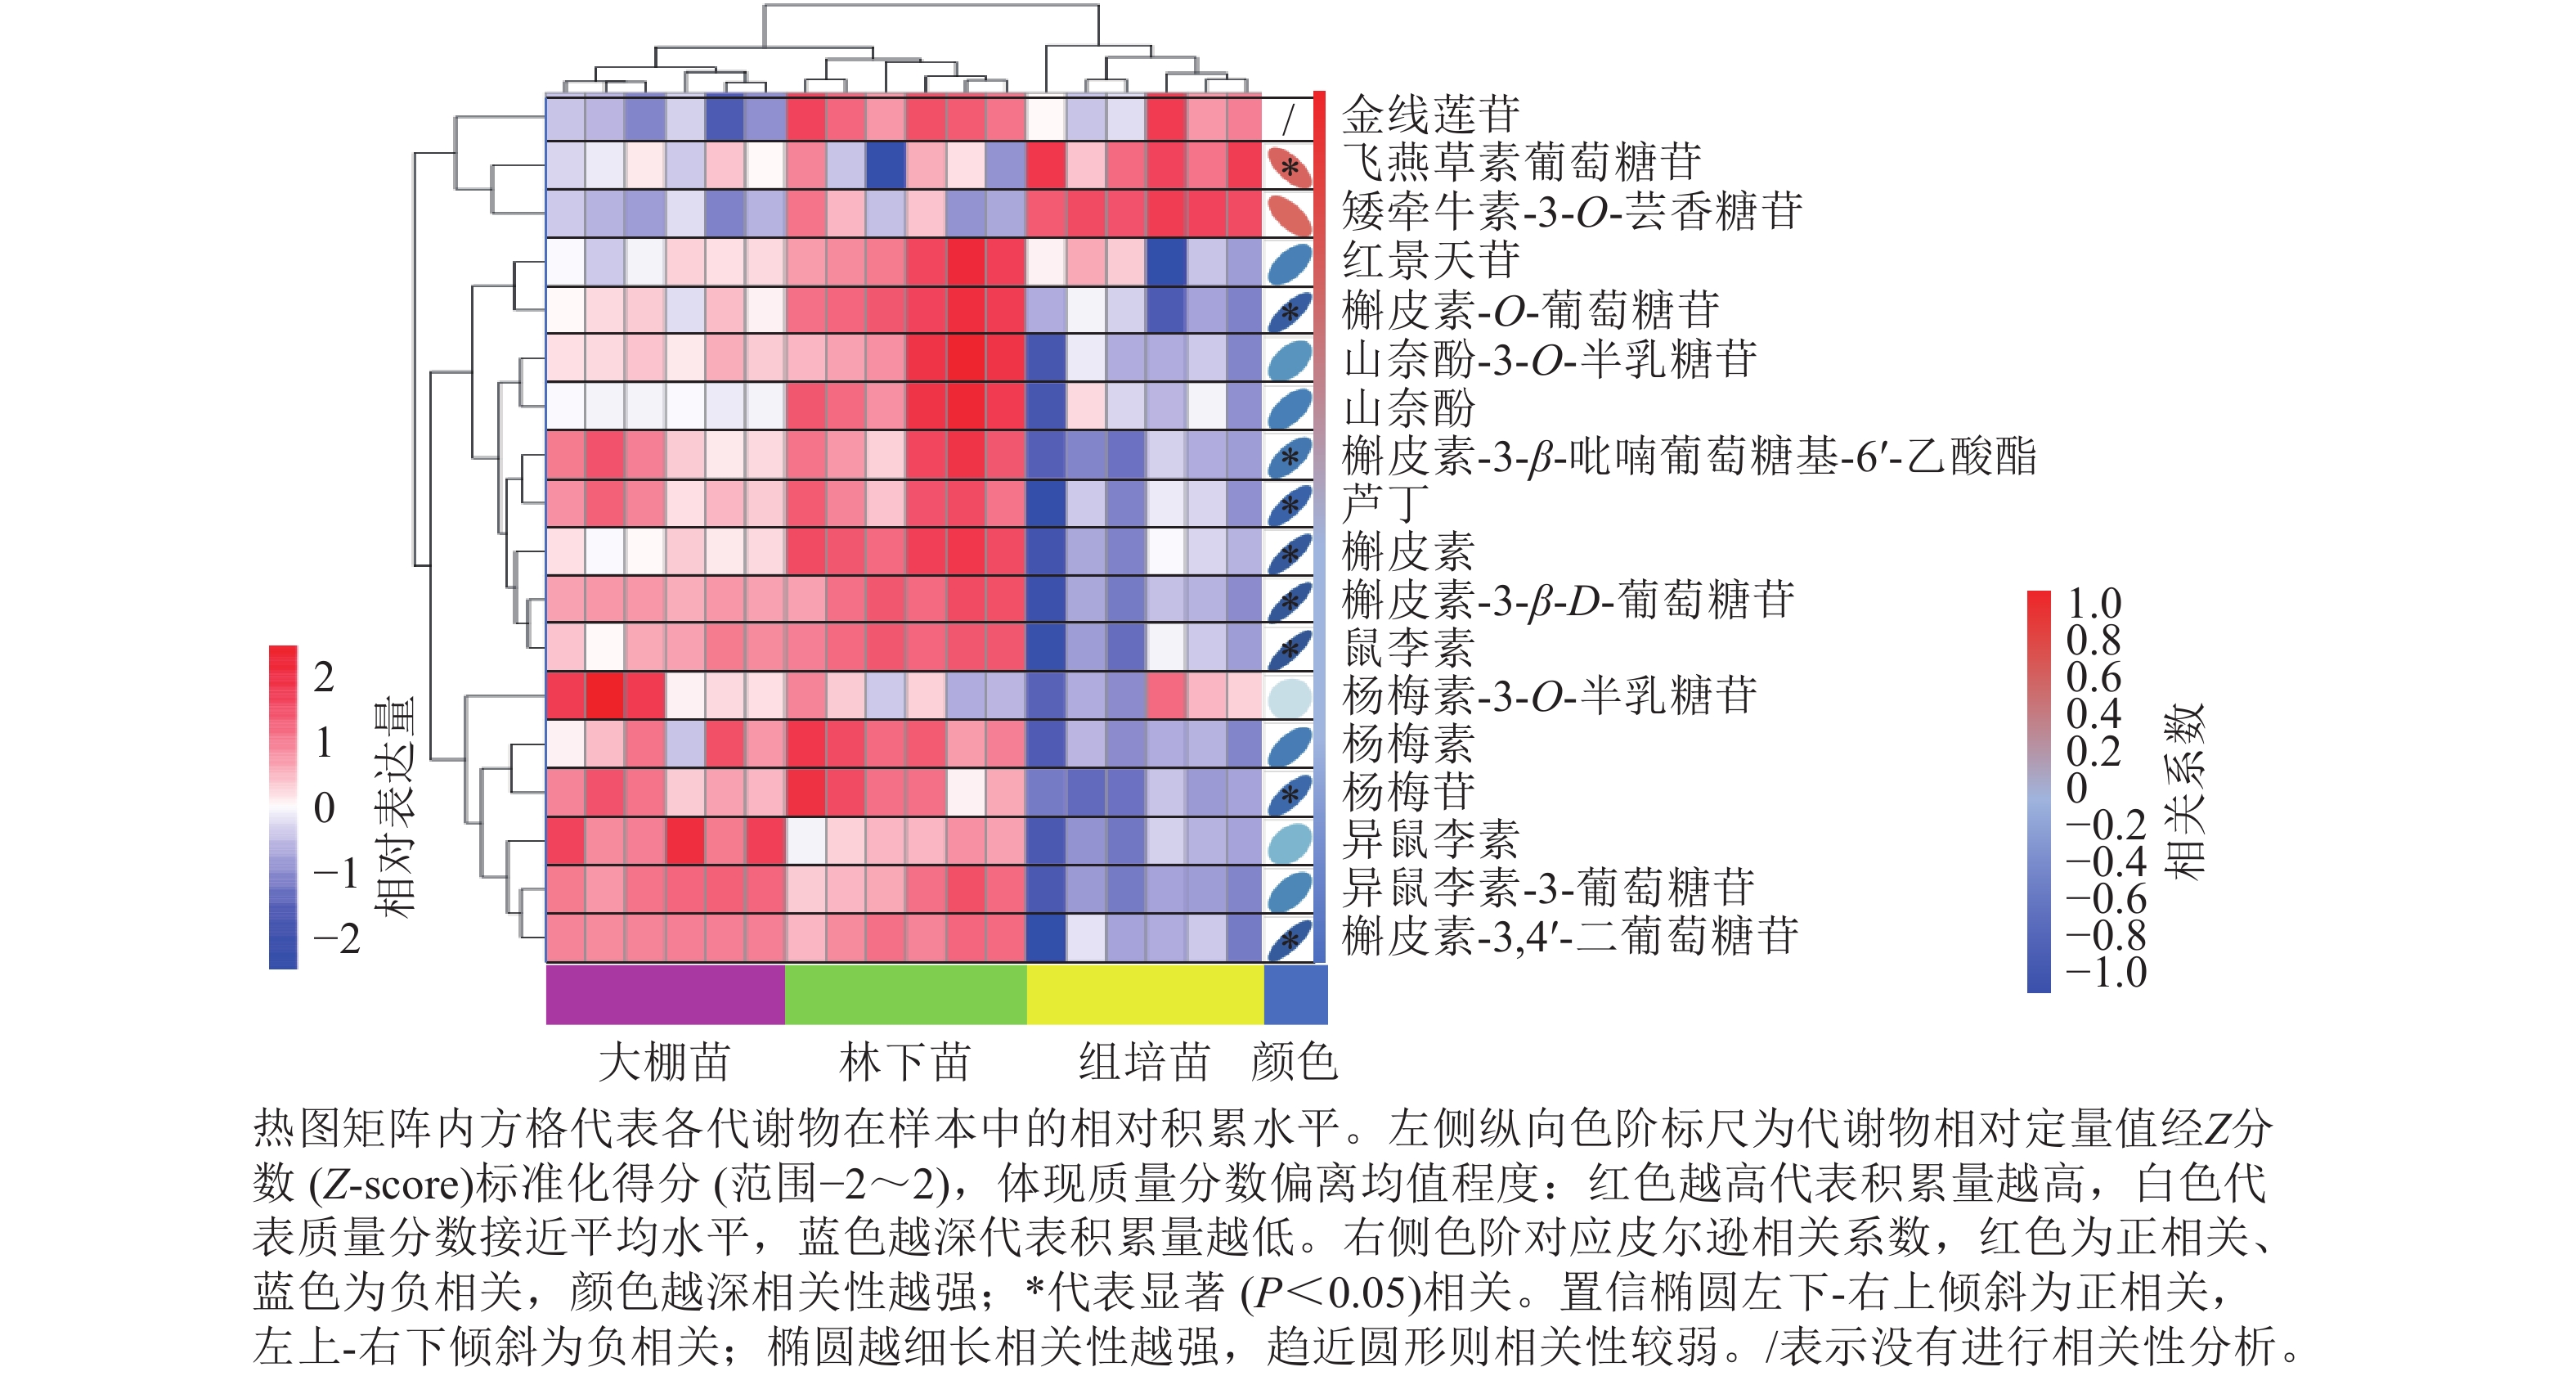
从2个比较对的上调DAMs中共筛选到15种呈色相关代谢物,全部为黄酮醇(图4和表4),说明黄酮醇是3种栽培模式金线莲叶片呈色的主要色素。这15种代谢物在3种栽培模式金线莲叶片中积累模式分为2类:第1类包括红景天苷、槲皮素-O-葡萄糖苷、山奈酚-3-O-半乳糖苷、山奈酚、槲皮素-3β-吡喃葡萄糖基-6′-乙酸酯、芦丁、槲皮素、槲皮素-3-β-D-葡萄糖苷和鼠李素。这些代谢物在林下苗叶片中相对含量最高,大棚苗叶片中相对含量次之,组培苗叶片中相对含量最低(图4和表4)。这些代谢物在金线莲叶片中的积累模式与叶片颜色表型差异一致,其中,6种代谢物积累模式与叶片颜色数值差异显著负相关(P<0.05,图4),表明这6种黄酮醇是3种栽培模式金线莲叶片呈色的主要色素,红景天苷、山奈酚-3-O-半乳糖苷和山奈酚非显著负相关,暗示代谢物在3种栽培模式金线莲叶片呈色中或具有重要作用。第2类包括:杨梅素-3-O-半乳糖苷、杨梅素、杨梅苷、异鼠李素、异鼠李素-3-葡萄糖苷和槲皮素-3,4′-二葡萄糖苷。这些代谢物在林下苗和大棚苗叶片中相对含量相似,高于组培苗叶片中相对含量(图4和表4),其积累模式与叶片颜色差异相似,其中,杨梅苷和槲皮素-3,4′-二葡萄糖苷积累模式与叶片颜色数值显著负相关(P<0.05)。以上结果说明:在金线莲叶片呈色中,这些代谢物或具有重要作用。另外,在2个比较对下调DAMs中筛选到飞燕草素葡萄糖苷和矮牵牛素-3-O-芸香糖苷2种花青素,这2种代谢物在组培苗中相对含量高于林下苗和大棚苗,其积累模式与金线莲叶片呈色表型相反,其中,飞燕草素葡萄糖苷积累模式与颜色数值显著正相关(P<0.05),矮牵牛素-3-O-芸香糖苷积累模式与颜色数值非显著正相关(图4和表4),说明它们在3种栽培模式金线莲叶片呈色中作用微弱。
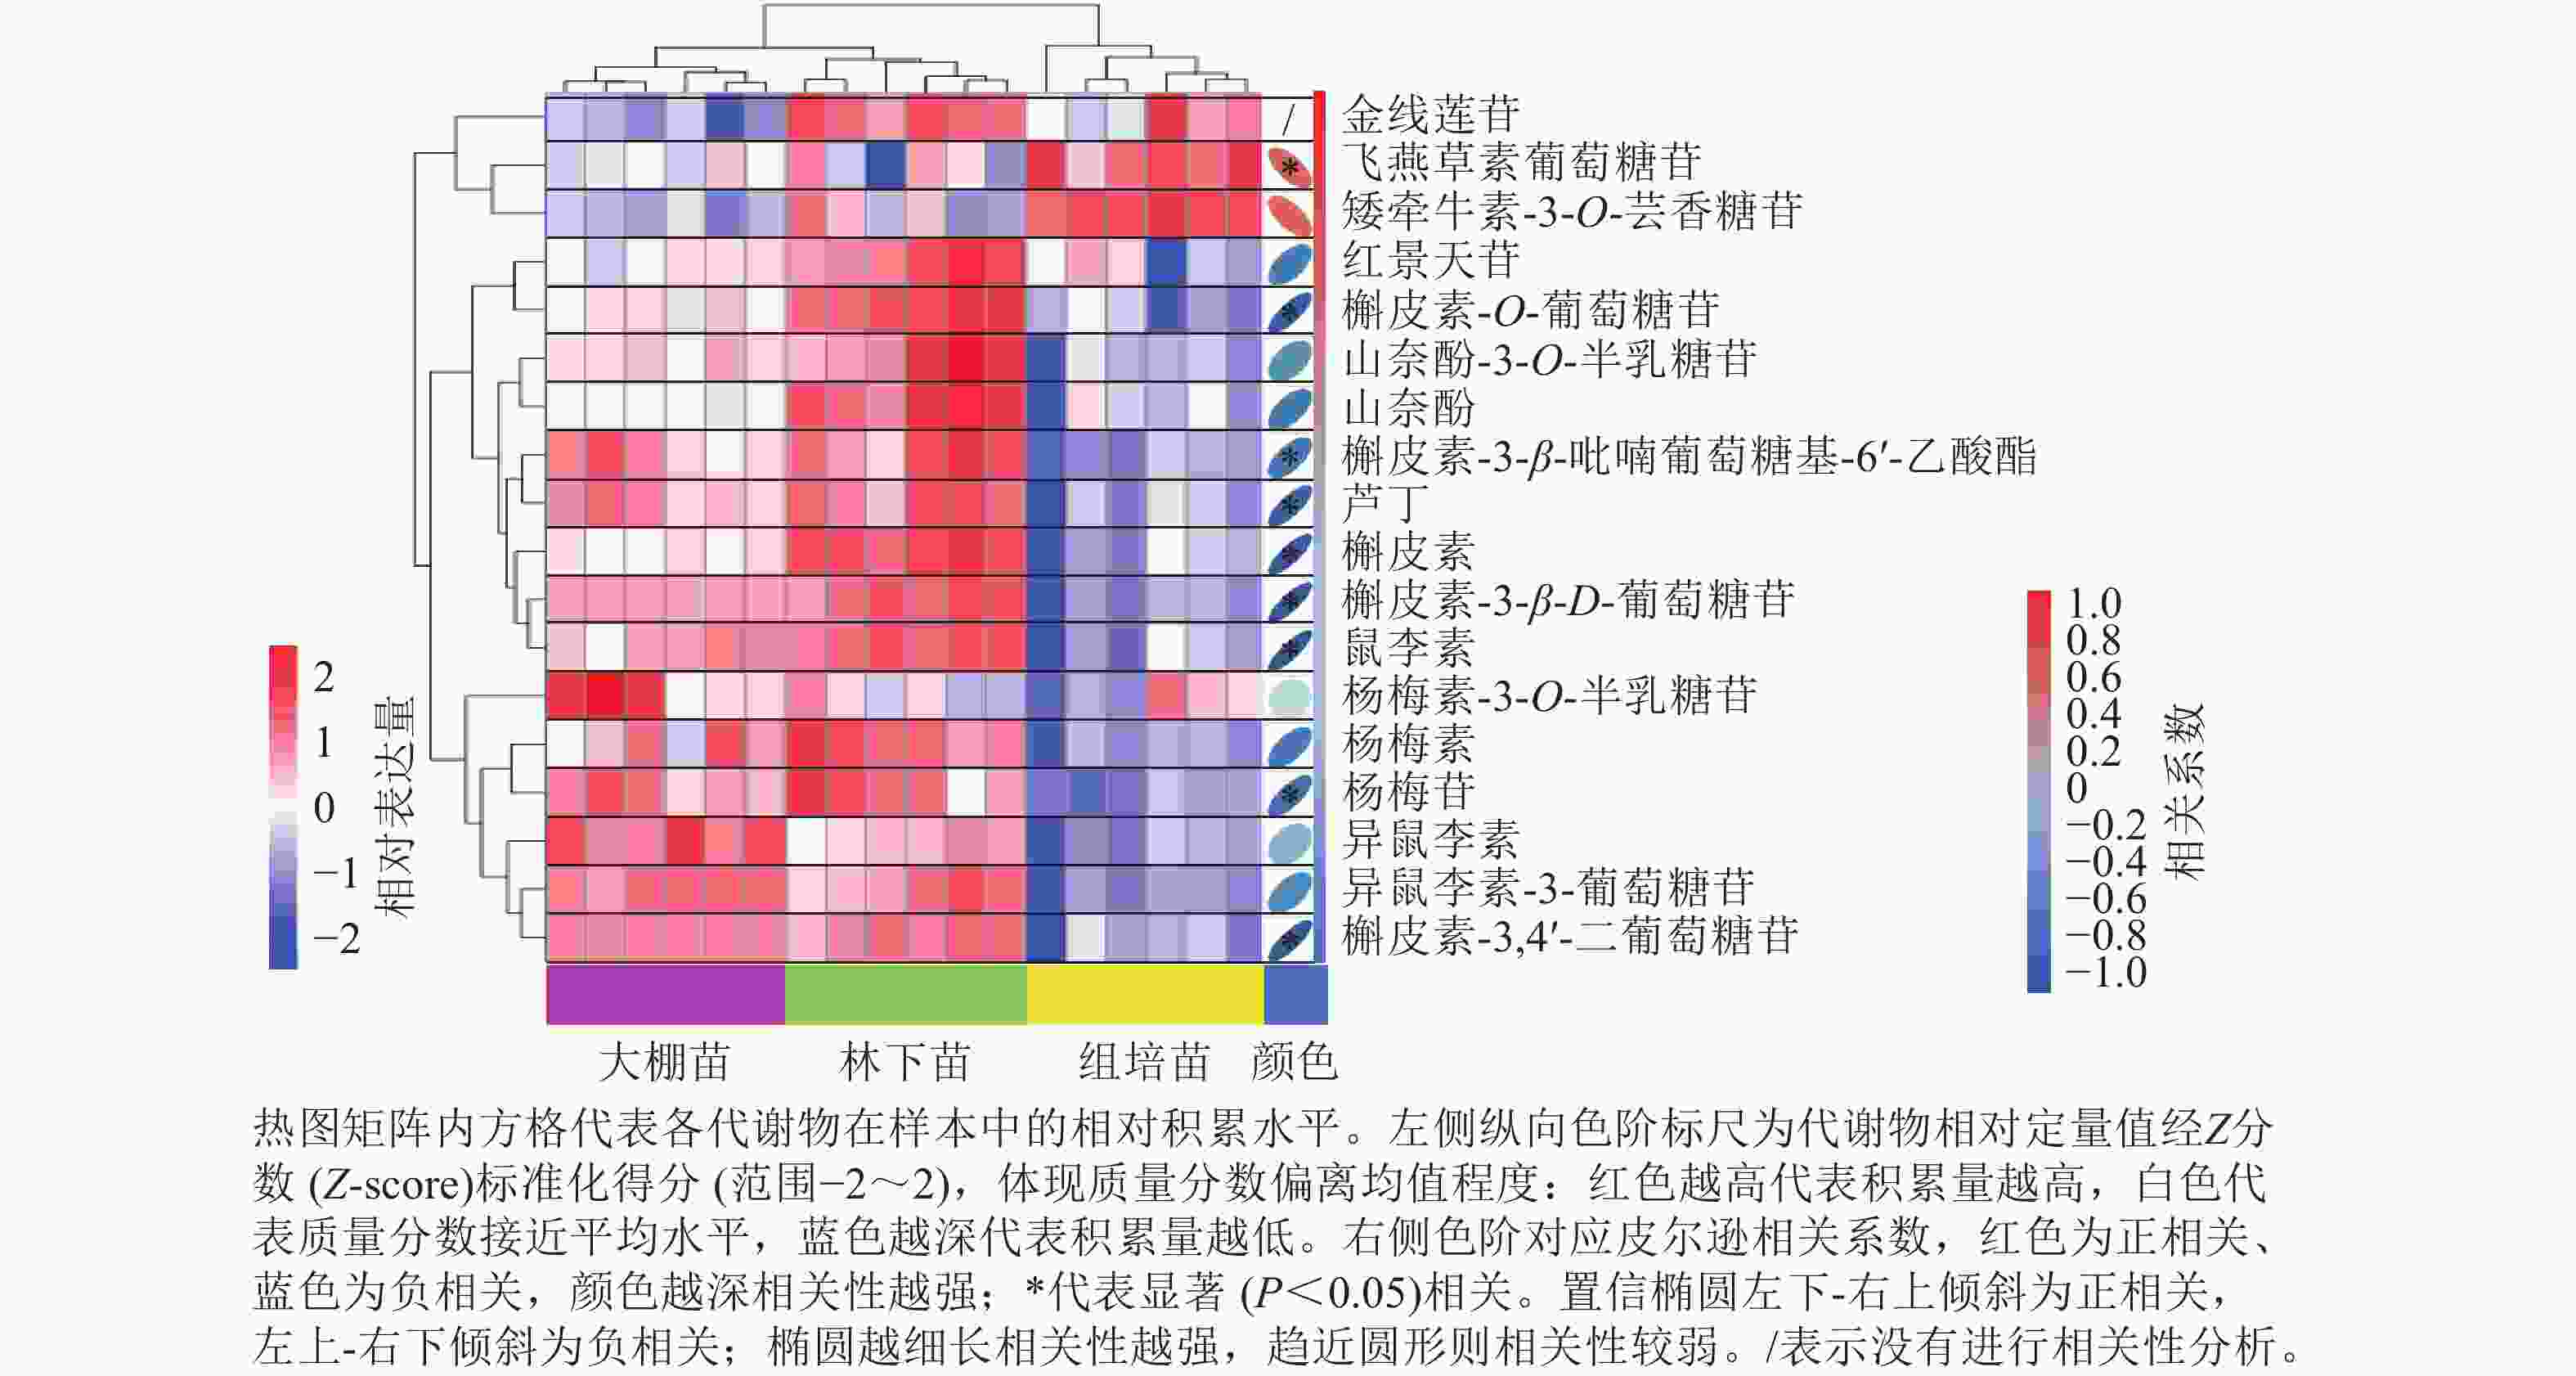
图 4 3种栽培模式金线莲中金线莲苷和呈色相关代谢物分布热图及呈色相关代谢物和叶片颜色数值相关性分析
Figure 4. Distribution of kinsenoside and color-related metabolites in A. roxburghii under 3 cultivation modes, and correlation analysis between color-related metabolites and leaf color value
表 4 3种栽培模式金线莲叶片呈色相关代谢物及金线莲苷积累模式
Table 4. Accumulation patterns of leaf color-related metabolites and anoectochilide in A. roxburghii leaves under 3 cultivation modes
代谢物 分子式 分子量 保留时
间/min样本组平均峰面积 FC(林下苗
对比组培苗)FC(大棚苗
对比组培苗)林下苗 大棚苗 组培苗 山奈酚3-O-半乳糖苷 C21 H20 O11 448.10 5.58 82 761 714.06 18 200 905.57 5 937 831.55 13.94 3.07* 山奈酚 C15 H10 O6 286.05 5.55 71 830 073.67 10 126 566.84 7 122 341.12 10.09 1.42 槲皮素-3-β-D-葡萄糖苷 C21 H20 O12 464.10 5.44 498 355 861.22 278 608 887.16 58 990 040.32 8.45* 4.72** 槲皮素-3-β-吡喃葡萄糖
基-6′-乙酸酯C23 H22 O13 506.11 5.49 13 076 535.97 8 018 878.22 1 605 444.80 8.15 4.99 槲皮素 C15 H10 O7 302.04 5.47 1 093 362 589.56 309 242 833.28 154 167 357.96 7.09** 2.01 鼠李素 C16 H12 O7 316.06 4.99 3 560 894.43 2 399 029.97 1 014 029.88 3.51* 2.37** 芦丁 C27 H30 O16 282.07 5.43 110 4391 225.05858 910 817.17 367 035 144.56 3.01** 2.34* 草质素苷 C21 H20 O11 448.10 7.37 907 063.36 470 969.28 411 183.83 2.21 1.15 槲皮素-O-葡萄糖苷 C21 H20 O12 464.10 8.66 1 322 240.44 834 116.34 622 380.41 2.12* 1.34 杨梅素-3-O-半乳糖苷 C21 H20 O13 480.09 4.96 4 445 195.92 8 919 418.11 4318637.53 1.03 2.07 杨梅素 C15 H10 O8 318.04 5.12 6 872 881.49 5 255 397.20 2 746 209.88 2.50* 1.91 杨梅苷 C21 H20 O12 464.10 5.22 20 230 797.83 18 785 122.30 11 871 927.24 1.70 1.58* 异鼠李素 C16 H12 O7 316.06 6.00 74 759 573.19 239 505 172.13 15 907 498.80 4.70* 15.06 异鼠李素-3-葡萄糖苷 C22 H22 O12 478.11 5.58 132 777 859.96 155 325 252.63 9818351.89 13.52 15.82* 槲皮素-3,4′-二-O-葡萄糖苷 C27 H30 O17 626.15 5.33 557 689 050.93 512 265 669.30 90 100 955.00 6.19* 5.69** 金线莲苷 C10 H16 O8 264.08 1.78 12 350 087 228.67 8 517 203 897.67 10 828 087 152.00 1.14* 0.79* 飞燕草素葡萄糖苷 C21 H21 Cl O12 500.07 4.86 1 149 184.12 1 202 454.76 1 677 140.85 0.69 0.72 矮牵牛素-3-O-芸香糖苷 C28 H33 O16 625.17 5.23 2 158 851.50 1 239 224.25 5 972 002.34 0.36** 0.21** 说明:*表示差异显著(P<0.05);**表示差异极显著(P<0.01)。 -
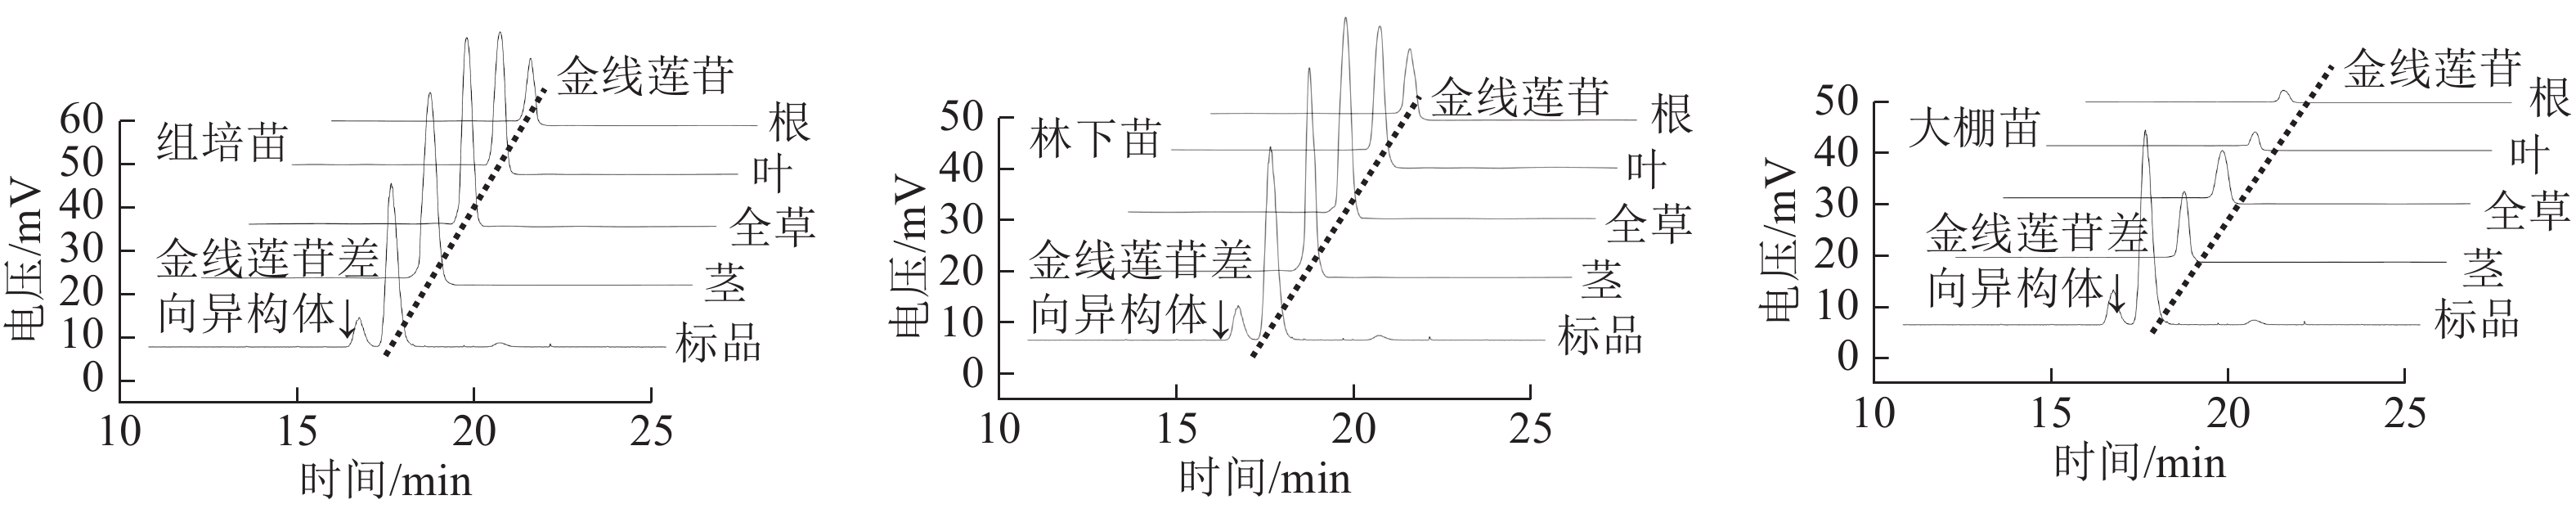
利用HPLC-ELSD分析3种栽培模式金线莲全草、根、茎和叶片中金线莲苷及其差向异构体质量分数,所有组织中均检测不到金线莲苷差向异构体,只含有金线莲苷(表5和图5),因此,3种模式栽培的均为金线莲苷型金线莲,说明栽培模式不影响金线莲化学型。金线莲茎和叶片中金线莲苷质量分数远高于根中,均呈地上部分优势分布,说明栽培模式不影响金线莲苷分布模式。林下苗全草、根、茎和叶片中金线莲苷质量分数均最高,组培苗中次之,大棚苗中最低,说明栽培模式影响金线莲苷质量分数。利用代谢组学和HPLC-ELSD分析3种栽培模式中金线莲苷积累模式,分析结果一致(图1、图4、表1和表5),说明这2种分析方法都可以准确对金线莲中金线莲苷进行定性定量分析。
表 5 3种栽培模式金线莲中金线莲苷质量分数
Table 5. Content of kinsenoside and its isomer of A. roxburghii cultivated under 3 cultivation modes
名称 金线莲苷/(mg·g−1) 全草 根 茎 叶片 组培苗 5.84±0.46 b** 2.22±0.14 b 6.14±0.33 a** 4.67±0.30 b** 大棚苗 1.92±0.38 c** 0.81±0.01 c 2.48±0.18 b** 1.73±0.11 c* 林下苗 7.31±0.24 a** 2.53±0.13 a 6.93±1.09 b** 5.43±0.06 a** 说明:同列不同小写字母表示不同栽培模式间差异显著(P<0.05); *和**分别表示同一栽培模式下金线莲其他部位与根相比差异显著(P<0.05)和差异极显著(P<0.01)。 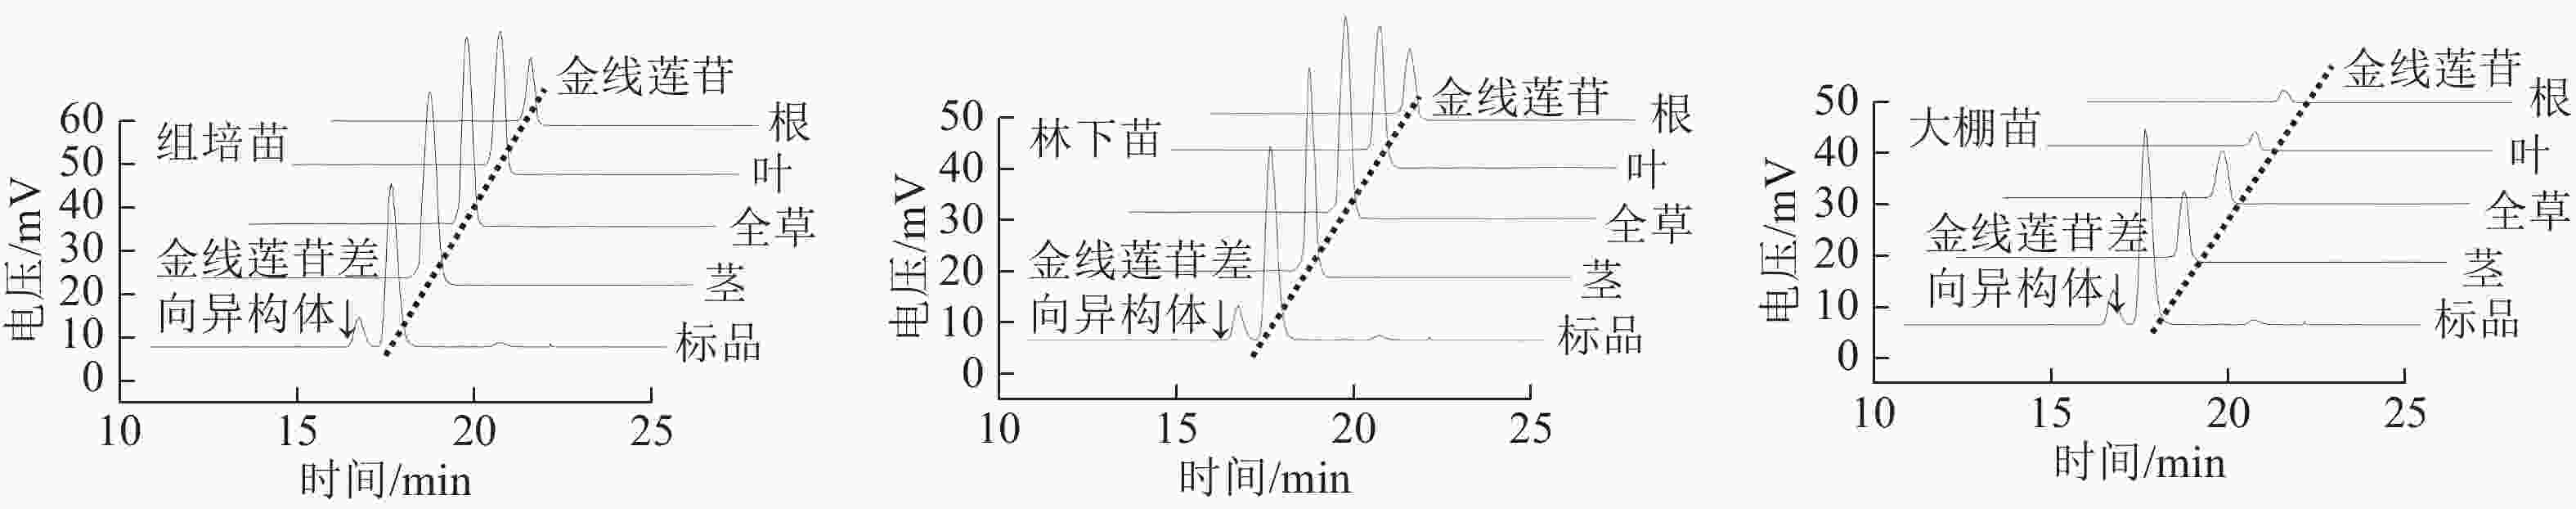
图 5 3种栽培模式金线莲中金线莲苷及其差向异构体色谱图
Figure 5. Chromatograms of kinsenoside and its isomer of A. roxburghii under 3 cultivation modes
-
金线莲兼具药用和观赏价值,然而,金线莲野生资源濒临枯竭,市售金线莲产品以人工栽培为主。组织培养、大棚种植及林下种植是人工栽培金线莲的主要模式。通过分析3种栽培模式金线莲株型大小、茎长和茎直径、叶片面积和根长,可有效区分组培苗、大棚苗和林下苗。茎段纵切面及叶片下表面细胞的形态、大小与排列方式存在差异,这是导致3种栽培模式金线莲茎长和叶片面积不同的根本原因。通过宏观观察、微观表征结合数字化分析金线莲表型特征来区分3种栽培模式的金线莲,契合传统中药材“辨状论质”的核心本质[20−22]。在3种栽培模式中,林下苗的单株生物量最大,叶片面积最大,茎长、茎直径与根长度也最大,表明林下种植是提升金线莲产量的有效策略。
色泽是中药材“优形”的典型表现之一,也是“辨状论质”的核心内容[21]。3种栽培模式金线莲叶片呈色各异,提示栽培模式是影响金线莲叶片呈色的重要因素。其中,林下苗叶片表面颜色最深,预示通过林下种植有望实现优色金线莲的精准育种。植物外在色泽的形成,根本原因在于内在色素的积累[21, 23−24],黄酮醇、花青素、类胡萝卜素及甜菜素是植物中常见的4类非绿色色素[23−29]。本研究在林下苗对比组培苗、大棚苗对比组培苗的上调DAMs中只筛选到黄酮醇,表明DAMs是引发3种栽培模式金线莲叶片非绿色呈色差异的关键色素,也是导致不同品系金线莲叶片呈色差异的主要色素[18]。
中药材的外在色泽优势源于其内在色素的积累[21]。3种栽培模式金线莲呈现“一种栽培模式,一种叶片颜色”的特征,说明其内在色素的种类或相对含量存在差异。3种栽培模式金线莲中,9种黄酮醇的积累模式与叶片非绿色颜色表型一致,其中,6种积累模式与叶片非绿色颜色数值呈显著负相关,是引起3种栽培模式金线莲叶片非绿色差异的主要色素。该研究结果与黄酮醇(尤其是槲皮素、山奈酚及其糖苷)使植物呈现黄色或金黄色[23-28]的报道一致。另外,在3种栽培模式金线莲中,6种黄酮醇积累模式与叶片颜色表型差异相似,说明这些黄酮醇在3种栽培模式金线莲叶片呈色中或具有着重要作用。矮牵牛素、飞燕草素及其糖苷可使植物呈现粉色、红色、红棕色或紫色[23−24],飞燕草素葡萄糖苷和矮牵牛素-3-O-芸香糖苷在3种栽培模式金线莲叶片中的作用微弱,与叶片表面的黄酮醇叠加后,共同形成金线莲叶脉的金黄色或金红色[18]。
根据金线莲中是否存在金线莲苷差向异构体,可将其分为金线莲苷型和混合型2种化学型[18−19]。本研究中,3种栽培模式的金线莲均未检测到金线莲苷差向异构体,且金线莲苷均呈地上部分优势分布,表明栽培模式不影响金线莲的化学型及金线莲苷的分布模式。在3种栽培模式中,林下苗全草、根、茎和叶中的金线莲苷质量分数均最高,说明栽培模式是影响金线莲苷质量分数的重要因素,进一步证实林下种植是实现优质金线莲精准育种的有效策略[30−31]。
-
本研究分析了组织培养、大棚种植和林下种植对金线莲表型和品质的影响。植株大小、茎长和茎直径、叶片面积和根长是区分组培苗、林下苗和大棚苗的重要表型指标,其中,林下苗表型指标数值均最大,林下种植是提升金线莲产量的有效措施。叶片颜色是区分3种栽培模式金线莲的核心指标,林下苗叶片中黄酮醇(尤其是山奈酚、槲皮素及衍生物)相对含量最高,颜色最深,林下种植是实现优色金线莲精准育种的有效策略。林下苗中金线莲苷质量分数最高,林下种植是实现优质金线莲精准育种的有效措施。
本文已在中国知网网络首发,可在知网搜索、下载并阅读全文。
栽培模式对金线莲表型与金线莲苷质量分数和叶片非绿色呈色影响
DOI: 10.11833/j.issn.2095-0756.20260170
Effects of cultivation modes on phenotype, kinsenoside content and non-green leaf coloration in Anoectochilus roxburghii
-
摘要:
目的 组织培养、林下种植、大棚种植是金线莲Anoectochilus roxburghii的3种主要栽培模式,但对金线莲苷积累及叶片呈色的影响尚不明确。本研究旨在阐明这3种栽培模式对金线莲表型和品质的影响。 方法 通过宏观、微观表型观察和测定,分析栽培模式对金线莲表型的影响;采用叶片颜色观察、数字化与代谢组分析栽培模式对金线莲叶片呈色的影响;利用高效液相色谱-蒸发光散射检测器结合代谢组学分析栽培模式对金线莲苷积累的影响。 结果 3种栽培模式下金线莲单株生物量、茎长、茎直径、叶片面积和根长是区分不同栽培模式金线莲的重要表型指标。茎段纵切面及叶下表皮微观结构分析表明:细胞形态、大小及排列方式的差异是造成茎长、叶面积差异的核心原因。金线莲叶片呈色具有栽培模式特异性,并呈“上深下浅”模式,其中,林下苗叶片颜色最深,大棚苗次之,组培苗最浅。叶片颜色是鉴别3种栽培模式金线莲的核心表型指标。槲皮素及其衍生物、山奈酚及其衍生物等9种代谢物积累模式与颜色表型一致,其中,6种代谢物积累模式与叶片颜色数值呈显著负相关(P<0.05),是金线莲叶片呈色的主要色素。3种栽培模式金线莲中均未检测到金线莲苷差向异构体,金线莲苷主要积累于金线莲地上部分,质量分数从高到低依次为林下苗、组培苗、大棚苗。 结论 林下栽培模式可同步提升金线莲生物量、叶片色泽与金线莲苷质量分数,是优质优色金线莲精准栽培的优选模式。图5表5参31 Abstract:Objective Anoectochilus roxburghii is the sole medicinal source for industrial production of kinsenoside and also serves as a material for ornamental bonsai. Currently, commercially available A. roxburghii is primarily derived from artificial cultivation. However, the effects of three main cultivation modes (tissue culture, understory planting, and greenhouse planting) on phenotype, kinsenoside accumulation, and leaf coloration remain unclear. This study aims to elucidate the effects of these three cultivation modes on the phenotype and quality of A. roxburghii. Method The effects of cultivation modes on phenotype were analyzed using macroscopic and microscopic observations. Leaf coloration was investigated by color observation, digitization, and metabolomics. Kinsenoside accumulation was determined by HPLC-ELSD and metabolomics. Result Significant or non-significant differences in biomass per plant, stem length, stem diameter, leaf area, and root length were observed among the three modes. These indicators were the highest in understory-grown plants, followed by greenhouse-grown plants, and the lowest in tissue-cultured plants. Microstructural analysis showed that differences in cell morphology, size, and arrangement contributed to the variations in stem length and leaf area. Leaf coloration was mode-specific and showed a “dark adaxial and light abaxial” pattern. Understory-grown plants exhibited the deepest color, followed by greenhouse-grown plants, and tissue-cultured plants were the lightest. The accumulation patterns of rhodionin, quercetin-O-glucoside, kaempferol-3-O-galactoside, kaempferol, quercetin-3β-pyranoglucosyl-6′-acetate, rutin, quercetin, quercetin-3β-D-glucoside, and rhamnetin were consistent with leaf color phenotypes and showed negative correlations (significant or not) with color parameters. These metabolites are the main pigments for leaf coloration. No kinsenoside isomer was detected in plants of all three modes. Kinsenoside was mainly accumulated in aerial parts, with content ranked as: understory-grown> tissue-cultured> greenhouse-grown. Conclusion Understory cultivation can simultaneously improve biomass, ornamental leaf color, and kinsenoside content in A. roxburghii, representing the optimal mode for efficient cultivation of high-quality and high-color varieties. The results provide a scientific basis for quality evaluation and support precision breeding and standardized cultivation. [Ch, 5 fig, 5 tab. 31 ref.] -
图 1 金线莲栽培模式、植株及叶片表型
Figure 1 Cultivation modes, plant and leaf phenotypes of A. roxburghii
图 2 3种栽培模式金线莲茎段纵切面和叶片下表面显微结构
Figure 2 Longitudinal sections of stems and microscopic structures of the lower leaf surface of A. roxburghii under 3 cultivation modes
图 4 3种栽培模式金线莲中金线莲苷和呈色相关代谢物分布热图及呈色相关代谢物和叶片颜色数值相关性分析
Figure 4 Distribution of kinsenoside and color-related metabolites in A. roxburghii under 3 cultivation modes, and correlation analysis between color-related metabolites and leaf color value
图 5 3种栽培模式金线莲中金线莲苷及其差向异构体色谱图
Figure 5 Chromatograms of kinsenoside and its isomer of A. roxburghii under 3 cultivation modes
表 1 3种栽培模式金线莲表型指标
Table 1. Phenotypic indicators of A. roxburghii under 3 cultivation modes
名称 生物量/g 茎长/mm 茎直径/mm 叶片数/张 叶片面面积/cm2 根数/条 根长/mm 组培苗 1.55 ± 0.48 b 117.15 ± 10.05 b 2.80 ± 0.32 a 4.30 ± 0.48 a 15.10 ± 3.12 b 4.20 ± 1.49 a 75.71 ± 14.50 b 林下苗 2.38 ± 0.51 a 135.84 ± 10.53 a 2.78 ± 0.47 a 4.70 ± 0.82 a 22.65 ± 6.36 a 4.90 ± 1.10 a 149.89 ± 78.55 a 大棚苗 2.29 ± 0.38 a 130.89 ± 9.02 a 3.05 ± 0.38 a 4.80 ± 0.63 a 22.60 ± 3.49 a 4.80 ± 0.79 a 129.98 ± 29.24 a 说明:同列不同小写字母表示不同栽培模式间差异显著(P<0.05)。  下载: 导出CSV
表 2 3种栽培模式金线莲茎段纵切面细胞长、宽及叶片下表面气孔密度
Table 2. Cell length, cell width of stem longitudinal sections, and stomatal density on lower leaf surfaces of A. roxburghii under 3 cultivation modes
名称 茎段纵切面单个细胞长/μm 茎段纵切面单个细胞宽/μm 气孔密度/(个·mm−2) 组培苗 11.46 ± 0.70 c 3.38 ± 0.32 c 880.0 ± 83.7 c 林下苗 16.46 ± 0.70 a 6.36 ± 0.32 a 680.0 ± 83.7 b 大棚苗 14.49 ± 0.70 b 4.45 ± 0.32 b 1180.0 ± 83.7 a说明:同列不同小写字母表示不同栽培模式间差异显著(P<0.05)。
下载: 导出CSV
表 3 3种栽培模式金线莲叶片颜色数值
Table 3. Leaf color values of A. roxburghii under 3 cultivation modes
名称 红色 绿色 蓝色 叶片表面颜色 非绿色颜色 组培苗 172.36±4.66 a 165.63±4.02 a 116.11±1.81 a 161.97±3.43 a 64.70±1.60 a 林下苗 142.97±0.59 b 120.65±0.69 c 104.29±0.76 b 122.61±0.66 c 50.05±0.28 c 大棚苗 153.85±0.30 b 141.58±11.57 b 103.24±11.63 b 132.88±9.67 b 57.48±4.52 b 说明:同列不同小写字母表示不同栽培模式间差异显著(P<0.05)。
下载: 导出CSV
表 4 3种栽培模式金线莲叶片呈色相关代谢物及金线莲苷积累模式
Table 4. Accumulation patterns of leaf color-related metabolites and anoectochilide in A. roxburghii leaves under 3 cultivation modes
代谢物 分子式 分子量 保留时
间/min样本组平均峰面积 FC(林下苗
对比组培苗)FC(大棚苗
对比组培苗)林下苗 大棚苗 组培苗 山奈酚3-O-半乳糖苷 C21 H20 O11 448.10 5.58 82 761 714.06 18 200 905.57 5 937 831.55 13.94 3.07* 山奈酚 C15 H10 O6 286.05 5.55 71 830 073.67 10 126 566.84 7 122 341.12 10.09 1.42 槲皮素-3-β-D-葡萄糖苷 C21 H20 O12 464.10 5.44 498 355 861.22 278 608 887.16 58 990 040.32 8.45* 4.72** 槲皮素-3-β-吡喃葡萄糖
基-6′-乙酸酯C23 H22 O13 506.11 5.49 13 076 535.97 8 018 878.22 1 605 444.80 8.15 4.99 槲皮素 C15 H10 O7 302.04 5.47 1 093 362 589.56 309 242 833.28 154 167 357.96 7.09** 2.01 鼠李素 C16 H12 O7 316.06 4.99 3 560 894.43 2 399 029.97 1 014 029.88 3.51* 2.37** 芦丁 C27 H30 O16 282.07 5.43 110 4391 225.05858 910 817.17 367 035 144.56 3.01** 2.34* 草质素苷 C21 H20 O11 448.10 7.37 907 063.36 470 969.28 411 183.83 2.21 1.15 槲皮素-O-葡萄糖苷 C21 H20 O12 464.10 8.66 1 322 240.44 834 116.34 622 380.41 2.12* 1.34 杨梅素-3-O-半乳糖苷 C21 H20 O13 480.09 4.96 4 445 195.92 8 919 418.11 4318637.53 1.03 2.07 杨梅素 C15 H10 O8 318.04 5.12 6 872 881.49 5 255 397.20 2 746 209.88 2.50* 1.91 杨梅苷 C21 H20 O12 464.10 5.22 20 230 797.83 18 785 122.30 11 871 927.24 1.70 1.58* 异鼠李素 C16 H12 O7 316.06 6.00 74 759 573.19 239 505 172.13 15 907 498.80 4.70* 15.06 异鼠李素-3-葡萄糖苷 C22 H22 O12 478.11 5.58 132 777 859.96 155 325 252.63 9818351.89 13.52 15.82* 槲皮素-3,4′-二-O-葡萄糖苷 C27 H30 O17 626.15 5.33 557 689 050.93 512 265 669.30 90 100 955.00 6.19* 5.69** 金线莲苷 C10 H16 O8 264.08 1.78 12 350 087 228.67 8 517 203 897.67 10 828 087 152.00 1.14* 0.79* 飞燕草素葡萄糖苷 C21 H21 Cl O12 500.07 4.86 1 149 184.12 1 202 454.76 1 677 140.85 0.69 0.72 矮牵牛素-3-O-芸香糖苷 C28 H33 O16 625.17 5.23 2 158 851.50 1 239 224.25 5 972 002.34 0.36** 0.21** 说明:*表示差异显著(P<0.05);**表示差异极显著(P<0.01)。
下载: 导出CSV
表 5 3种栽培模式金线莲中金线莲苷质量分数
Table 5. Content of kinsenoside and its isomer of A. roxburghii cultivated under 3 cultivation modes
名称 金线莲苷/(mg·g−1) 全草 根 茎 叶片 组培苗 5.84±0.46 b** 2.22±0.14 b 6.14±0.33 a** 4.67±0.30 b** 大棚苗 1.92±0.38 c** 0.81±0.01 c 2.48±0.18 b** 1.73±0.11 c* 林下苗 7.31±0.24 a** 2.53±0.13 a 6.93±1.09 b** 5.43±0.06 a** 说明:同列不同小写字母表示不同栽培模式间差异显著(P<0.05); *和**分别表示同一栽培模式下金线莲其他部位与根相比差异显著(P<0.05)和差异极显著(P<0.01)。
下载: 导出CSV
-
[1] YE Shenyi, SHAO Qingsong, ZHANG Ailian. Anoectochilus roxburghii: a review of its phytochemistry, pharmacology, and clinical applications[J]. Journal of Ethnopharmacology, 2017, 209: 184−202. DOI: 10.1016/j.jep.2017.07.032. [2] 《浙江植物志(新编)》编辑委员会. 浙江植物志(新编): 第10卷[M]. 杭州: 浙江科学技术出版社, 2021: 212−220. Editorial Committee of Flora of Zhejiang (New Edition). Flora of Zhejiang (New Edition) Vol: 10[M]. Hangzhou: Zhejiang Science and Technology Press, 2021: 212−220. [3] 中国科学院中国植物志编辑委员会. 中国植物志: 第17卷[M]. 北京: 科学出版社, 1999: 220. Editorial Committee of Flora of China, Chinese Academy of Sciences. Flora of China: Vol. 17[M]. Beijing: Science Press, 1999: 220. [4] 邵清松, 叶申怡, 周爱存, 等. 金线莲种苗繁育及栽培模式研究现状与展望[J]. 中国中药杂志, 2016, 41(2): 160−166. SHAO Qingsong, YE Shenyi, ZHOU Aicun, et al. Current researches and prospects of seedling propagation and cultivation modes of Jinxianlian[J]. China Journal of Chinese Materia Medica, 2016, 41(2): 160−166. DOI: 10.4268/cjcmm20160202. [5] 朱建军, 黄雨佳, 金建红, 等. 不同栽培基质对金线莲3种基原植物生长及其活性成分含量的影响[J]. 中国中药杂志, 2019, 44(12): 2467−2471. ZHU Jianjun, HUANG Yujia, JIN Jianhong, et al. Effect of cultivation substrate on growth and active component contents of Anoectochilus roburghii from three different origins[J]. China Journal of Chinese Materia Medica, 2019, 44(12): 2467−2471. DOI: 10.19540/j.cnki.cjcmm.20190505.103. [6] 陈莹, 王文义, 谌赛男, 等. 不同品系及生长期金线莲的金线莲苷含量变化研究[J]. 中国现代中药, 2021, 23(8): 1423−1429. CHEN Ying, WANG Wenyi, CHEN Sainan, et al. Changes in kinsenoside content of different strains of Anoectochilus roxburghii at different growth periods[J]. Modern Chinese Medicine, 2021, 23(8): 1423−1429. DOI: 10.13313/j.issn.1673-4890.20200911001. [7] 张超, 吴建国, 易骏, 等. HPLC-ELSD法测定3种植物基原金线莲的金线莲苷含量[J]. 食品工业科技, 2017, 38(2): 75−78. ZHANG Chao, WU Jianguo, YI Jun, et al. Content determination of kinsenoside in Jin-Xian-Lian from three Anoectochilus species by HPLC-ELSD[J]. Science and Technology of Food Industry, 2017, 38(2): 75−78. DOI: 10.13386/j.issn1002-0306.2017.02.006. [8] ZHANG Wenting, CHEN Ke, MEI Yu, et al. De novo transcriptome assembly of Anoectochilus roxburghii for morphological diversity assessment and potential marker development[J]. Plants, 2024, 13(23): 3262. DOI: 10.3390/plants13233262. [9] 黄锦春, 万思琦, 陈扬, 等. 利用ISSR与SRAP分子标记分析金线莲种质资源遗传多样性[J]. 浙江农林大学学报, 2023, 40(1): 22−29. HUANG Jinchun, WAN Siqi, CHEN Yang, et al. Genetic diversity of Anoectochilus roxburghii based on ISSR and SRAP molecular markers[J]. Journal of Zhejiang A&F University, 2023, 40(1): 22−29. DOI: 10.11833/j.issn.2095-0756.20220473. [10] 袁媛, 郑汉, 黄璐琦. 再论道地药材 “优形、优质、优效” 特征成因及研究模式[J]. 中国中药杂志, 2024, 49(15): 3977−3985. YUAN Yuan, ZHENG Han, HUANG Luqi. Review of contributing factors and research model of “excellent shape, high quality, and superior effect” of Dao-di herbs[J]. China Journal of Chinese Materia Medica, 2024, 49(15): 3977−3985. DOI: 10.19540/j.cnki.cjcmm.20240516.103. [11] 袁媛, 黄璐琦. 道地药材评价理论的传承与创新[J]. 中国中药杂志, 2025, 50(13): 3522−3528. YUAN Yuan, HUANG Luqi. Inheritance and innovation: theoretical evolution in assessing Dao-di herbs[J]. China Journal of Chinese Materia Medica, 2025, 50(13): 3522−3528. DOI: 10.19540/j.cnki.cjcmm.20250506.101. [12] QI Changxing, ZHOU Qun, YUAN Zhou, et al. Kinsenoside: a promising bioactive compound from Anoectochilus species[J]. Current Medical Science, 2018, 38(1): 11−18. DOI: 10.1007/s11596-018-1841-1. [13] 王建栋, 王红珍, 张爱莲, 等. 金线莲苷研究进展[J]. 中国医院药学杂志, 2015, 35(19): 1795−1798,1802. WANG Jiandong, WANG Hongzhen, ZHANG Ailian, et al. Recent advances in kinsenoside studies[J]. Chinese Journal of Hospital Pharmacy, 2015, 35(19): 1795−1798,1802. DOI: 10.13286/j.cnki.chinhosppharmacyj.2015.19.22. [14] ZOU Xiaoxue, ZHANG Kexin, LI Xuezhen, et al. Current advances on the phytochemistry, pharmacology, quality control and applications of Anoectochilus roxburghii[J]. Frontiers in Pharmacology, 2025, 15: 1527341. DOI: 10.3389/fphar.2024.1527341. [15] XIANG Ming, LIU Tingting, TIAN Cheng, et al. Kinsenoside attenuates liver fibro-inflammation by suppressing dendritic cells via the PI3K-AKT-FoxO1 pathway[J]. Pharmacological Research, 2022, 177: 106092. DOI: 10.1016/j.phrs.2022.106092. [16] DU Xiaoming, IRINO N, FURUSHO N, et al. Pharmacologically active compounds in the Anoectochilus and Goodyera species[J]. Journal of Natural Medicines, 2008, 62(2): 132−148. DOI: 10.1007/s11418-007-0169-0. [17] ZHANG Feng, HAN Bei, LI Peng, et al. Design, synthesis and hepatoprotective activity of analogs of the natural product goodyeroside A[J]. Molecules, 2013, 18(2): 1933−1948. DOI: 10.3390/molecules18021933. [18] WANG Hongzhen, LI Lulu, YE Junzhe, et al. Integrated phenotypic, DNA barcoding, chemotypic, metabolomic, and transcriptomic analyses for quality assessment of Anoectochilus roxburghii and identification of key metabolites and enzyme genes in kinsenoside biosynthesis and leaf non-green coloration[J]. Industrial Crops and Products, 2025, 235: 121770. DOI: 10.1016/j.indcrop.2025.121770. [19] 李璐璐, 朱志彬, 李水坤, 等. 金线莲中金线莲苷及其差向异构体和内源激素测定[J]. 浙江农林大学学报, 2025, 42(2): 230−238. LI Lulu, ZHU Zhibin, LI Shuikun, et al. Detection of kinsenoside and it’s isomer, endogenous hormones in Anoectochilus roxburghii[J]. Journal of Zhejiang A&F University, 2025, 42(2): 230−238. DOI: 10.11833/j.issn.2095-0756.20240435. [20] 谢宗万. 中药品种传统经验鉴别“辨状论质”论[J]. 时珍国药研究, 1994, 5(3): 19−21. XIE Zongwan. On “differentiation of symptoms and quality” in traditional experience identification of traditional Chinese medicine varieties[J]. Lishizhen Medicine and Materia Medica Research, 1994, 5(3): 19−21. [21] 刘天睿, 金艳, 孟虎彪, 等. 论中药“辨状论质”之辨色泽与品质评价的生物学内涵研究[J]. 中国中药杂志, 2020, 45(19): 4545−4554. LIU Tianrui, JIN Yan, MENG Hubiao, et al. Biological research of color and quality evaluation in “quality discrimination by character” of Chinese medicine[J]. China Journal of Chinese Materia Medica, 2020, 45(19): 4545−4554. DOI: 10.19540/j.cnki.cjcmm.20200726.102. [22] 王皓南, 田滢琦, 刘大会, 等. 中药“辨状论质”的历史、发展与应用[J]. 中药材, 2021, 44(3): 513−519. WANG Haonan, TIAN Yingqi, LIU Dahui, et al. History, development and application of the traditional Chinese medicine “quality evaluation through morphological identification”[J]. Journal of Chinese Medicinal Materials, 2021, 44(3): 513−519. DOI: 10.13863/j.issn1001-4454.2021.03.001. [23] TANG Qian, LI Zhibo, CHEN Ningxin, et al. Natural pigments derived from plants and microorganisms: classification, biosynthesis, and applications[J]. Plant Biotechnology Journal, 2025, 23(2): 592−614. DOI: 10.1111/pbi.14522. [24] 张和臣, 袁欣, 高杰, 等. 植物花瓣呈色机理及花色分子育种[J]. 生物技术通报, 2023, 39(5): 23−31. ZHANG Hechen, YUAN Xin, GAO Jie, et al. Mechanism of flower petal coloration and molecular breeding[J]. Biotechnology Bulletin, 2023, 39(5): 23−31. DOI: 10.13560/j.cnki.biotech.bull.1985.2022-1229. [25] FANG Zhoutao, SONG Chujun, XU Hairong, et al. Dynamic changes in flavonol glycosides during production of green, yellow, white, oolong and black teas from Camellia sinensis L. (cv. Fudingdabaicha)[J]. International Journal of Food Science & Technology, 2019, 54(2): 490−498. DOI: 10.1111/ijfs.13961. [26] FENG Yi, LI Jiyuan, YIN Hengfu, et al. Multi-omics analysis revealed the mechanism underlying flavonol biosynthesis during petal color formation in Camellia nitidissima[J]. BMC Plant Biology, 2024, 24(1): 847. DOI: 10.1186/s12870-024-05332-w. [27] LI Yaohua, RAN Lingfang, MO Tong, et al. Yellow petal locus GaYP promotes flavonol biosynthesis and yellow coloration in petals of Asiatic cotton (Gossypium arboreum)[J]. Theoretical and Applied Genetics, 2023, 136(5): 98. DOI: 10.1007/s00122-023-04329-7. [28] JIANG Lina, HAN Leiqin, ZHANG Wenxuan, et al. Elucidation of the key flavonol biosynthetic pathway in golden Camellia and its application in genetic modification of tomato fruit metabolism[J]. Horticulture Research, 2025, 12(2): uhae308. DOI: 10.1093/hr/uhae308. [29] 张恒滨, 黄玲, 胡先梅, 等. 郁金香二氢黄酮醇4-还原酶基因TgDFR1和TgDFR2的克隆与功能鉴定[J]. 浙江大学学报(农业与生命科学版), 2025, 51(1): 118−127. ZHANG Hengbin, HUANG Ling, HU Xianmei, et al. Cloning and functional identification of the dihydroflavonol 4-reductase genes TgDFR1 and TgDFR2 in tulips[J]. Journal of Zhejiang University (Agriculture & Life Sciences), 2025, 51(1): 118−127. DOI: 10.3785/j.issn.1008-9209.2024.12.022. [30] ZHENG Ying, LI Lihong, LIU Xinting, et al. The improvement of kinsenoside in wild-imitated cultivation Anoectochilus roxburghii associated with endophytic community[J]. Industrial Crops and Products, 2024, 208: 117896. DOI: 10.1016/j.indcrop.2023.117896. [31] ZHENG Ying, LIN Chuyu, SUN Xutong, et al. Microbiota succession drives changes in active ingredients and alters the quality of Anoectochilus roxburghii during wild-imitated cultivation[J]. Industrial Crops and Products, 2025, 235: 121726. DOI: 10.1016/j.indcrop.2025.121726. -

-
链接本文:
https://zlxb.zafu.edu.cn/article/doi/10.11833/j.issn.2095-0756.20260170
 点击查看大图
计量
- 文章访问数: 10
- HTML全文浏览量: 7
- PDF下载量: 1
- 被引次数: 0
