



-
随着小流域综合治理、天然林保护、退耕还林(草)等生态工程[1]的持续推进,黄土高原植被覆盖整体显著上升,生态环境明显好转[2]。但随着植被恢复持续推进,人工林经营的核心问题已逐渐从增加植被覆盖转向提高群落质量和维持生态稳定性[3]。林分密度是影响人工林结构、资源分配和林下微环境的重要因子,其变化可通过改变林冠郁闭度、林下光照、凋落物输入和种间竞争强度,进一步影响林下植物的定居、生长和物种共存。林下植被作为森林生态系统的重要组成部分,不仅影响物种共存和群落更新过程,还与养分循环、地表覆盖、土壤保持和生态系统多功能性密切相关[4]。因此,明确林分密度变化对林下灌草群落组成及多样性格局的影响,对于优化人工林密度调控、维持林下植被多样性和提升人工林群落稳定性具有重要意义。
油松Pinus tabuliformis耐旱性强且根系发达,是黄土高原生态修复与建设中的重要造林树种[5−6]。围绕油松人工林林下植被响应,已有研究表明适度降低林分密度有利于提高林下植物丰富度并改善群落结构[7−9],促进林下植被更新[10−11];高密度造林可能加剧乔木层与林下植被之间的资源竞争[12−13]。现有研究已从林分密度、林下植被多样性等方面为油松人工林经营提供了重要基础,但仍存在2个方面的不足:一是部分研究仍将林下植被作为整体分析,较少将其区分为灌木层和草本层[14];二是已有研究多关注物种丰富度、Shannon-Wiener指数等α多样性指标的变化,而对不同密度下优势种组成如何替换、群落组成是否发生分化及其差异来源关注不足[15]。α多样性可以判断群落内部物种丰富度和均匀度变化,却难以解释不同密度间群落组成差异的来源;β多样性能够反映不同样地或处理间物种组成差异,并可进一步分解为物种周转组分和嵌套组分[16−17]。将α多样性与β多样性相结合,有助于从样地内多样性水平和样地间物种组成分异2个层面识别林下群落对林分密度变化的响应机制[18]。
因此,本研究聚焦于黄土高原油松人工林,探讨不同林分密度下灌木层和草本层组成及多样性的差异特征,拟探讨以下问题:(1)不同林分密度下,油松人工林灌木层和草本层优势种组成及整体群落组成的差异;(2)不同林分密度下,灌木层和草本层α多样性及β多样性的变化规律,群落组成分异的主要表现,以及对群落组成分异贡献较大的关键物种。本研究可为黄土高原人工造林地密度配置、后续抚育管理和林下植物多样性维持提供参考。
-
研究区位于陕西省延安市吴起县(36°33′~37°24′N,107°38′~108°32′E),地处黄土高原丘陵沟壑区。吴起县总面积3 791.5 km2,海拔为1 233~1 730 m,年均气温为8.0~10.0 ℃,年均降水量为484.0 mm,6—9月的降水量最大,约占全年的65%。土壤类型以黄绵土为主,土层较厚。2005年,在退耕地基础上栽植乔木。原土地利用均为旱地,主要种植谷物和豆类。林下灌木层和草本层植物未见人工栽植,主要为原有植被保留及自然定居更新。乔木层以油松为主[19],郁闭度约为40%,平均树高为7.84 m,平均胸径为11.33 cm,灌木层盖度为37%,常见种有沙棘Hippophae rhamnoides、拧条锦鸡儿Caragana korshinskii等[20];草本层盖度为43%,主要有风毛菊Saussurea japonica、长芒草Stipa bungeana、西山委陵菜Potentilla sischanensis、草木樨状黄芪Astragalus melilotoides、白莲蒿Artemisia sacrorum等。
-
于2025年7—8月通过实地踏勘,确定立地条件相近、林分发育状况较一致的不同林分密度油松林为研究对象,设置低密度(800 株·hm−2)、中低密度(1 200 株·hm−2)、中密度(1 600 株·hm−2)、中高密度(2 000 株·hm−2)、高密度(2 400株·hm−2)共5个密度水平,每个密度设置3块20 m×20 m的样地。在每个乔木样方的中心及四角布设5个5 m×5 m的灌木样方,并在每个灌木样方中心各设置1个1 m×1 m的草本样方[21],进行灌草植被群落调查,记录植物的种类、株高、株数、盖度等。使用罗盘和全球定位系统(GPS)测定样地的坡度和坡向,采用投影法测算郁闭度,使用胸径尺和测高仪分别测量乔木胸径与树高。样地基本信息见表1。
表 1 样地基本信息表
Table 1. Basic information table of sample plots
样地编号 林分密度/
(株·hm−2)林分密
度等级林龄/a 北纬/(°N) 东经/(°E) 海拔/m 坡度/(°) 坡向 郁闭度/% 平均
树高/m平均胸
径/cm1 800 低密度 20 36.805 25 107.832 40 1 610.0 28 半阳坡 18 6.17 9.90 2 800 低密度 20 36.850 75 107.852 39 1 625.0 29 半阳坡 16 6.10 9.86 3 800 低密度 20 36.770 66 107.912 44 1 617.5 28 半阳坡 20 6.24 9.33 4 1 200 中低密度 20 36.821 15 107.874 71 1 595.0 25 半阳坡 22 8.85 11.98 5 1 200 中低密度 20 36.795 05 107.879 70 1 565.0 25 半阳坡 23 8.51 11.99 6 1 200 中低密度 20 36.843 22 107.937 73 1 572.5 24 半阳坡 22 8.58 12.51 7 1 600 中密度 20 36.849 80 107.886 60 1 557.5 21 半阳坡 33 8.91 11.94 8 1 600 中密度 20 36.811 10 107.907 30 1 520.0 21 半阳坡 30 8.98 12.47 9 1 600 中密度 20 36.821 11 107.936 00 1 527.5 20 半阳坡 31 9.05 12.43 10 2 000 中高密度 20 36.840 08 107.756 20 1 535.0 23 半阳坡 32 7.37 12.40 11 2 000 中高密度 20 36.813 56 107.765 18 1 542.5 23 半阳坡 33 8.30 11.90 12 2 000 中高密度 20 36.803 60 107.967 25 1 550.0 22 半阳坡 30 7.44 11.81 13 2 400 高密度 20 36.803 00 107.794 80 1 580.0 26 半阳坡 35 7.78 10.83 14 2 400 高密度 20 36.844 10 107.972 80 1 587.5 26 半阳坡 36 7.71 10.30 15 2 400 高密度 20 36.79009 107.94683 1 602.5 27 半阳坡 36 7.64 10.36 -
植物群落多样性特征选用Margalef丰富度指数(R)、Simpson多样性指数(D)、Shannon-Wiener多样性指数(H)和Pielou均匀度指数(E)[22]。
-
为分析不同林分密度林下灌木层和草本层群落组成差异,分别构建灌木层和草本层物种重要值矩阵,采用Bray-Curtis距离表征不同样地间灌木层和草本层群落组成差异,并通过主坐标分析(PCoA)对不同林分密度下灌木层和草本层群落组成差异进行排序展示。为进一步分析不同林分密度间群落组成差异来源,基于物种有无矩阵计算Jaccard相异性指数(βJAC),并将其分解为物种周转组分(βJTU)和嵌套组分(βJNE)[23]。
-
采用SPSS 26进行单因素方差分析或Kruskal-Wallis秩和检验比较不同林分密度下灌草多样性的差异显著性;基于物种重要值矩阵计算Bray-Curtis距离,采用PCoA分析群落组成分异,通过置换多元方差分析(Permutational Multivariate Analysis of Variance,PERMANOVA)检验不同林分密度下灌木层和草本层群落组成差异,并进一步采用置换多元离散度分析(Permutational Analysis of Multivariate Dispersions,PERMDISP)检验不同林分密度组内群落组成离散程度是否存在显著差异,以判断PERMANOVA结果是否受组内离散度差异影响;用物种有无矩阵计算相邻密度间的Jaccard相异性指数;基于灌木层和草本层的物种重要值矩阵计算物种对β多样性的贡献率(SCBD)。采用R 4.3.2完成PCoA、PERMANOVA、PERMDISP、β多样性分解和β多样性的贡献率计算;采用Origin 2022和Python绘图。
-
不同林分密度油松人工林林下灌木层和草本层优势种组成及重要值均发生变化(表2)。灌木层在低密度林分下以沙棘和文冠果Xanthoceras sorbifolium为主要优势种,重要值分别为40.98%和36.41%。当林分密度升高至中低密度时,拧条锦鸡儿重要值升至26.56%,成为主要优势种,文冠果和沙棘重要值分别降至22.08%和18.84%。中密度林分下,沙棘重要值升至33.50%,拧条锦鸡儿和蕤核Prinsepia uniflora重要值分别为23.48%和22.91%,灌木层优势种以沙棘、拧条锦鸡儿和蕤核为主。中高密度林分下,拧条锦鸡儿重要值升至48.34%,成为该密度下最主要的优势灌木。高密度林分下,蒙古莸Caryopteris mongholica和蕤核重要值分别达到56.93%和34.31%,成为主要优势种。总体来看,灌木层优势种随林分密度升高表现为由低密度下沙棘、文冠果占优变化为中高密度下拧条锦鸡儿、蒙古莸和蕤核占优。
表 2 不同林分密度油松林下灌草植物群落物种组成及其重要值
Table 2. Species composition and importance values of understory shrub and herb communities under different stand densities in P. tabuliformis plantations
林分密度
(株·hm−2)林下植
被类型物种组成及重要值 800 灌木 沙棘(40.98%)、文冠果(36.41%)、胡枝子(17.07%)、蕤核(5.54%) 草本 西山委陵菜(24.02%)、风毛菊(16.64%)、甘草(11.93%)、星毛委陵菜(10.58%)、华北米蒿(8.80%)、薹草(7.89%)、白莲蒿(6.79%)、硬质早熟禾(6.75%)、野菊(6.61%) 1 200 灌木 拧条锦鸡儿(26.56%)、文冠果(22.08%)、沙棘(18.84%)、河朔荛花(17.35%)、土庄绣线菊(11.36%)、斜茎黄芪(3.81%) 草本 西山委陵菜(18.99%)、风毛菊(15.00%)、长芒草(11.16%)、直立点地梅(9.41%)、草木樨状黄芪(8.38%)、委陵菜(7.43%)、北柴胡(7.32%)、白莲蒿(7.00%)、薹草(5.87%)、星毛委陵菜(5.50%)、岩败酱(3.95%) 1 600 灌木 沙棘(33.50%)、拧条锦鸡儿(23.48%)、蕤核(22.91%)、截叶铁扫帚(15.13%)、土庄绣线菊(4.98%) 草本 长芒草(14.95%)、毛连菜(12.62%)、风毛菊(9.82%)、鼠尾粟(8.80%)、香青兰(6.95%)、西山委陵菜(6.81%)、草木樨状黄芪(6.74%)、华北米蒿(6.20%)、白莲蒿(5.95%)、薹草(5.03%)、野菊(4.70%)、硬质早熟禾(4.24%)、星毛委陵菜(4.08%)、茜草(3.11%) 2 000 灌木 拧条锦鸡儿(48.34%)、胡枝子(22.76%)、河朔荛花(14.49%)、沙棘(14.41%) 草本 长芒草(20.05%)、风毛菊(12.03%)、草木樨状黄芪(10.28%)、白莲蒿(9.21%)、华北米蒿(7.33%)、香青兰(6.89%)、委陵菜(6.87%)、薹草(6.46%)、百里香(5.91%)、茜草(5.67%)、野菊(5.18%)、星毛委陵菜(4.11%) 2 400 灌木 蒙古莸(56.93%)、蕤核(34.31%)、沙棘(8.76%) 草本 白莲蒿(17.70%)、长芒草(15.70%)、风毛菊(13.36%)、草木樨状黄芪(11.02%)、华北米蒿(8.82%)、硬质早熟禾(8.80%)、委陵菜(7.17%)、薹草(6.25%)、野菊(5.75%)、百里香(5.43%) 说明:括号中的百分数为重要值。灌木层:沙棘Hippophae rhamnoides、文冠果Xanthoceras sorbifolium、胡枝子Lespedeza bicolor、蕤核Prinsepia uniflora、拧条锦鸡儿Caragana korshinskii、河朔荛花Wikstroemia chamaedaphne、土庄绣线菊Spiraea pubescens、斜茎黄芪Astragalus adsurgens、截叶铁扫帚Lespedeza cuneata、蒙古莸Caryopteris mongholica。草本层:西山委陵菜Potentilla sischanensis、风毛菊Saussurea japonica、甘草Glycyrrhiza uralensis、星毛委陵菜Potentilla acaulis、华北米蒿Artemisia giraldii、白莲蒿Artemisia sacrorum、硬质早熟禾Poa sphondylodes、野菊Dendranthema indicum、长芒草Stipa bungeana、直立点地梅Androsace erecta、草木樨状黄芪Astragalus melilotoides、委陵菜Potentilla chinensis、北柴胡Bupleurum chinense、岩败酱Patrinia rupestris、毛连菜Picris hieracioides、鼠尾粟Sporobolus fertilis、香青兰Dracocephalum moldavica,茜草Rubia cordifolia、百里香Thymus mongolicus、薹草Carex。 草本层在低密度林分下以西山委陵菜、风毛菊和甘草Glycyrrhiza uralensis为主要优势种,重要值分别为24.02%、16.64%和11.93%。中低密度林分下,西山委陵菜和风毛菊仍保持较高重要值,分别为18.99%和15.00%,长芒草和直立点地梅Androsace erecta重要值分别升至11.16%和9.41%,进入主要优势种组成。中密度林分下,长芒草重要值升至14.95%,毛连菜Picris hieracioides重要值达到12.62%,成为该密度下主要优势草本。中高密度林分下,长芒草重要值增加至20.05%,草木樨状黄芪和白莲蒿重要值分别为10.28%和9.21%;当林分密度增加到高密度时,白莲蒿和长芒草重要值较高,分别为17.70%和15.70%。总体来看,草本层优势种随林分密度升高表现为由低密度下西山委陵菜、风毛菊和甘草占优,变化为中高密度下长芒草、白莲蒿和草木樨状黄芪占优。
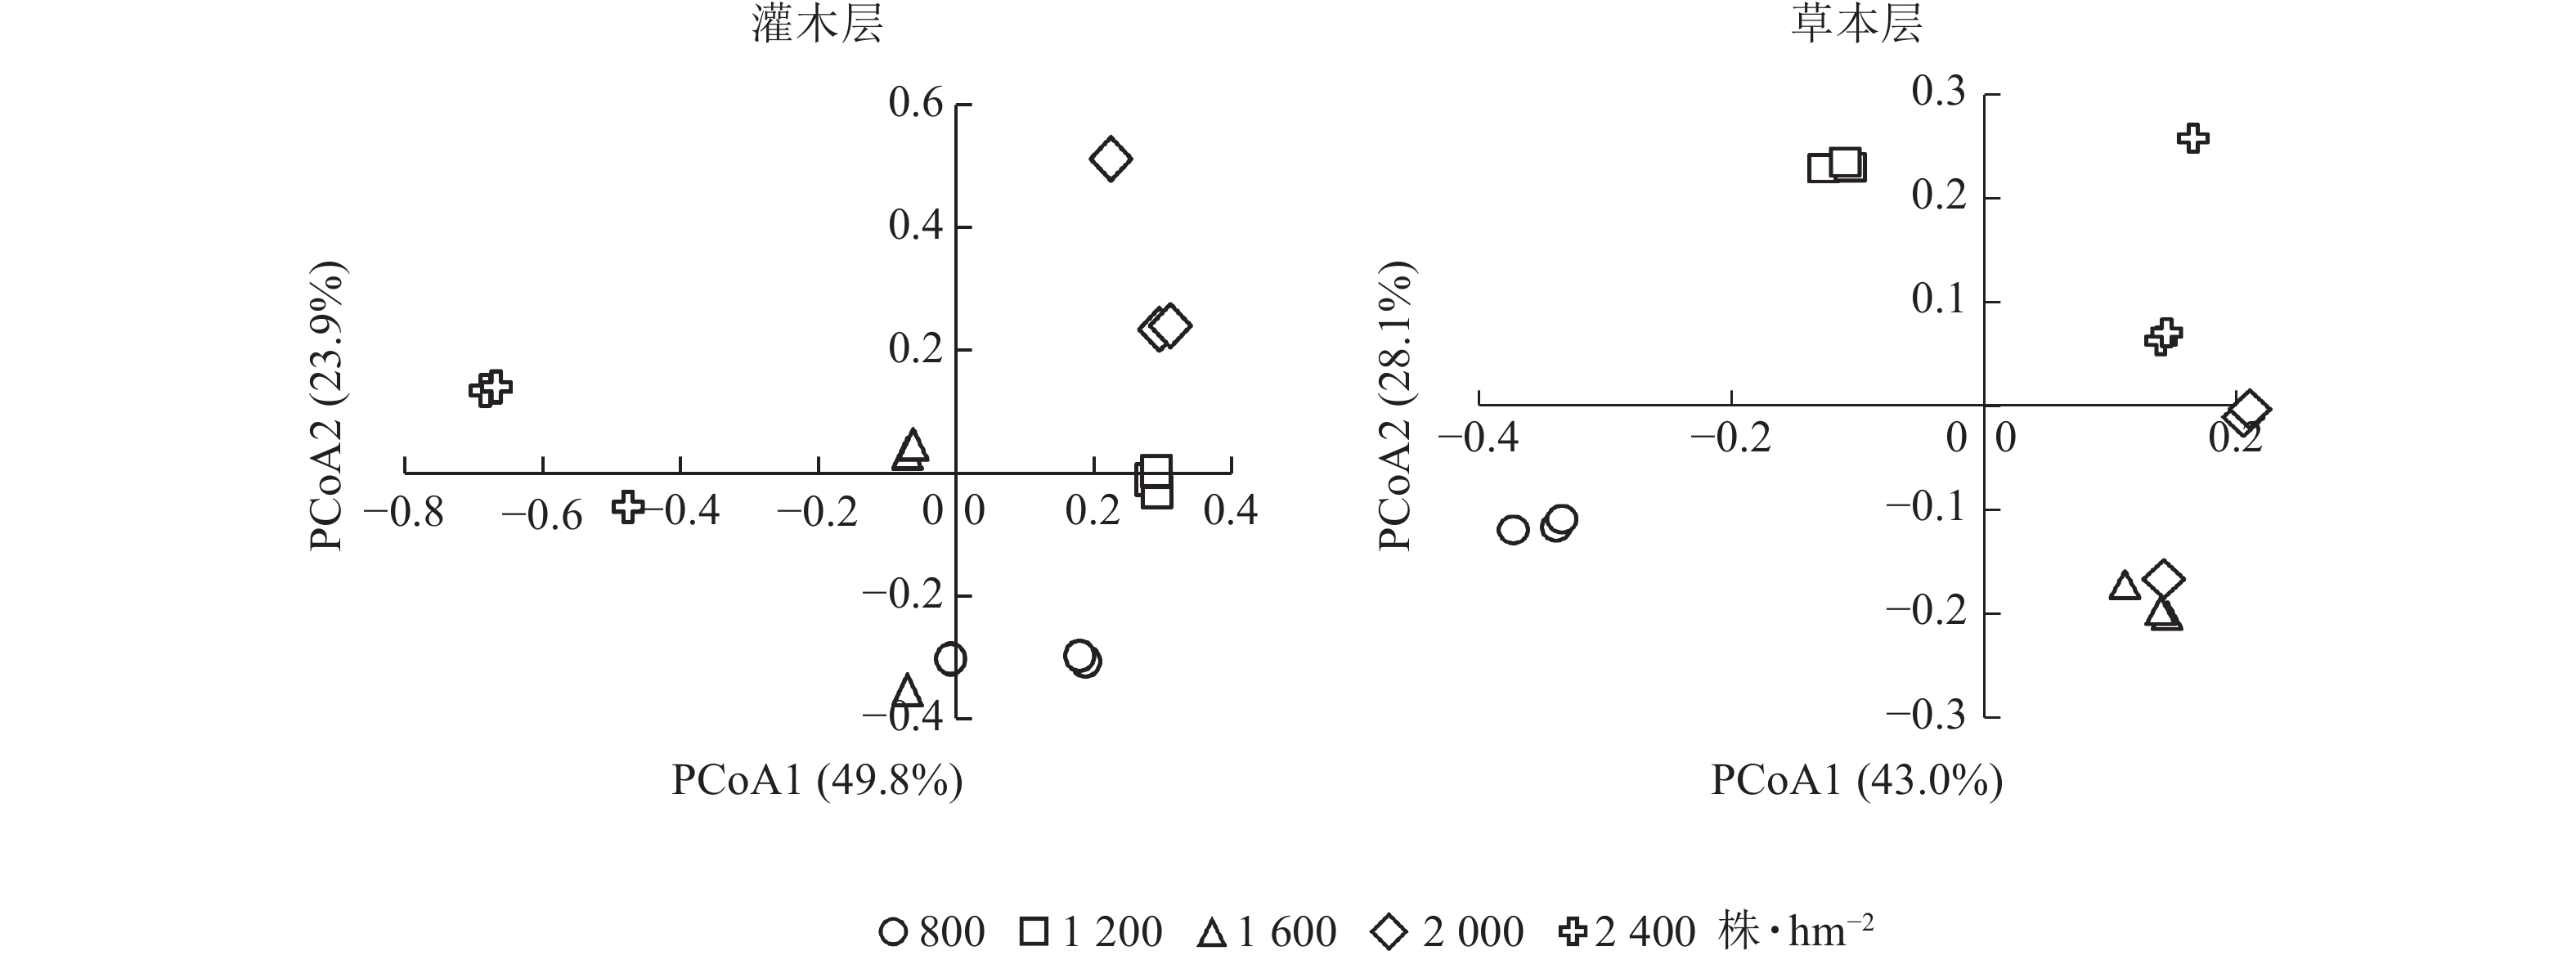
采用PCoA和PERMANOVA进一步探讨不同密度样地间群落组成是否发生整体分异。PCoA排序结果显示(图1):不同林分密度油松人工林林下灌木层和草本层群落组成均呈现分异特征。灌木层PCoA前2轴累计解释率为73.7%,其中高密度油松林与低、中密度油松林分离较明显,表明灌木层群落组成在不同林分密度间存在差异。草本层PCoA前2轴累计解释率为71.1%,低密度油松林与中高密度油松林沿PCoA1轴分离较明显,其中中高密度和高密度林分下样地距离相对较近,说明高林分密度下草本层群落组成相似性较高。
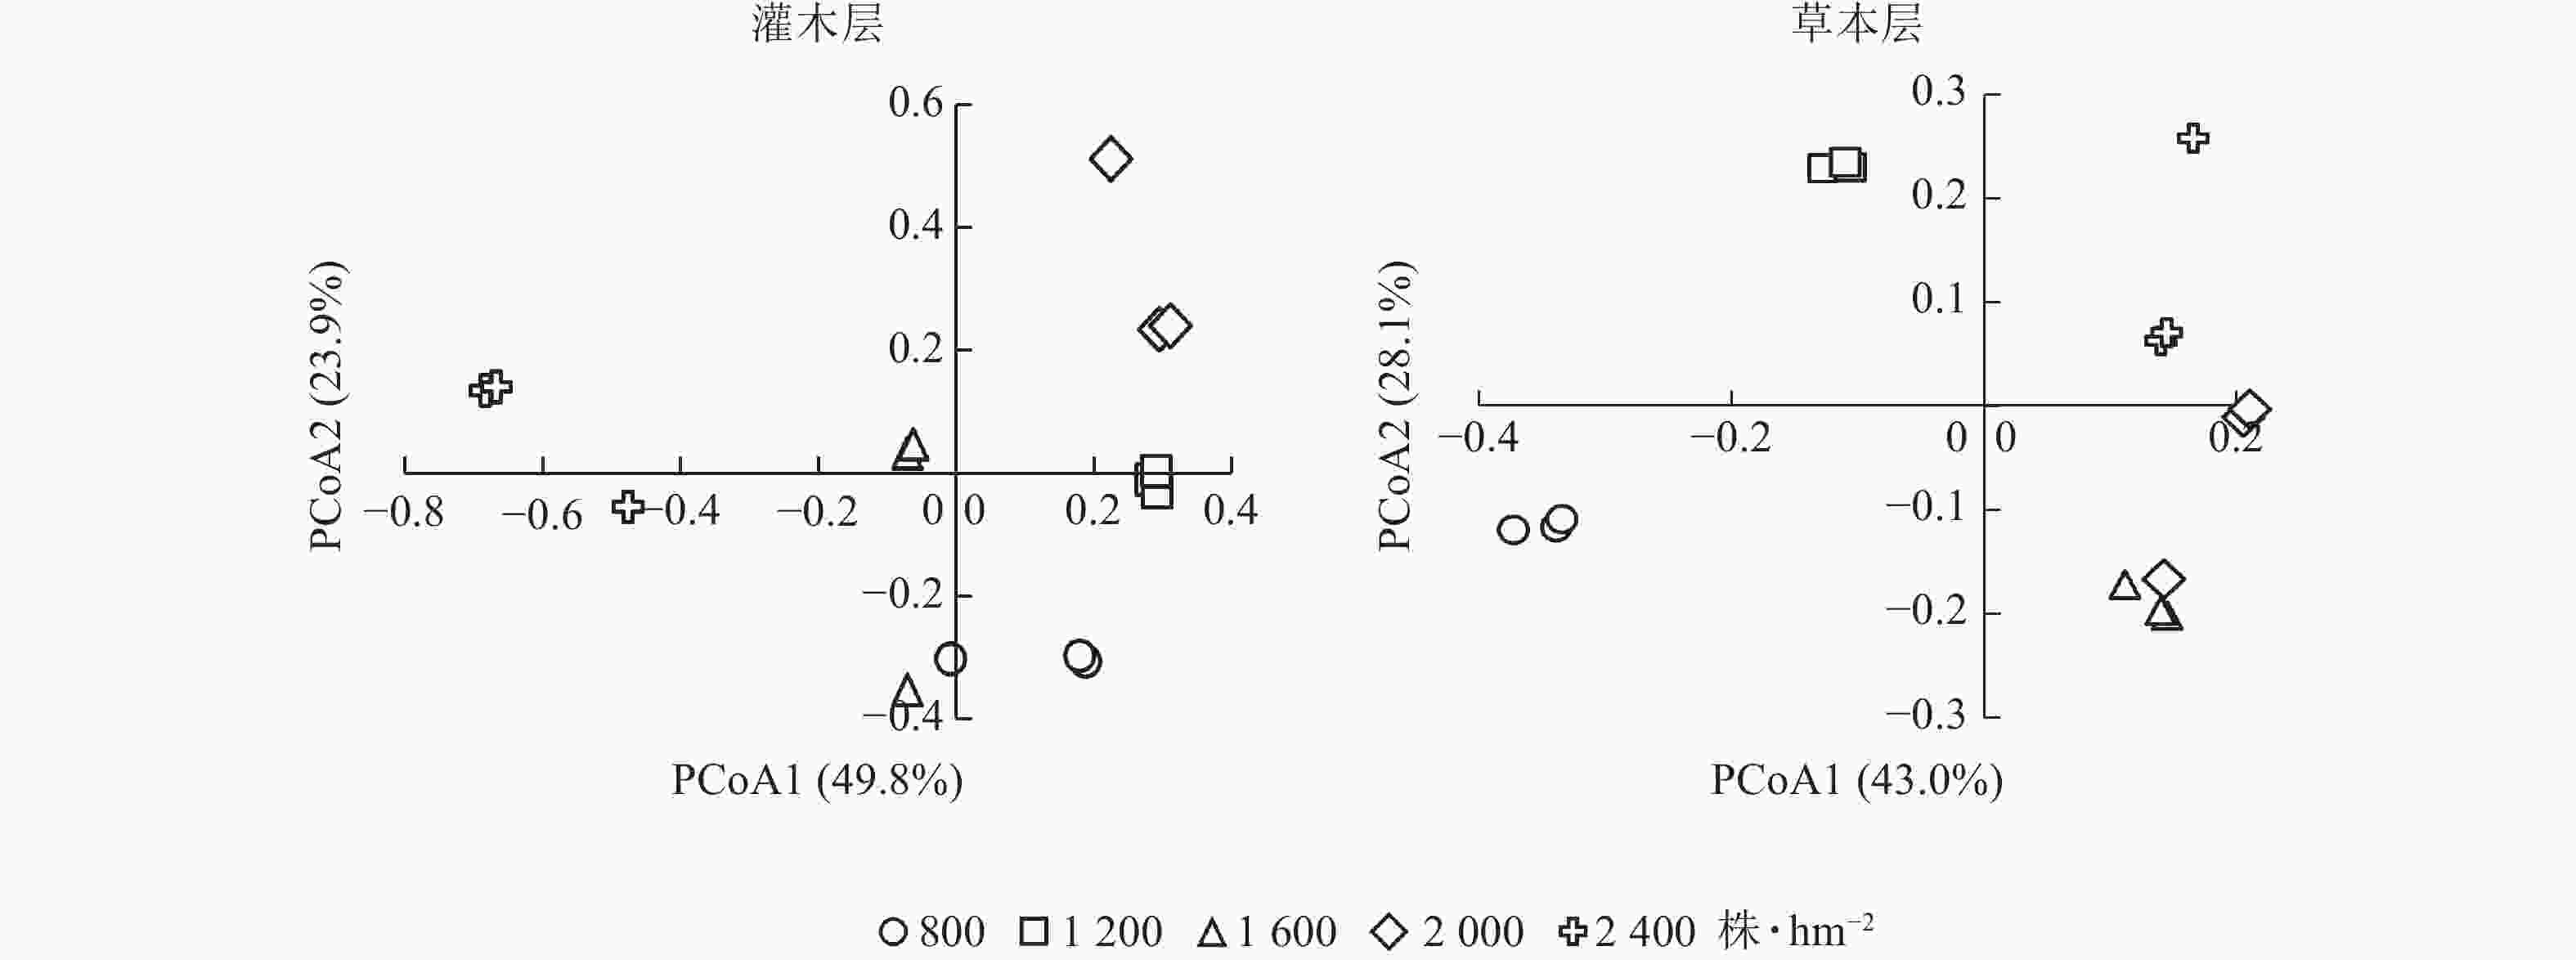
图 1 不同林分密度油松人工林林下灌木层和草本层群落组成PCoA排序
Figure 1. PCoA ordination of understory shrub and herb community composition under different stand densities of P. tabuliformis plantations
PERMANOVA结果表明(表3):不同林分密度样地间灌木层和草本层群落组成均存在显著差异。灌木层群落组成的解释率为87.1% (R2=0.871,P=0.001),草本层群落组成的解释率为95.7% (R2=0.957,P=0.001),灌木层在高密度阶段分离更明显,高密度油松林与低、中密度样地距离较远。草本层则表现为低密度样地与中高密度样地分离明显,而中高密度和高密度油松林组成相对接近,且不同密度组间灌木层和草本层群落组成离散程度差异均不显著(灌木层F4,10=0.254,P=0.906;草本层F4,10=0.211,P=0.927),表明置换多元方差分析结果主要反映不同密度组间群落组成差异,而非组内离散程度差异。
表 3 不同林分密度林下灌草群落组成差异及组内离散度检验
Table 3. Composition difference and intra group dispersion test of understory shrub grass community under different stand densities
林下植被类型 PERMANOVA PERMDISP F R2 P F P 灌木层 16.954 0.871 0.001 0.254 0.906 草本层 55.210 0.957 0.001 0.211 0.927 -
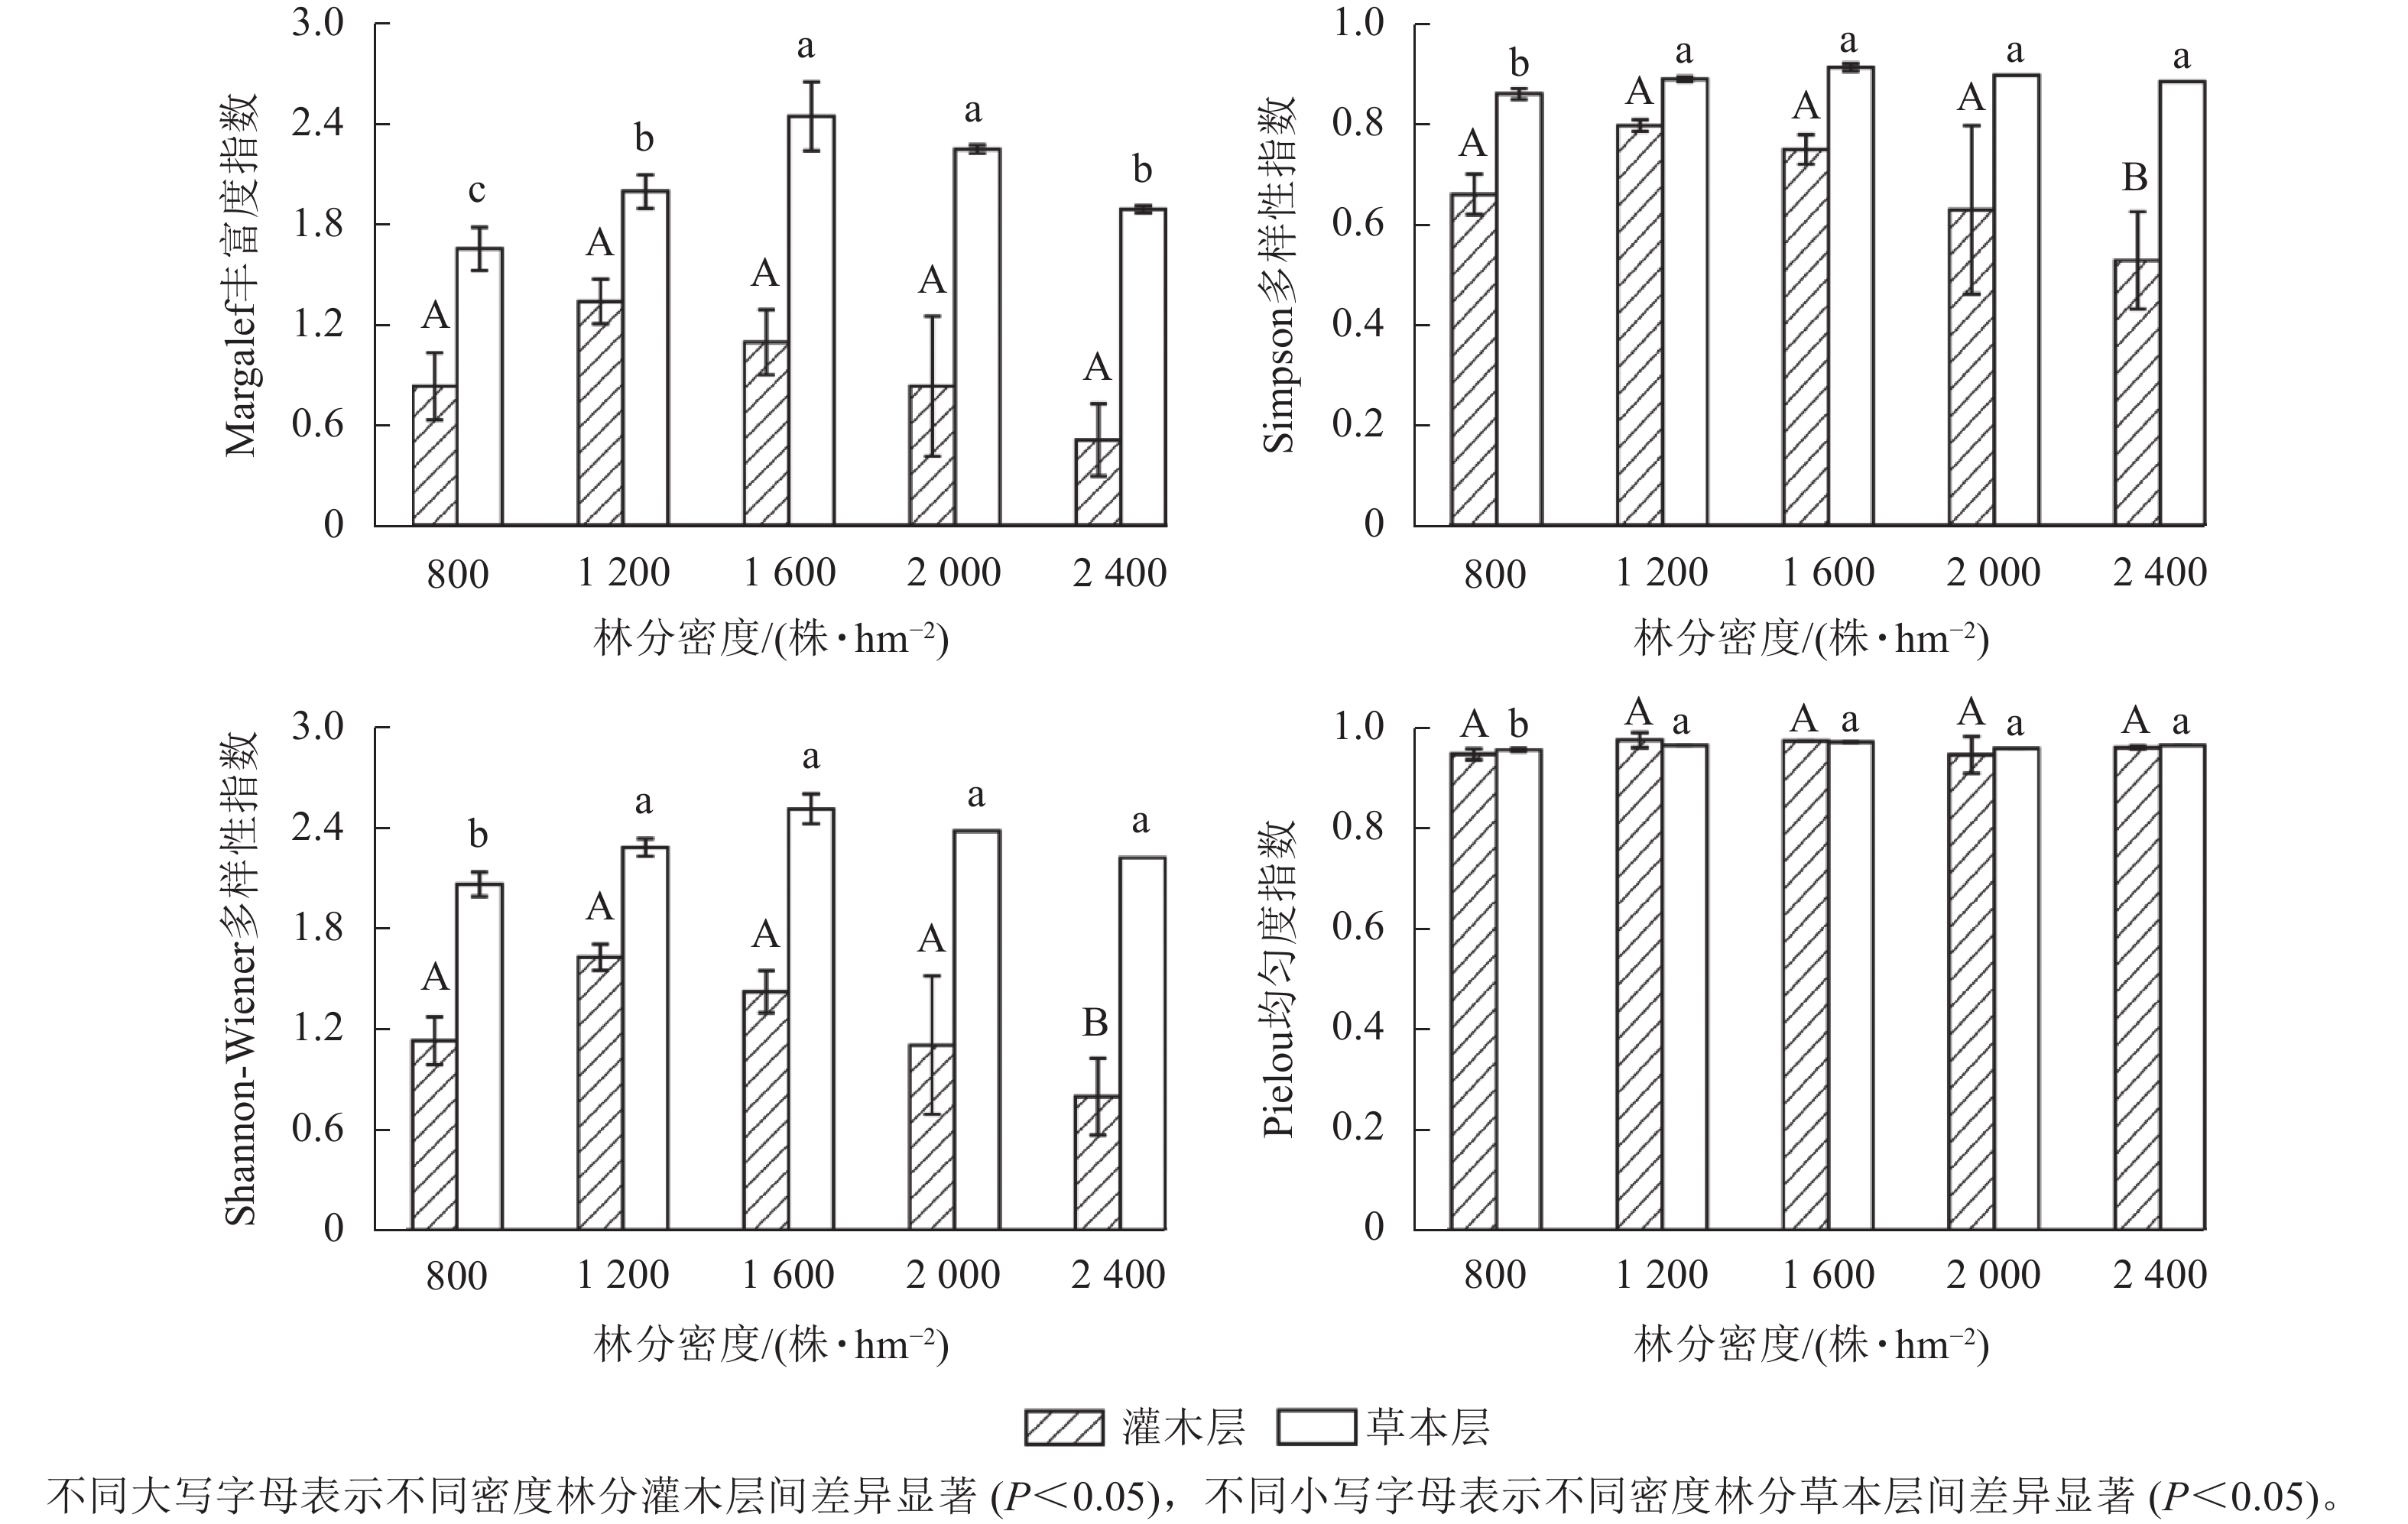
不同林分密度油松人工林林下灌木层和草本层α多样性表现出不同变化特征(图2)。灌木层多样性整体随林分密度增加呈先上升再下降的趋势,显著性检验表明,灌木层Shannon-Wiener多样性指数和Simpson多样性指数在不同林分密度间整体差异达到显著水平(P<0.05)。从数值变化看,Margalef丰富度指数、Shannon-Wiener指数、Simpson指数和Pielou均匀度指数均在中低密度林分下较高,分别为1.34、1.63、0.80和0.98,随后随林分密度升高整体下降,并在高密度林分下降至0.51、0.80、0.53和0.96。
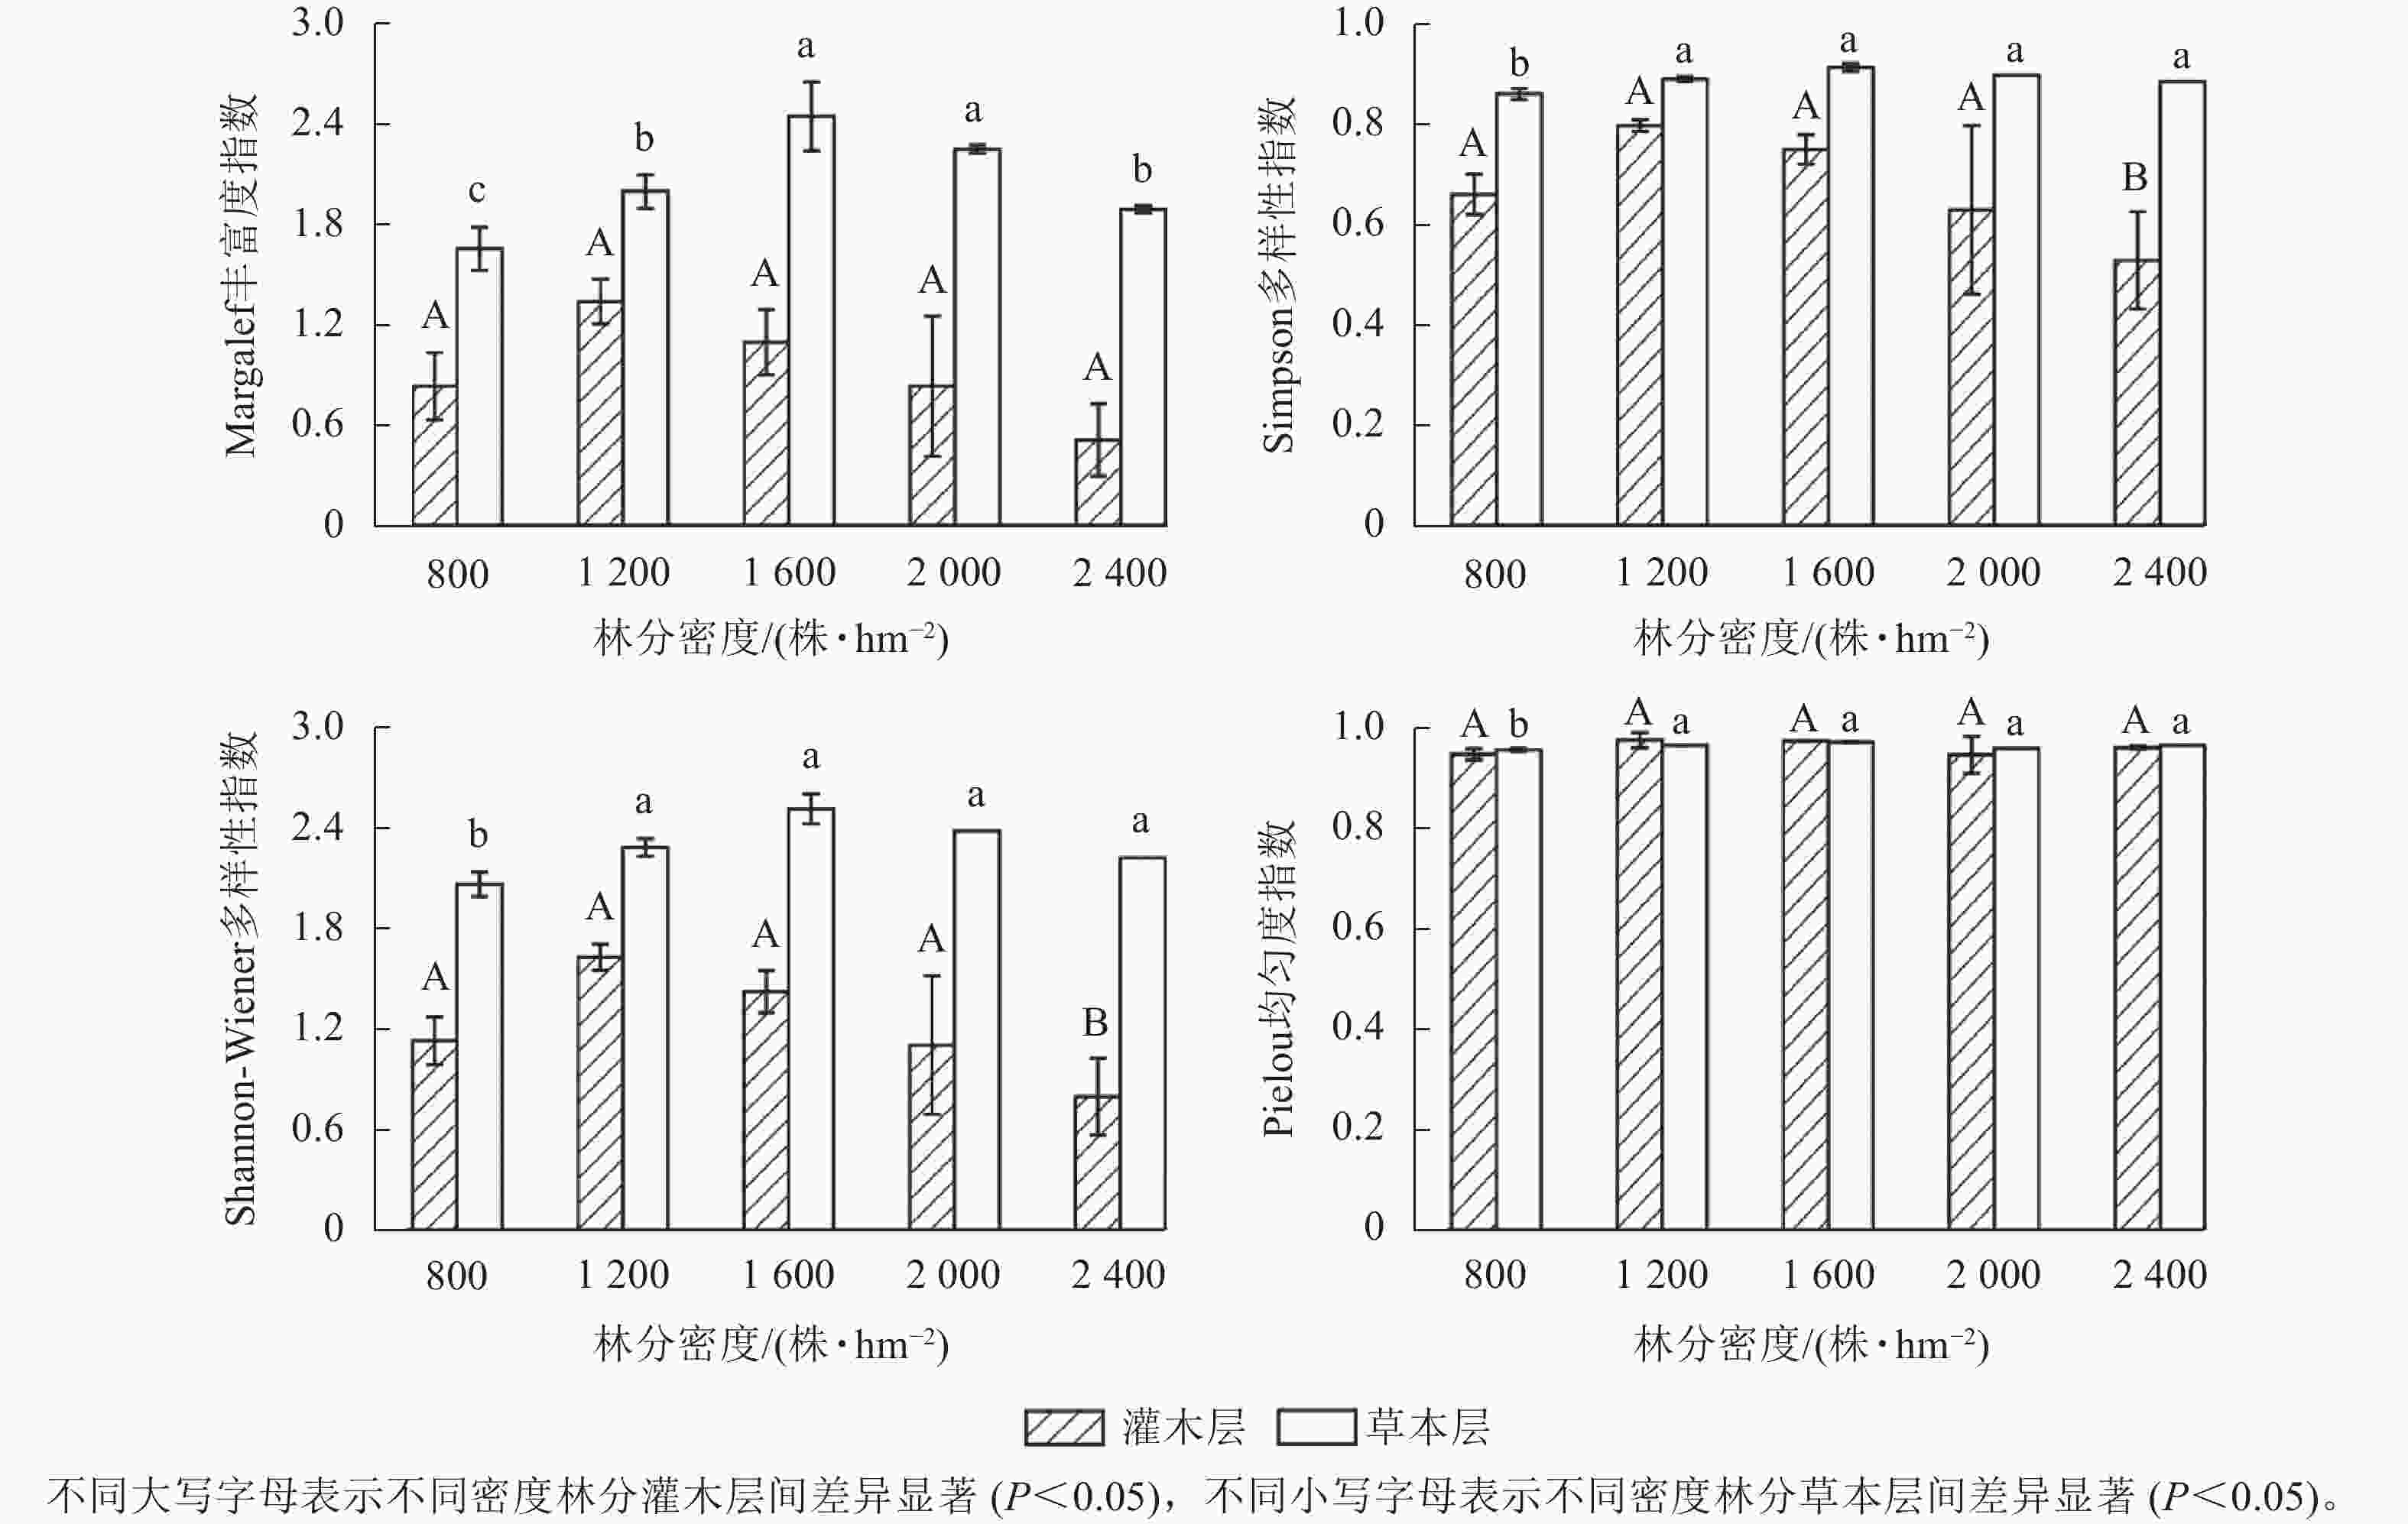
图 2 不同林分密度油松林下灌草植物多样性指数变化特征
Figure 2. Changes in diversity indices of understory shrub and herb layers under different stand densities of P. tabuliformis plantations
草本层α多样性随林分密度增加总体呈先升高后降低的变化趋势,显著性检验表明,草本层4个α多样性指数在不同林分密度间整体差异均达到显著水平(P<0.05)。从数值变化看,Margalef丰富度指数、Shannon-Wiener指数、Simpson指数和Pielou均匀度指数均在中密度林分下达到较高水平,分别为2.44、2.51、0.91和0.97;在高密度林分下分别下降至1.88、2.22、0.88和0.97。总体来看,灌木层α多样性较高值主要出现在中低密度林分,而草本层α多样性较高值主要出现在中密度林分,说明灌木层和草本层α多样性对林分密度变化的响应区间并不一致。
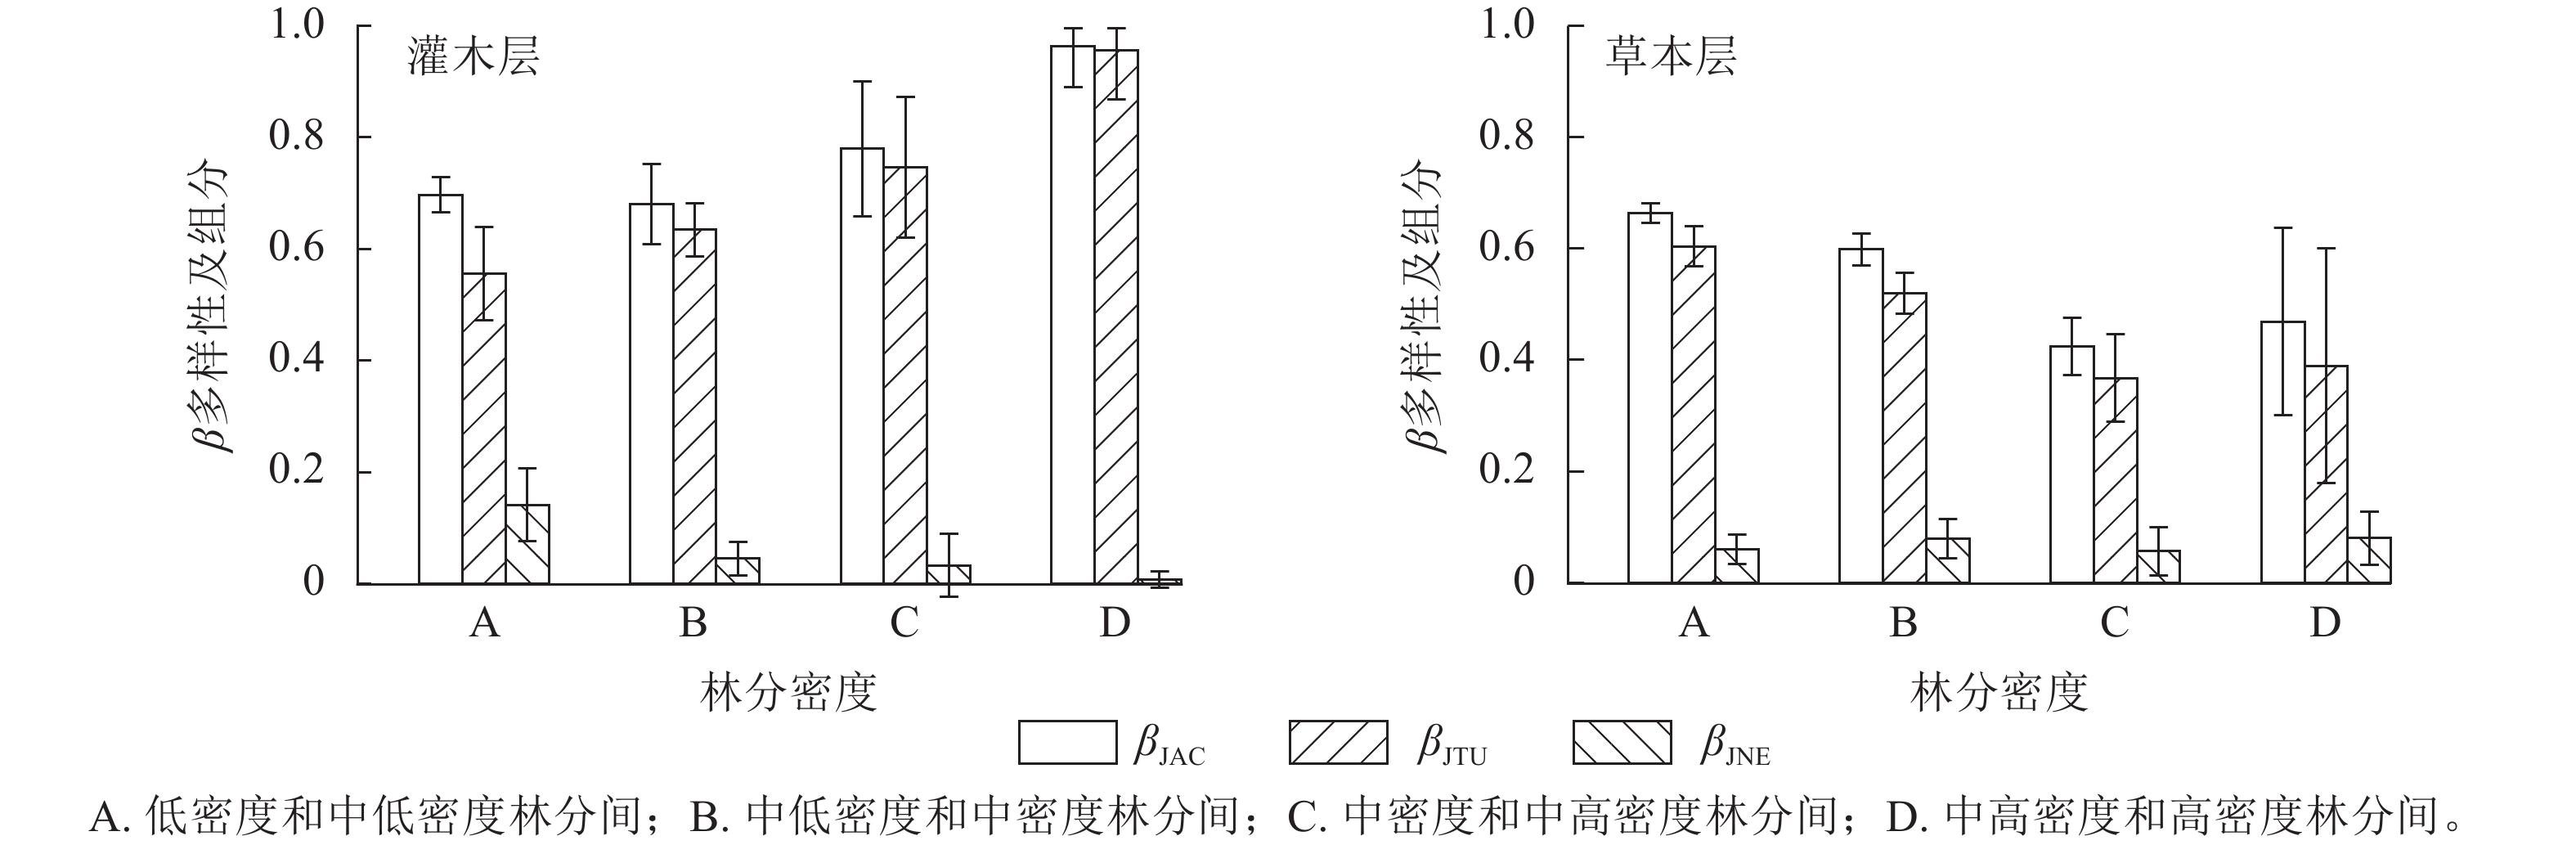
在群落组成显著分异的基础上,进一步分解β多样性以判断不同密度林分间群落差异主要来源于物种周转还是嵌套。由图3可知:不同林分密度间灌木层和草本层β多样性组分表现出不同变化特征。灌木层相邻林分密度间βJAC和βJTU总体随林分密度升高而增加,并在中高密度和高密度的林分间达到最高,分别为0.963和0.956;βJNE整体较低,且随林分密度升高呈降低趋势,表明在较高林分密度阶段,灌木层群落组成差异主要表现为物种替换增强。
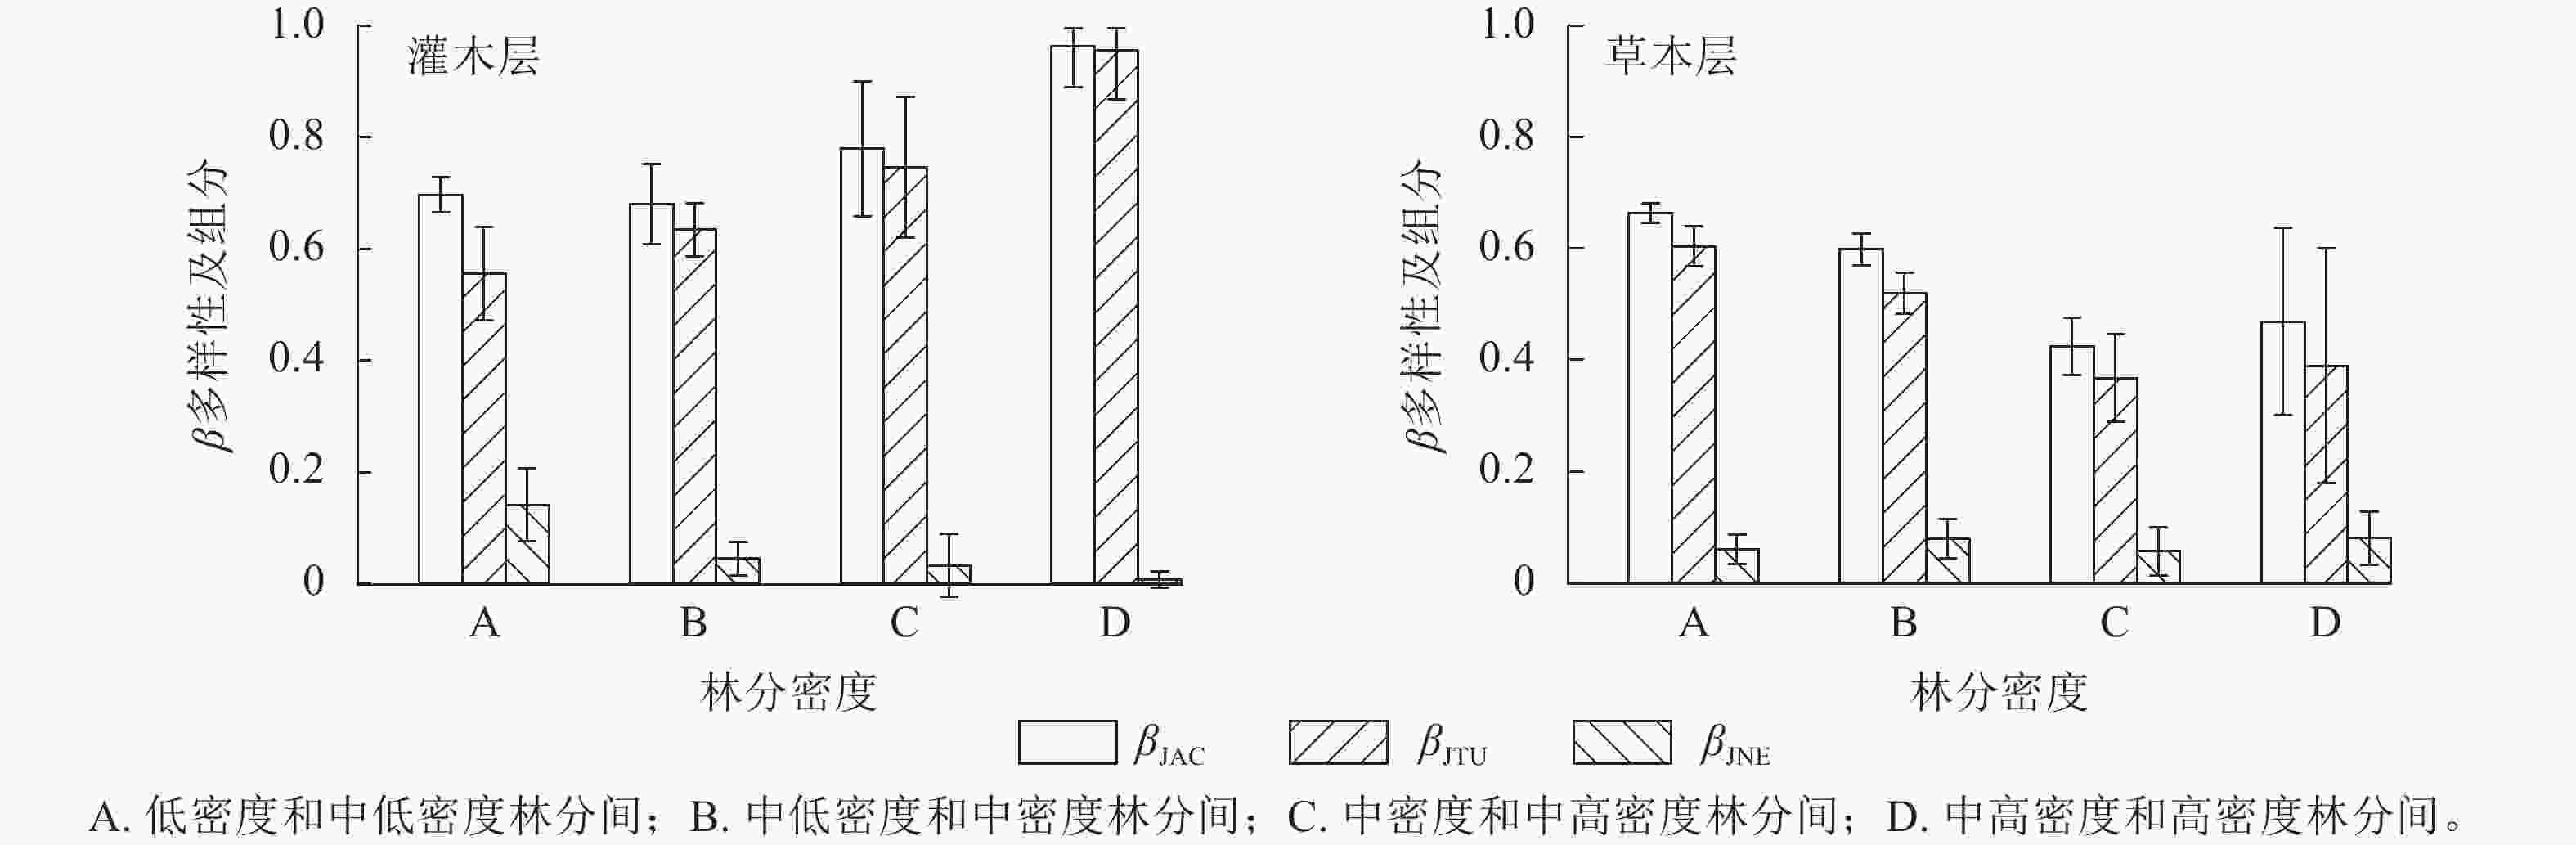
图 3 不同林分密度间林下灌木层和草本层β多样性组分变化
Figure 3. Changes in β-diversity components of understory shrub and herb layers among different stand densities
草本层相邻林分密度间βJAC和βJTU总体随林分密度升高而降低,在低密度和中低密度林分间较高,分别为0.650和0.592,随后逐渐下降;βJNE在不同相邻林分密度间变化幅度较小,表明草本层群落组成差异在低密度油松林至中密度油松林阶段更明显,而高密度油松林间群落组成差异相对减弱。不同林分密度间灌木层和草本层β多样性总体以物种周转组分为主,嵌套组分贡献较低,表明林分密度变化引起的林下灌草群落组成差异主要来源于物种替代。
为进一步识别不同林分密度间林下灌木层和草本层群落组成分异的主要贡献物种,基于物种重要值矩阵计算β多样性的贡献率(表4)。结果表明:灌木层中蒙古莸、拧条锦鸡儿、文冠果、蕤核和胡枝子对群落组成分异的贡献较高,β多样性的贡献率分别为20.04%、18.00%、15.60%、12.75%和10.55%。蒙古莸和蕤核的重要值峰值出现在高密度的林分下,拧条锦鸡儿和胡枝子的重要值峰值出现在中高密度的林分下,文冠果的重要值峰值出现在低密度的林分下。草本层中,西山委陵菜、长芒草、毛连菜、甘草、委陵菜、香青兰、硬质早熟禾、草木樨状黄芪的β多样性的贡献率较高,分别为15.26%、9.09%、7.12%、6.73%、6.06%、5.86%、5.76%和5.32%,西山委陵菜和甘草的重要值峰值出现在低密度的林分下,长芒草的重要值峰值出现在中高密度的林分下,毛连菜和香青兰的重要值峰值出现在中密度的林分下。
表 4 不同林分密度林下灌草群落组成分异的主要贡献物种
Table 4. Main contributing species to compositional differentiation of understory shrub and herb communities under different stand densities
植被类型 物种 β多样性的
贡献率/%重要值峰值密
度/ (株·hm−2)最大重
要值/%植被类型 物种 β多样性的
贡献率/%重要值峰值密
度/ (株·hm−2)最大重
要值/%灌木层 蒙古莸 20.04 2 400 56.93 草本层 毛连菜 7.12 1 600 12.62 拧条锦鸡儿 18.00 2 000 48.34 甘草 6.73 800 11.93 文冠果 15.60 800 36.41 委陵菜 6.06 1 200 7.43 蕤核 12.75 2 400 34.31 香青兰 5.86 1 600 6.95 胡枝子 10.55 2 000 22.76 硬质早熟禾 5.76 2 400 8.80 草本层 西山委陵菜 15.26 800 24.02 草木樨状黄芪 5.32 2 400 11.02 长芒草 9.09 2 000 20.05 综合α多样性、PCoA排序、β多样性分解和β多样性贡献率结果可知:灌木层和草本层对林分密度变化的响应并非同步升降,而是在多样性峰值、群落组成分化阶段和物种周转变化趋势上的表现。当处于中低密度林分时,灌木层群落多样性达到较高水平,随后逐渐下降;当油松林林分密度升高至中密度时,草本层群落多样性达到最高,之后随林分密度继续增加而降低;随着油松林林分密度升高,灌木层群落组成分化程度总体增强,物种周转组分逐渐增加,并在中高密度和高密度间最为明显;当油松林林分密度升至高密度时,草本层群落组成分化程度则总体减弱,物种周转组分在林分密度为低密度和中低密度间较高,之后逐渐降低。
-
林分密度变化通常伴随林冠结构、林下光照、凋落物输入、根系竞争和近地表微环境的改变,从而影响林下植物定居、生长和种间共存[24]。本研究中,低密度林分灌木层主要以沙棘、文冠果等物种占优,草本层主要以西山委陵菜、风毛菊等占优。随着林分密度升高,灌木层中拧条锦鸡儿、蒙古莸和蕤核等物种重要值升高,草本层中长芒草、白莲蒿和草木樨状黄芪等物种逐渐占据较大优势,说明林分密度变化不仅改变了林下植物物种数和多样性水平,也改变了群落优势种组成。这种变化可能与不同物种对林下资源环境变化的适应差异有关。低密度条件下林冠遮光较弱,林下光照相对充足,有利于部分喜光或耐旱物种占据优势;随着林分密度增加,林冠郁闭度提高,林下光照减少,对林下植物形成新的环境筛选。
PCoA排序和PERMANOVA检验结果表明,林分密度对灌木层和草本层群落组成均具有显著影响,说明密度变化并非只引起少数优势种重要值波动,而是导致不同密度林分间群落组成整体发生分化。高密度林分油松林灌木层群落与低、中密度林分油松林灌木层群落相似性降低;低密度林分油松林草本层群落组成则与中、高密度林分油松林草本层群落之间的群落组成差异增大,说明林分密度变化引起了灌木层和草本层群落组成分化,但两者发生明显分化的密度阶段并不一致。已有研究表明:经营措施可能同时改变物种丰富度、群落组成、α多样性和β多样性格局[25]。本研究进一步说明,不同密度梯度油松人工林林下灌木层和草本层的组成变化存在差异。
-
本研究中,灌木层和草本层α多样性对林分密度变化表现出不同响应。灌木层Shannon-Wiener指数和Simpson指数在不同密度间差异显著,而Margalef丰富度指数和Pielou均匀度指数差异不显著,说明密度变化主要影响灌木层综合多样性和优势度结构。已有研究认为:林下植被对林冠结构、林下光照和资源竞争变化较为敏感[24],油松人工林林分密度变化也会显著影响林下植物多样性和更新过程[10]。本研究结果与其基本一致。灌木层α多样性整体在中低密度的林分下较高,随林分密度升高而下降,说明过高林分密度可能不利于灌木层植物共存,其原因可能在于高密度林分下林冠遮光作用增强,林下可利用光照减少,乔木层根系竞争加剧,限制了灌木层部分物种的生长和更新[7]。
草本层各α多样性指数在不同林分密度间均存在显著差异,整体表现为随林分密度增加先升高后降低,并在中密度林分下达到较高水平。这表明草本层对林分密度变化更为敏感。草本植物植株低矮、生活周期较短,对林下光照、凋落物覆盖、表层土壤资源和近地表微环境变化响应较快。适宜的林分密度可能在林冠遮光、地表覆盖和资源竞争之间形成相对平衡,从而有利于草本植物定居和共存;高林分密度条件下,林冠郁闭程度升高,林下光照不足,乔木层与林下植被之间的资源竞争增强,可能导致部分林下植物生长受限,从而使草本层多样性下降[11]。灌木层和草本层对林分密度变化的响应并不一致,说明林下植被并不是作为一个整体同步变化,而是存在明显的层次差异[26]。草本层对林分密度变化响应更敏感,可能与其植株低矮、生活周期较短,对林下光照和表层资源变化更敏感有关[27−28]。
β多样性能够反映不同样地或不同生境间群落组成差异,是理解群落分化过程的重要指标[29]。已有研究表明:即使物种丰富度变化不明显,群落组成仍可能发生显著重组,因此仅依靠α多样性指数难以全面反映林下植物群落变化[29]。β多样性主要由物种周转组分贡献,说明林分密度梯度下林下群落差异主要表现为物种替换,而不是简单的物种丧失[30]。灌木层相邻林分密度间βJAC和βJTU随林分密度升高而增加,说明高密度阶段灌木层物种替换增强,灌木为多年生木本植物,个体寿命较长,对短期林下环境变化具有一定滞后性;在低密度至中密度阶段,原有灌木个体仍可维持一定优势,因此群落组成变化相对缓和。随着密度进一步升高,林冠遮光、空间竞争和水分消耗压力增强,部分低密度优势灌木的重要值下降,而拧条锦鸡儿、蒙古莸、蕤核等物种在中高密度或高密度下占据较高优势,导致灌木层物种替换增强。β多样性的贡献率结果中,蒙古莸、拧条锦鸡儿、文冠果、蕤核和胡枝子对灌木层组成分异贡献较高,也进一步说明灌木层分化主要由少数优势物种在不同密度阶段的重要值变化驱动。
草本层βJAC和βJTU则随林分密度升高总体降低。由于草本植物植株低矮、生活周期短,对林下光照、凋落物覆盖和近地表微环境变化更敏感,当林分密度由低密度升高至中密度时,林下光照条件和地表微环境发生明显改变,低密度下占优的西山委陵菜、风毛菊、甘草等物种重要值下降,而长芒草、毛莲菜、草木樨状黄芪等物种重要值升高,从而形成较强的草本层物种替换;在中高密度和高密度林分下,草本层β多样性组分反而降低,说明高密度条件下草本群落组成趋于接近。高密度林分形成较一致的低光照、较强根系竞争和较厚凋落物环境,使草本层受到更强的环境筛选,能够维持较高优势的物种类型减少,群落组成表现出一定趋同。灌木层和草本层的α多样性峰值所对应的林分密度不同,而且在群落组成分化发生的不同林分密度阶段也不同,进一步体现出分层异步响应特征[31]。林分密度变化也会通过改变冠层结构和林下光环境影响林下草本多样性[32],这与本研究中草本层对密度变化响应较明显的结果相吻合。由于缺乏造林初期林下植被组成和土壤种子库资料,尚不能完全排除初始物种库差异对现阶段灌木层和草本层组成及多样性差异的影响,并未开展长期定位连续监测,因此不能分析林下植物群落的演替规律或物种变化速率。本研究结果主要反映相似立地条件下不同密度油松人工林林下植被的现阶段差异。今后需结合长期定位监测和土壤种子库调查进一步验证林分密度对林下植被恢复过程的影响。
-
不同林分密度下,黄土高原油松人工林灌木层和草本层物种组成及优势种结构均表现出明显差异。随林分密度升高,灌木层优势种由低密度下的沙棘、文冠果等逐渐变化为中高密度下的拧条锦鸡儿、蒙古莸和蕤核等;草本层优势种则由西山委陵菜、风毛菊等逐渐变化为长芒草、白莲蒿和草木樨状黄芪等,表明不同密度油松人工林下植物群落组成发生了明显分化。PCoA、PERMANOVA和PERMDISP结果表明:不同林分密度下灌木层和草本层群落组成均发生显著分异,且这种分异主要反映不同密度组间的群落组成差异。
灌木层α多样性整体在中低密度的林分下较高,草本层α多样性在中密度林分下达到较高水平,当林分密度升高至高密度时,2层多样性均有所下降,说明过高林分密度不利于林下灌草多样性维持。不同林分密度间灌木层和草本层群落组成均发生显著分化,且β多样性差异主要来源于物种替代。β多样性贡献率分析进一步表明,不同密度间群落组成分异主要由少数重要值变化较大的物种贡献,灌木层主要贡献物种包括蒙古莸、拧条锦鸡儿、文冠果、蕤核和胡枝子,草本层主要贡献物种包括西山委陵菜、长芒草、毛莲菜、甘草、委陵菜、香青兰、硬质早熟禾和草木樨状黄芪等。综合α多样性、β多样性和β多样性贡献率结果,
1200 ~1600 株·hm−2可作为本研究条件下油松人工林兼顾林下灌木层和草本层多样性维持的参考密度范围。
本文已在中国知网网络首发,可在知网搜索、下载并阅读全文。
黄土高原不同林分密度油松人工林林下灌木层和草本层组成及多样性差异特征
DOI: 10.11833/j.issn.2095-0756.20260332
Differences in composition and diversity of understory shrub and herb layers in Pinus tabuliformis plantations with different stand densities on the Loess Plateau
-
摘要:
目的 明确林分密度对黄土高原油松Pinus tabuliformis人工林林下灌草群落组成及多样性格局的分层(灌木层、草本层)影响。 方法 以低密度(800株·hm−2)、中低密度(1 200株·hm−2)、中密度(1 600株·hm−2)、中高密度(2 000株·hm−2)、高密度(2 400株·hm−2)等5种密度油松人工林为研究对象,调查林下灌木层和草本层物种组成,计算物种重要值、α多样性和β多样性,并结合主坐标分析(PCoA)、置换多元方差分析(PERMANOVA)等方法,探讨不同密度林下灌草群落组成的差异特征。 结果 随林分密度升高,林下灌木层和草本层优势种均发生变化,灌木层由低林分密度下的沙棘Hippophae rhamnoides、文冠果Xanthoceras sorbifolium逐渐转变为中高林分密度下的拧条锦鸡儿Caragana korshinskii、蒙古莸Caryopteris mongholica和蕤核Prinsepia uniflora,草本层则由西山委陵菜Potentilla sischanensis、风毛菊Saussurea japonica逐渐转变为长芒草Stipa bungeana、白莲蒿Artemisia sacrorum和草木樨状黄芪Astragalus melilotoides。灌木层α多样性整体在中低密度林分下较高,Margalef丰富度指数、Shannon-Wiener指数、Simpson指数和Pielou均匀度指数分别为1.34、1.63、0.80和0.98,之后随林分密度升高而下降;草本层α多样性随林分密度增加呈先升高后降低趋势,并在中密度的林分下达到最高,Margalef丰富度指数、Shannon-Wiener指数、Simpson指数和Pielou均匀度指数分别为2.44、2.51、0.91和0.97。不同密度下灌木层和草本层群落组成均发生显著分化,β多样性差异主要来源于物种周转组分,灌木层物种替代强度随林分密度升高总体增强,在中高密度和高密度的林分间最明显,草本层物种替代则主要集中在低密度和中低密度的林分中;物种对β多样性的贡献率(SCBD)表明,灌木层组成分异主要与蒙古莸、拧条锦鸡儿、文冠果、蕤核和胡枝子Lespedeza bicolor等物种重要值变化有关,草本层组成分异主要与西山委陵菜、长芒草、毛连菜Picris hieracioides、甘草Glycyrrhiza uralensis、委陵菜Potentilla chinensis、香青兰Dracocephalum moldavica、硬质早熟禾Poa sphondylodes和草木樨状黄芪等物种重要值变化有关。 结论 中低密度和中密度林分较有利于维持油松人工林林下灌草群落多样性,其中中低密度林分更有利于灌木层多样性维持,中密度林分更有利于草本层多样性维持。图3表4参32 Abstract:Objective This study aims to clarify the layer-specific effects of stand density on the composition and diversity pattern of the understory shrub and herb communities in Pinus tabuliformis plantations on the Loess Plateau. Method Five P. tabuliformis plantations with different stand densities were selected: low density (800 plants·hm−2), medium-low density (1 200 plants·hm−2), medium density (1 600 plants·hm−2), medium-high density (2 000 plants·hm−2), and high density (2 400 plants·hm−2). Species composition of the shrub and herb layers was investigated, and importance values, α diversity indices, and β diversity were calculated. Principal coordinate analysis (PCoA) and permutational multivariate analysis of variance (PERMANOVA) were used to examine differences in the composition of the understory shrub and herb communities under different densities. Result With increasing stand density, the dominant species of shrub and herb layers both changed markedly. In the shrub layer, the dominant species gradually changed from Hippophae rhamnoides and Xanthoceras sorbifolium under low density to Caragana korshinskii, Caryopteris mongholica, and Prinsepia uniflora under medium-high and high densities. In the herb layer, the dominant species changed from Potentilla sischanensis and Saussurea japonica to Stipa bungeana, Artemisia sacrorum, and Astragalus melilotoides. The overall α diversity of the shrub layer was generally higher under medium-low density, with Margalef richness, Shannon-Wiener, Simpson, and Pielou evenness indices being 1.34, 1.63, 0.80, and 0.98, respectively, and then decreased with increasing stand density. The α diversity of the herb layer increased first and then decreased with increasing stand density, and reached the highest level under medium density. The Margalef richness index, Shannon-Wiener index, Simpson index and Pielou evenness index were 2.44, 2.51, 0.91, and 0.97, respectively. The community composition of both layers under different densities showed significant differentiation. The β diversity was mainly due to the species turnover component. The species turnover intensity of the shrub layer generally increased with stand density, with the most significant difference observed between medium-high and high density stands, while the species turnover of the herb layer was mainly concentrated in low-density and medium to low density forests. The contribution rate of species to β diversity (SCBD) showed that the compositional differentiation of the shrub layer was mainly associated with changes in the importance values of species such as C. mongholica, C. korshinskii, X. sorbifolium, P. uniflora, and Lespedeza bicolor, while the composition differentiation of the herb layer was mainly related to the changes in the importance values of species such as P. sischanensis, S. bungeana, Picris hieracioides, Glycyrrhiza uralensis, Potentilla chinensis, Dracocephalum moldavica, Poa sphondylodes, and A. melilotoides. Conclusion Medium-low density and medium density stands are more conducive to maintaining the diversity of the understory shrub and herb communities in P. tabuliformis plantations. Among them, medium-low density stands were more favorable for shrub-layer diversity, while medium density stands are more favorable for the diversity of the herb layer. [Ch, 3 fig. 4 tab. 32 ref.] -
Key words:
- Loess Plateau /
- Pinus tabuliformis plantation /
- stand density /
- α diversity /
- β diversity
-
图 1 不同林分密度油松人工林林下灌木层和草本层群落组成PCoA排序
Figure 1 PCoA ordination of understory shrub and herb community composition under different stand densities of P. tabuliformis plantations
图 2 不同林分密度油松林下灌草植物多样性指数变化特征
Figure 2 Changes in diversity indices of understory shrub and herb layers under different stand densities of P. tabuliformis plantations
图 3 不同林分密度间林下灌木层和草本层β多样性组分变化
Figure 3 Changes in β-diversity components of understory shrub and herb layers among different stand densities
表 1 样地基本信息表
Table 1. Basic information table of sample plots
样地编号 林分密度/
(株·hm−2)林分密
度等级林龄/a 北纬/(°N) 东经/(°E) 海拔/m 坡度/(°) 坡向 郁闭度/% 平均
树高/m平均胸
径/cm1 800 低密度 20 36.805 25 107.832 40 1 610.0 28 半阳坡 18 6.17 9.90 2 800 低密度 20 36.850 75 107.852 39 1 625.0 29 半阳坡 16 6.10 9.86 3 800 低密度 20 36.770 66 107.912 44 1 617.5 28 半阳坡 20 6.24 9.33 4 1 200 中低密度 20 36.821 15 107.874 71 1 595.0 25 半阳坡 22 8.85 11.98 5 1 200 中低密度 20 36.795 05 107.879 70 1 565.0 25 半阳坡 23 8.51 11.99 6 1 200 中低密度 20 36.843 22 107.937 73 1 572.5 24 半阳坡 22 8.58 12.51 7 1 600 中密度 20 36.849 80 107.886 60 1 557.5 21 半阳坡 33 8.91 11.94 8 1 600 中密度 20 36.811 10 107.907 30 1 520.0 21 半阳坡 30 8.98 12.47 9 1 600 中密度 20 36.821 11 107.936 00 1 527.5 20 半阳坡 31 9.05 12.43 10 2 000 中高密度 20 36.840 08 107.756 20 1 535.0 23 半阳坡 32 7.37 12.40 11 2 000 中高密度 20 36.813 56 107.765 18 1 542.5 23 半阳坡 33 8.30 11.90 12 2 000 中高密度 20 36.803 60 107.967 25 1 550.0 22 半阳坡 30 7.44 11.81 13 2 400 高密度 20 36.803 00 107.794 80 1 580.0 26 半阳坡 35 7.78 10.83 14 2 400 高密度 20 36.844 10 107.972 80 1 587.5 26 半阳坡 36 7.71 10.30 15 2 400 高密度 20 36.79009 107.94683 1 602.5 27 半阳坡 36 7.64 10.36  下载: 导出CSV
表 2 不同林分密度油松林下灌草植物群落物种组成及其重要值
Table 2. Species composition and importance values of understory shrub and herb communities under different stand densities in P. tabuliformis plantations
林分密度
(株·hm−2)林下植
被类型物种组成及重要值 800 灌木 沙棘(40.98%)、文冠果(36.41%)、胡枝子(17.07%)、蕤核(5.54%) 草本 西山委陵菜(24.02%)、风毛菊(16.64%)、甘草(11.93%)、星毛委陵菜(10.58%)、华北米蒿(8.80%)、薹草(7.89%)、白莲蒿(6.79%)、硬质早熟禾(6.75%)、野菊(6.61%) 1 200 灌木 拧条锦鸡儿(26.56%)、文冠果(22.08%)、沙棘(18.84%)、河朔荛花(17.35%)、土庄绣线菊(11.36%)、斜茎黄芪(3.81%) 草本 西山委陵菜(18.99%)、风毛菊(15.00%)、长芒草(11.16%)、直立点地梅(9.41%)、草木樨状黄芪(8.38%)、委陵菜(7.43%)、北柴胡(7.32%)、白莲蒿(7.00%)、薹草(5.87%)、星毛委陵菜(5.50%)、岩败酱(3.95%) 1 600 灌木 沙棘(33.50%)、拧条锦鸡儿(23.48%)、蕤核(22.91%)、截叶铁扫帚(15.13%)、土庄绣线菊(4.98%) 草本 长芒草(14.95%)、毛连菜(12.62%)、风毛菊(9.82%)、鼠尾粟(8.80%)、香青兰(6.95%)、西山委陵菜(6.81%)、草木樨状黄芪(6.74%)、华北米蒿(6.20%)、白莲蒿(5.95%)、薹草(5.03%)、野菊(4.70%)、硬质早熟禾(4.24%)、星毛委陵菜(4.08%)、茜草(3.11%) 2 000 灌木 拧条锦鸡儿(48.34%)、胡枝子(22.76%)、河朔荛花(14.49%)、沙棘(14.41%) 草本 长芒草(20.05%)、风毛菊(12.03%)、草木樨状黄芪(10.28%)、白莲蒿(9.21%)、华北米蒿(7.33%)、香青兰(6.89%)、委陵菜(6.87%)、薹草(6.46%)、百里香(5.91%)、茜草(5.67%)、野菊(5.18%)、星毛委陵菜(4.11%) 2 400 灌木 蒙古莸(56.93%)、蕤核(34.31%)、沙棘(8.76%) 草本 白莲蒿(17.70%)、长芒草(15.70%)、风毛菊(13.36%)、草木樨状黄芪(11.02%)、华北米蒿(8.82%)、硬质早熟禾(8.80%)、委陵菜(7.17%)、薹草(6.25%)、野菊(5.75%)、百里香(5.43%) 说明:括号中的百分数为重要值。灌木层:沙棘Hippophae rhamnoides、文冠果Xanthoceras sorbifolium、胡枝子Lespedeza bicolor、蕤核Prinsepia uniflora、拧条锦鸡儿Caragana korshinskii、河朔荛花Wikstroemia chamaedaphne、土庄绣线菊Spiraea pubescens、斜茎黄芪Astragalus adsurgens、截叶铁扫帚Lespedeza cuneata、蒙古莸Caryopteris mongholica。草本层:西山委陵菜Potentilla sischanensis、风毛菊Saussurea japonica、甘草Glycyrrhiza uralensis、星毛委陵菜Potentilla acaulis、华北米蒿Artemisia giraldii、白莲蒿Artemisia sacrorum、硬质早熟禾Poa sphondylodes、野菊Dendranthema indicum、长芒草Stipa bungeana、直立点地梅Androsace erecta、草木樨状黄芪Astragalus melilotoides、委陵菜Potentilla chinensis、北柴胡Bupleurum chinense、岩败酱Patrinia rupestris、毛连菜Picris hieracioides、鼠尾粟Sporobolus fertilis、香青兰Dracocephalum moldavica,茜草Rubia cordifolia、百里香Thymus mongolicus、薹草Carex。
下载: 导出CSV
表 3 不同林分密度林下灌草群落组成差异及组内离散度检验
Table 3. Composition difference and intra group dispersion test of understory shrub grass community under different stand densities
林下植被类型 PERMANOVA PERMDISP F R2 P F P 灌木层 16.954 0.871 0.001 0.254 0.906 草本层 55.210 0.957 0.001 0.211 0.927
下载: 导出CSV
表 4 不同林分密度林下灌草群落组成分异的主要贡献物种
Table 4. Main contributing species to compositional differentiation of understory shrub and herb communities under different stand densities
植被类型 物种 β多样性的
贡献率/%重要值峰值密
度/ (株·hm−2)最大重
要值/%植被类型 物种 β多样性的
贡献率/%重要值峰值密
度/ (株·hm−2)最大重
要值/%灌木层 蒙古莸 20.04 2 400 56.93 草本层 毛连菜 7.12 1 600 12.62 拧条锦鸡儿 18.00 2 000 48.34 甘草 6.73 800 11.93 文冠果 15.60 800 36.41 委陵菜 6.06 1 200 7.43 蕤核 12.75 2 400 34.31 香青兰 5.86 1 600 6.95 胡枝子 10.55 2 000 22.76 硬质早熟禾 5.76 2 400 8.80 草本层 西山委陵菜 15.26 800 24.02 草木樨状黄芪 5.32 2 400 11.02 长芒草 9.09 2 000 20.05
下载: 导出CSV
-
[1] 李依璇. 黄土高原植被覆盖度变化特征及其影响因素[D]. 北京: 北京林业大学, 2021. LI Yixuan. Change Characteristics and Influencing Factors of Vegetation Coverage in the Loess Plateau [D]. Beijing: Beijing Forestry University, 2021. DOI:10.26949/d.cnki.gblyu.2021.000513. [2] 高海东, 庞国伟, 李占斌, 等. 黄土高原植被恢复潜力研究[J]. 地理学报, 2017, 72(5): 863−874. GAO Haidong, PANG Guowei, LI Zhanbin, et al. Evaluating the potential of vegetation restoration in the Loess Plateau[J]. Acta Geographica Sinica, 2017, 72(5): 863−874. DOI: 10.11821/dlxb201705008. [3] FENG Xiaoming, FU Bojie, PIAO Shilong, et al. Revegetation in China’s Loess Plateau is approaching sustainable water resource limits[J]. Nature Climate Change, 2016, 6(11): 1019−1022. DOI: 10.1038/nclimate3092. [4] SHA Guoliang, YU Huan, CHEN Yuxuan, et al. Understory plant diversity supports the delivery of ecosystem multifunctionality on the Loess Plateau: a comparative of plantations and natural forests[J]. Journal of Environmental Management, 2024, 371: 123191. DOI: 10.1016/j.jenvman.2024.123191. [5] 郭艳杰, 毕华兴, 赵丹阳, 等. 不同密度油松林地土壤水碳分布特征及其耦合关系[J]. 应用生态学报, 2025, 36(1): 50−58. GUO Yanjie, BI Huaxing, ZHAO Danyang, et al. Soil water and carbon distribution characteristics and their coupling relationship in Pinus tabuliformis plantations with different densities[J]. Chinese Journal of Applied Ecology, 2025, 36(1): 50−58. DOI: 10.13287/j.1001-9332.202501.007. [6] WEI Xi, LIANG Wenjun. Regulation of stand density alters forest structure and soil moisture during afforestation with Robinia pseudoacacia L. and Pinus tabulaeformis Carr. on the Loess Plateau[J]. Forest Ecology and Management, 2021, 491: 119196. DOI: 10.1016/j.foreco.2021.119196. [7] ZHANG Yunxiang, LIU Tairui, GUO Jingping, et al. Changes in the understory diversity of secondary Pinus tabulaeformis forests are the result of stand density and soil properties[J]. Global Ecology and Conservation, 2021, 28: e01628. DOI: 10.1016/j.gecco.2021.e01628. [8] 何盼盼, 马全林, 陈徵尼, 等. 密度调控对陇西黄土高原油松人工林林下植被与土壤环境的影响[J]. 中南林业科技大学学报, 2024, 44(12): 143−153. HE Panpan, MA Quanlin, CHEN Zhengni, et al. Effects of density regulation on understory vegetation and soil environment of Pinus tabuliformis plantation on Longxi Loess Plateau[J]. Journal of Central South University of Forestry & Technology, 2024, 44(12): 143−153. DOI: 10.14067/j.cnki.1673-923x.2024.12.014. [9] 陶观护, 卜元坤, 薛卫鹏, 等. 不同密度油松飞播林灌草多样性与林分空间结构关系[J]. 森林与环境学报, 2020, 40(2): 171−177. TAO Guanhu, BU Yuankun, XUE Weipeng, et al. Relationship between understory diversity and stand spatial structure in air-drilled Pinus tabulaeformis forests of different densities[J]. Journal of Forest and Environment, 2020, 40(2): 171−177. DOI: 10.13324/j.cnki.jfcf.2020.02.009. [10] CHEN Yunming, CAO Yang. Response of tree regeneration and understory plant species diversity to stand density in mature Pinus tabulaeformis plantations in the hilly area of the Loess Plateau, China[J]. Ecological Engineering, 2014, 73: 238−245. DOI: 10.1016/j.ecoleng.2014.09.055. [11] DANG Peng, GAO Yang, LIU Jinliang, et al. Effects of thinning intensity on understory vegetation and soil microbial communities of a mature Chinese pine plantation in the Loess Plateau[J]. Science of the Total Environment, 2018, 630: 171−180. DOI: 10.1016/j.scitotenv.2018.02.197. [12] 王进鑫, 黄宝龙, 罗伟祥. 黄土高原人工林地水分亏缺的补偿与恢复特征[J]. 生态学报, 2004, 24(11): 2395−2401. WANG Jinxin, HUANG Baolong, LUO Weixiang. Compensation and rehabilitation characteristics of soil water deficit at a planted forest site of the drought-prone Loess Plateau[J]. Acta Ecologica Sinica, 2004, 24(11): 2395−2401. DOI: 10.3321/j.issn:1000-0933.2004.11.008. [13] 杨磊, 卫伟, 陈利顶, 等. 半干旱黄土丘陵区人工植被深层土壤干化效应[J]. 地理研究, 2012, 31(1): 71−81. YANG Lei, WEI Wei, CHEN Liding, et al. Soil desiccation in deep soil layers under different vegetation types in the semi-arid Loess Hilly Region[J]. Geographical Research, 2012, 31(1): 71−81. [14] DU Sixuan, ZHENG Bo, LEI Hangyu, et al. Response of understory plant diversity to edge effects in plantation forests on the loess plateau[J]. Forests, 2025, 16(1): 87. DOI: 10.3390/f16010087. [15] 郭弘婷, 纪小芳, 汪成, 等. 我国人工林林下灌木层植物多样性空间变异及影响要素[J]. 南京林业大学学报(自然科学版), 2022, 46(4): 144−152. GUO Hongting, JI Xiaofang, WANG Cheng, et al. Spatial variability and influencing factors of plant diversity in the shrub layers of artificial forests in China[J]. Journal of Nanjing Forestry University (Natural Sciences Edition), 2022, 46(4): 144−152. DOI: 10.12302/j.issn.1000-2006.202103014. [16] BASELGA A. Partitioning the turnover and nestedness components of beta diversity[J]. Global Ecology and Biogeography, 2010, 19(1): 134−143. DOI: 10.1111/j.1466-8238.2009.00490.x. [17] BASELGA A, ORME C D L. Betapart: an R package for the study of beta diversity[J]. Methods in Ecology and Evolution, 2012, 3(5): 808−812. DOI: 10.1111/j.2041-210x.2012.00224.x. [18] 林阳, 李时轩, 周伟龙, 等. 百山祖国家公园植物群落α和β多样性对海拔梯度的响应[J]. 生态学报, 2024, 44(17): 7700−7712. LIN Yang, LI Shixuan, ZHOU Weilong, et al. α and β diversity patterns of woody plant communities along an elevation gradient in Baishanzu National Park[J]. Acta Ecologica Sinica, 2024, 44(17): 7700−7712. DOI: 10.20103/j.stxb.202401090080. [19] 武泽阳, 艾宁, 黄娄, 等. 陕北黄土区油松林地表蜘蛛演变规律及其生态位驱动因子[J]. 生态学杂志, 2025, 44(7): 2319−2329. WU Zeyang, AI Ning, HUANG Lou, et al. Variations and niche driving factors of ground-dwelling spiders in Pinus tabuliformis forests of the Loess Plateau in Northern Shaanxi[J]. Chinese Journal of Ecology, 2025, 44(7): 2319−2329. DOI: 10.13292/j.1000-4890.202507.024. [20] 魏天兴, 安文, 艾宁, 等. 陕北黄土丘陵区河北杨和油松幼树径向生长特征归因分析[J]. 西北林学院学报, 2026, 41(2): 87−94. WEI Tianxing, AN Wen, AI Ning, et al. Attribution analysis of radial growth characteristics of Populus hopeiensis and Pinus tabuliformis saplings in the Loess Plateau of Northern Shaanxi[J]. Journal of Northwest Forestry University, 2026, 41(2): 87−94. DOI: 10.3969/j.issn.1001-7461.2026.02.10. [21] SHEN Wanling, XU Zhanghua, QIN Na, et al. Changing relationship between specific leaf area and leaf matter dry content of moso bamboo Phyllostachys pubescens syn. edulis (Poales: Poaceae) under the stress of Pantana phyllostachysae (Lepidoptera: Lymantriidae)[J]. Forests, 2024, 15(3): 540. DOI: 10.3390/f15030540. [22] 何文强, 王瑞霞, 田英, 等. 毛乌素沙地南缘柠条固沙林演替过程中草本植物多样性与群落稳定性动态变化及其驱动因素[J]. 生态学报, 2025, 45(22): 11171−11183. HE Wenqiang, WANG Ruixia, TIAN Ying, et al. Dynamics of understorey herbaceous plant diversity and community stability and its driving factors during succession of lemon strip sand fixation forests at the southern edge of the Mu Us Desert[J]. Acta Ecologica Sinica, 2025, 45(22): 11171−11183. DOI: 10.20103/j.stxb.202503180606. [23] GUCLU C, LUK C L, ASHTON L A, et al. Beta diversity subcomponents of plant species turnover and nestedness reveal drivers of community assembly in a regenerating subtropical forest[J]. Ecology and Evolution, 2024, 14(9): e70233. DOI: 10.1002/ece3.70233. [24] DENG Jiaojiao, FANG Shuai, FANG Xiangmin, et al. Forest understory vegetation study: current status and future trends[J]. Forestry Research, 2023, 3: 6. DOI: 10.48130/FR-2023-0006. [25] WAGNER A S, STUBLE K L. Beta diversity and species turnover in communities of newly recruited seedlings following forest management[J]. Forest Ecology and Management, 2024, 572: 122329. DOI: 10.1016/j.foreco.2024.122329. [26] 李俊杰, 韩梦豪, 赵家豪, 等. 间伐对马尾松人工林林下植物多样性的动态影响[J]. 生态学杂志, 2023, 42(4): 788−795. LI Junjie, HAN Menghao, ZHAO Jiahao, et al. Temporal effects of thinning on understory plant diversity in Pinus massoniana plantations[J]. Chinese Journal of Ecology, 2023, 42(4): 788−795. DOI: 10.13292/j.1000-4890.202304.013. [27] 刘思泽, 尹海锋, 沈逸, 等. 间伐强度对马尾松人工林间伐初期林下植被群落物种组成和多样性的影响[J]. 应用生态学报, 2020, 31(9): 2866−2874. LIU Size, YIN Haifeng, SHEN Yi, et al. Effects of thinning intensity on species composition and diversity of undergrowth vegetation community in Pinus massoniana plantation at initial stage of thinning[J]. Chinese Journal of Applied Ecology, 2020, 31(9): 2866−2874. DOI: 10.13287/j.1001-9332.202009.009. [28] 陈涵, 郭弘婷, 陈睿, 等. 杉木人工林林下植物多样性及其环境对不同间伐强度的短期响应[J]. 生态学报, 2023, 43(24): 10274−10284. CHEN Han, GUO Hongting, CHEN Rui, et al. Understory plant diversity of Cunninghamia lanceolata plantations and its short-term environmental response to different thinning intensities[J]. Acta Ecologica Sinica, 2023, 43(24): 10274−10284. DOI: 10.20103/j.stxb.202306031177. [29] FRANCIONI M, BRICCA A, ANDREETTA A, et al. Canopy closure and intensifying climate extremes drive understory species loss over 25 years of forest monitoring[J]. NPJ Biodiversity, 2026, 5: 13. DOI: 10.1038/s44185-026-00126-9. [30] SOININEN J, HEINO J, WANG Jianjun. A meta-analysis of nestedness and turnover components of beta diversity across organisms and ecosystems[J]. Global Ecology and Biogeography, 2018, 27(1): 96−109. DOI: 10.1111/geb.12660. [31] 云慧雅, 毕华兴, 焦振寰, 等. 晋西黄土区不同林分类型和密度条件下林下灌草组成及多样性特征[J]. 浙江农林大学学报, 2023, 40(3): 569−578. YUN Huiya, BI Huaxing, JIAO Zhenhuan, et al. Composition and diversity of understory plants under different stand types and densities in loess region of western Shanxi Province[J]. Journal of Zhejiang A&F University, 2023, 40(3): 569−578. DOI: 10.11833/j.issn.2095-0756.20220433. [32] 李登醒, 杨章旗, 颜培栋, 等. 林分密度对马尾松人工林群落冠层结构及林下草本的影响[J]. 西南林业大学学报, 2024, 44(2): 60−68. LI Dengxing, YANG Zhangqi, YAN Peidong, et al. Effects of stand density on canopy structure and understory herbs of Pinus massoniana plantation community[J]. Journal of Southwest Forestry University, 2024, 44(2): 60−68. DOI: 10.11929/j.swfu.202303070. -

-
链接本文:
https://zlxb.zafu.edu.cn/article/doi/10.11833/j.issn.2095-0756.20260332
 点击查看大图
计量
- 文章访问数: 31
- HTML全文浏览量: 3
- PDF下载量: 0
- 被引次数: 0
