



-
森林是陆地生态系统的重要组成部分,森林生物多样性在维持生态系统功能、参与物质循环与能量流动等方面发挥着关键作用[1−3]。然而,受气候变化与人类活动影响,森林生物多样性不断丧失,其中,人工林对两者的响应更为敏感。人工林树种结构单一,生物多样性下降,多功能效益难以充分发挥[4]。林下灌草植物作为人工林的重要组成部分,不仅有助于植物群落健康稳定,还承担着维持生物多样性、促进土壤养分循环等重要功能[5]。当前,有关人工林下植被的研究主要聚焦以下几个方面:人工林下植被的物种组成、物种多样性及其与环境的关系。然而,生物多样性包括物种、功能和谱系多样性等多个维度[6]。功能多样性主要包括功能多样性指数和群落加权平均值[7],可弥补物种分类水平研究的局限。功能多样性指数反映植物间功能性状的差异,而群落加权平均值代表了优势物种的功能性状,两者共同揭示物种如何响应环境变化[8]。因此,综合考虑人工林下植被物种和功能多样性、功能性状群落加权平均值有助于深入揭示驱动林下植被群落构建的关键机制[9−10]。
当前,已对不同林龄人工林下植被组成和物种多样性开展了大量研究。研究结果表明,随林龄增加,林下植被物种多样性通常逐渐增加,在中后期达到最大值。石慧等[11]基于华北山地人工林序列研究发现,林下植被Shannon-Wiener多样性随林龄增加呈显著上升趋势;柴宗政等[12]研究表明,随林龄增加,群落物种组成由先锋物种主导逐渐向地带性物种过渡。林下植被物种多样性随林龄的动态变化本质上是对多重环境因子综合作用的反映,包括林分特征、土壤因素和地形因素等。林龄能够通过影响郁闭度、土壤养分和林下微环境调控灌草植物组成[13−14]。林下植物还能通过调整功能性状适应环境变化,促使不同物种共存,进而改变物种组成,引起功能多样性改变。然而,现有研究缺乏林龄如何通过改变多重环境因素调控林下植被功能多样性的认识,不同林龄林下植被功能多样性如何变化及其受到哪些环境因素的综合调控仍不明确。
塞罕坝是中国高寒沙地造林的典范,区域人工林在防风固沙、水源涵养、生物多样性保育等方面发挥着不可替代的作用[15−16]。前期研究对塞罕坝华北落叶松Larix gmelinii var. principis-rupprechtii人工林下植被物种多样性的空间分布格局进行了初步探索[17],但缺乏时间尺度上林下植被物种和功能多样性动态变化的同步研究。基于植物分类信息及叶片功能性状,研究林下植被多样性沿林龄序列的变化规律,探究沿林龄序列林下植被物种与功能多样性的环境影响因素,对于保护和管理区域人工林尤为重要[18]。本研究以塞罕坝不同林龄(12~83 a)华北落叶松人工林为研究对象,分析林下植被组成、物种与功能多样性的动态变化,揭示林下植被多样性演变的环境驱动机制,主要回答以下2个科学问题:①林下植被物种、功能多样性沿林龄序列分别存在怎样的演变规律?②林龄通过改变何种环境因素来影响林下植被多样性的演变?
-
研究区位于河北省承德市塞罕坝机械林场,42°02′~42°36′N,116°51′~117°39′E,地处冀北山地与蒙古高原交汇地带,是京津冀的重要生态屏障。研究区海拔1 000~1 940 m。气候类型为温带大陆性季风气候,年平均气温为−1.4 ℃,年降水量为405.0~503.0 mm,年潜在蒸散量为1 230.0 mm,水热条件呈现典型的半湿润-半干旱过渡特征。土壤以灰色森林土、棕壤土、风沙土为主。依据林场造林历史资料,有林地面积为7.5万hm2,华北落叶松为区域乡土树种与核心造林树种,占人工林总面积的76.2%,是支撑区域生态防护功能与碳汇效益的关键树种[19−21]。
-
在立地条件相似、无经营措施的区域,依据LY/T
2908 —2017《主要树种龄级与龄组划分》中华北落叶松人工林龄组划分标准,选取林龄为12~83 a (幼龄林≤20 a,中龄林21~30 a,近熟林31~40 a,成熟林41~60 a,过熟林≥61 a)的人工林设置调查点,共计14个调查点(表1)。调查发现,乔木层以华北落叶松为优势树种,灌木层物种组成主要包括稠李Prunus padus、花楸树Sorbus pohuashanensis、山荆子Malus baccata、山刺玫Rosa davurica、土庄绣线菊Spiraea ouensanensis等。表 1 塞罕坝华北落叶松人工林调查点概况
Table 1. General situation of L. gmelinii var. principis-rupprechtii plantations plot in Saihanba
龄组 林龄/a 海拔/m 坡向 坡度/(°) 平均胸径/cm 平均树高/m 胸高断
面积/cm2林分密度/
(株·hm−2)郁闭度 幼龄林 12、15、18 1 603±46 东、西、西 9.3±1.3 9.9±3.4 7.7±2.3 87.0±48.1 1 872±654 0.81±0.03 中龄林 21、25、28 1 624±35 西、南、东北 7.6±2.5 18.7±4.5 9.2±1.9 297.6±107.7 1 519±478 0.69±0.04 近熟林 32、35、38 1 586±33 北、南、南 9.5±4.7 20.2±5.6 10.8±1.9 401.6±172.3 1 067±318 0.48±0.07 成熟林 45、50、55 1 593±39 东、东北、南 7.3±3.6 25.9±6.0 11.6±2.0 604.0±81.8 696±197 0.32±0.02 过熟林 63、83 1 808±26 东南、西北 11.8±3.6 27.0±9.8 11.7±3.0 857.2±789.6 428±65 0.37±0.08 在各调查点随机布设3块20 m×30 m的样地,共42块。参照方精云等[22]调查规范开展林下植被物种(灌木、草本)调查。沿样地对角线设置2个10 m×10 m的灌木样方,对样方内所有灌木分种进行株数统计;采用五点取样法设置5个1 m×1 m的草本样方,记录草本种名、多度;记录各样地的地理坐标、海拔、地形(坡度、坡向)。
对于林分特征调查,记录20 m×30 m样地内胸径大于3 cm的乔木物种名称、数量、胸径及树高,计算胸高断面积,记录林分特征(郁闭度、林分密度);在2个灌木样方,分种测量灌木基径、高度与冠幅;在5个草本样方内,所有草本植物按地上、地下部分分割后采集。由于直接收获法对植被破坏性较强,且耗时费力,本研究采用生物量异速生长方程对木本植物生物量进行估算。乔木生物量以胸径和树高为测算指标,灌木生物量以基径、冠幅和高度为测算指标。草本植物生物量样品经烘干至恒量,分别得到地上与地下部分生物量。植被总生物量为乔木、灌木、草本生物量之和。沿样地对角线设置3个1 m×1 m的凋落物样方,测定凋落物层现存量。
在每个样地内,以“品”字形布设3个土壤采样点,采集0~15 cm土壤样品,混匀后保存于4 ℃保温盒中,用于土壤化学性质(包括土壤有机碳、全氮、全磷、碱解氮、有效磷、pH)分析;同时采用环刀法采集土样(3次重复),测定土壤物理性质(包括土壤容重、土壤含水量)。采用激光粒度仪分别测定土壤粒度组成:砂粒、粉粒和黏粒百分比(%)。
-
针对每个林下植物物种,随机选择至少5个个体,每个个体采集5~10片成熟健康且受阳光直射的叶片,称取鲜质量(g)。采用精度0.01 mm的游标卡尺测定叶片厚度(mm)。采用ImageJ软件对扫描图像进行分析,测定叶面积(cm2)。叶片样品于60 ℃烘干至恒量,称取干质量(g)。计算比叶面积(叶面积与叶干质量之比,cm2·g−1)、叶干物质质量分数(叶干质量与鲜质量之比,%)、叶组织密度(叶片干质量与叶体积之比,kg·m−3)。
-
参照文献[11],计算林下植被物种丰富度、Shannon-Wiener指数。基于叶干物质质量分数、比叶面积、叶片厚度、叶组织密度4个功能性状,结合物种相对多度数据,参照文献[23]计算林下植被功能性状的群落加权平均值(community weighted mean,CWM)。参照文献[24−25],使用R语言的FD软件包,计算功能多样性,包括Rao二次熵指数、功能丰富度(FRic)与功能离散度(FDiv)。
对多样性指标和环境数据进行对数(log)转换处理,以确保数据呈正态分布。运用一元线性回归或多项式回归分析探究林下植被多样性与林龄、地形、林分因子、土壤理化性质的关系,同时利用赤池信息准则(AIC)确定一元线性回归与多项式回归模型的适合度[26]。进一步采用模型选择和多模型推断(model selection and multimodel inference,MuMIn)分析影响林下植被多样性的最优因素组合[6, 27]。具体而言,首先剔除与林下植被多样性无显著相关性的指标;基于方差膨胀系数(variance inflation factor,VIF)剔除高度共线性的因素(VIF<3),以避免多重共线性的影响;基于保留的因素构建全模型,利用MuMIn包dredge()函数生成所有模型子集,依据校正赤池信息准则(AICc)(ΔAICc<2)筛选出最优模型,采用model.avg()函数计算每个因素的效应估计值。当最优模型保留多个因素时,采用glmm.hp包评估各因素的相对重要性[28]。
-
12~83 a华北落叶松人工林下共记录灌草植物103种,其中,草本植物34科85属94种,灌木3科9属9种。主要为菊科Asteraceae (28.16%)、禾本科Gramineae (8.74%)、毛茛科Ranunculaceae (7.77%)、蔷薇科Rosaceae (7.77%)、十字花科Brassicaceae (5.83%)等,其他如忍冬科Caprifoliaceae、唇形科Lamiaceae、虎耳草科Saxifragaceae、大麻科Cannabaceae等植物为单属单种。
-
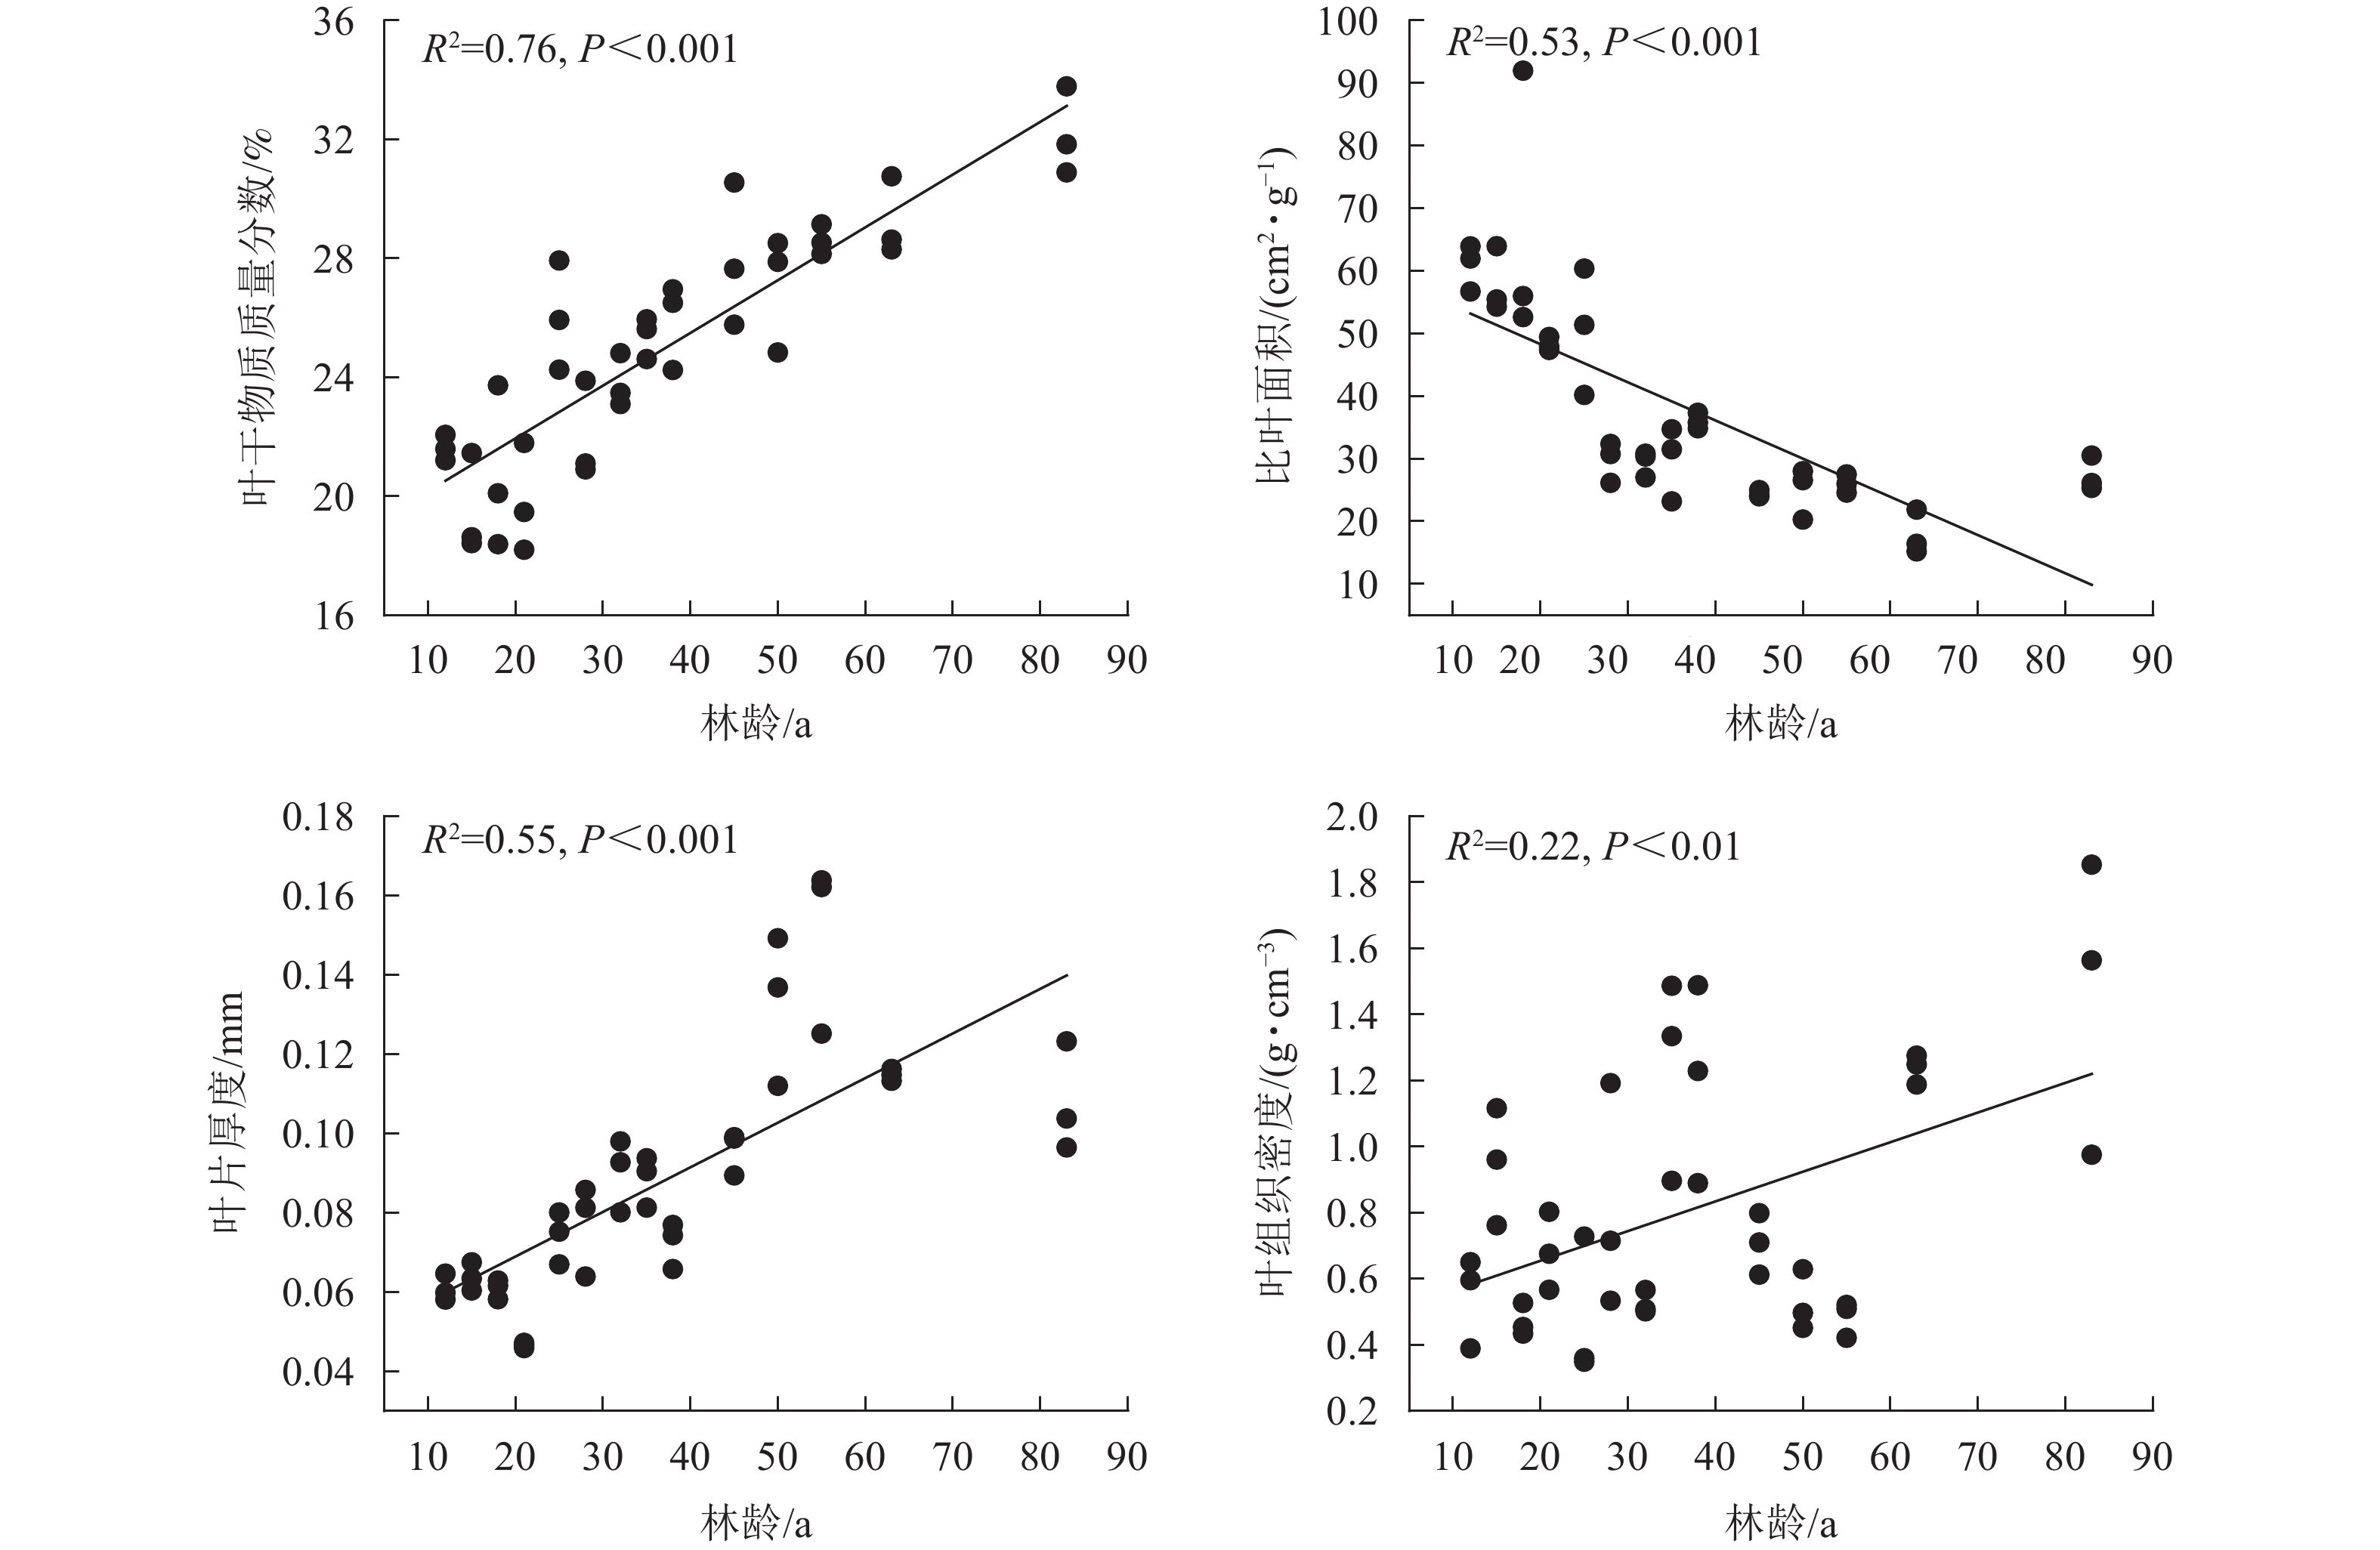
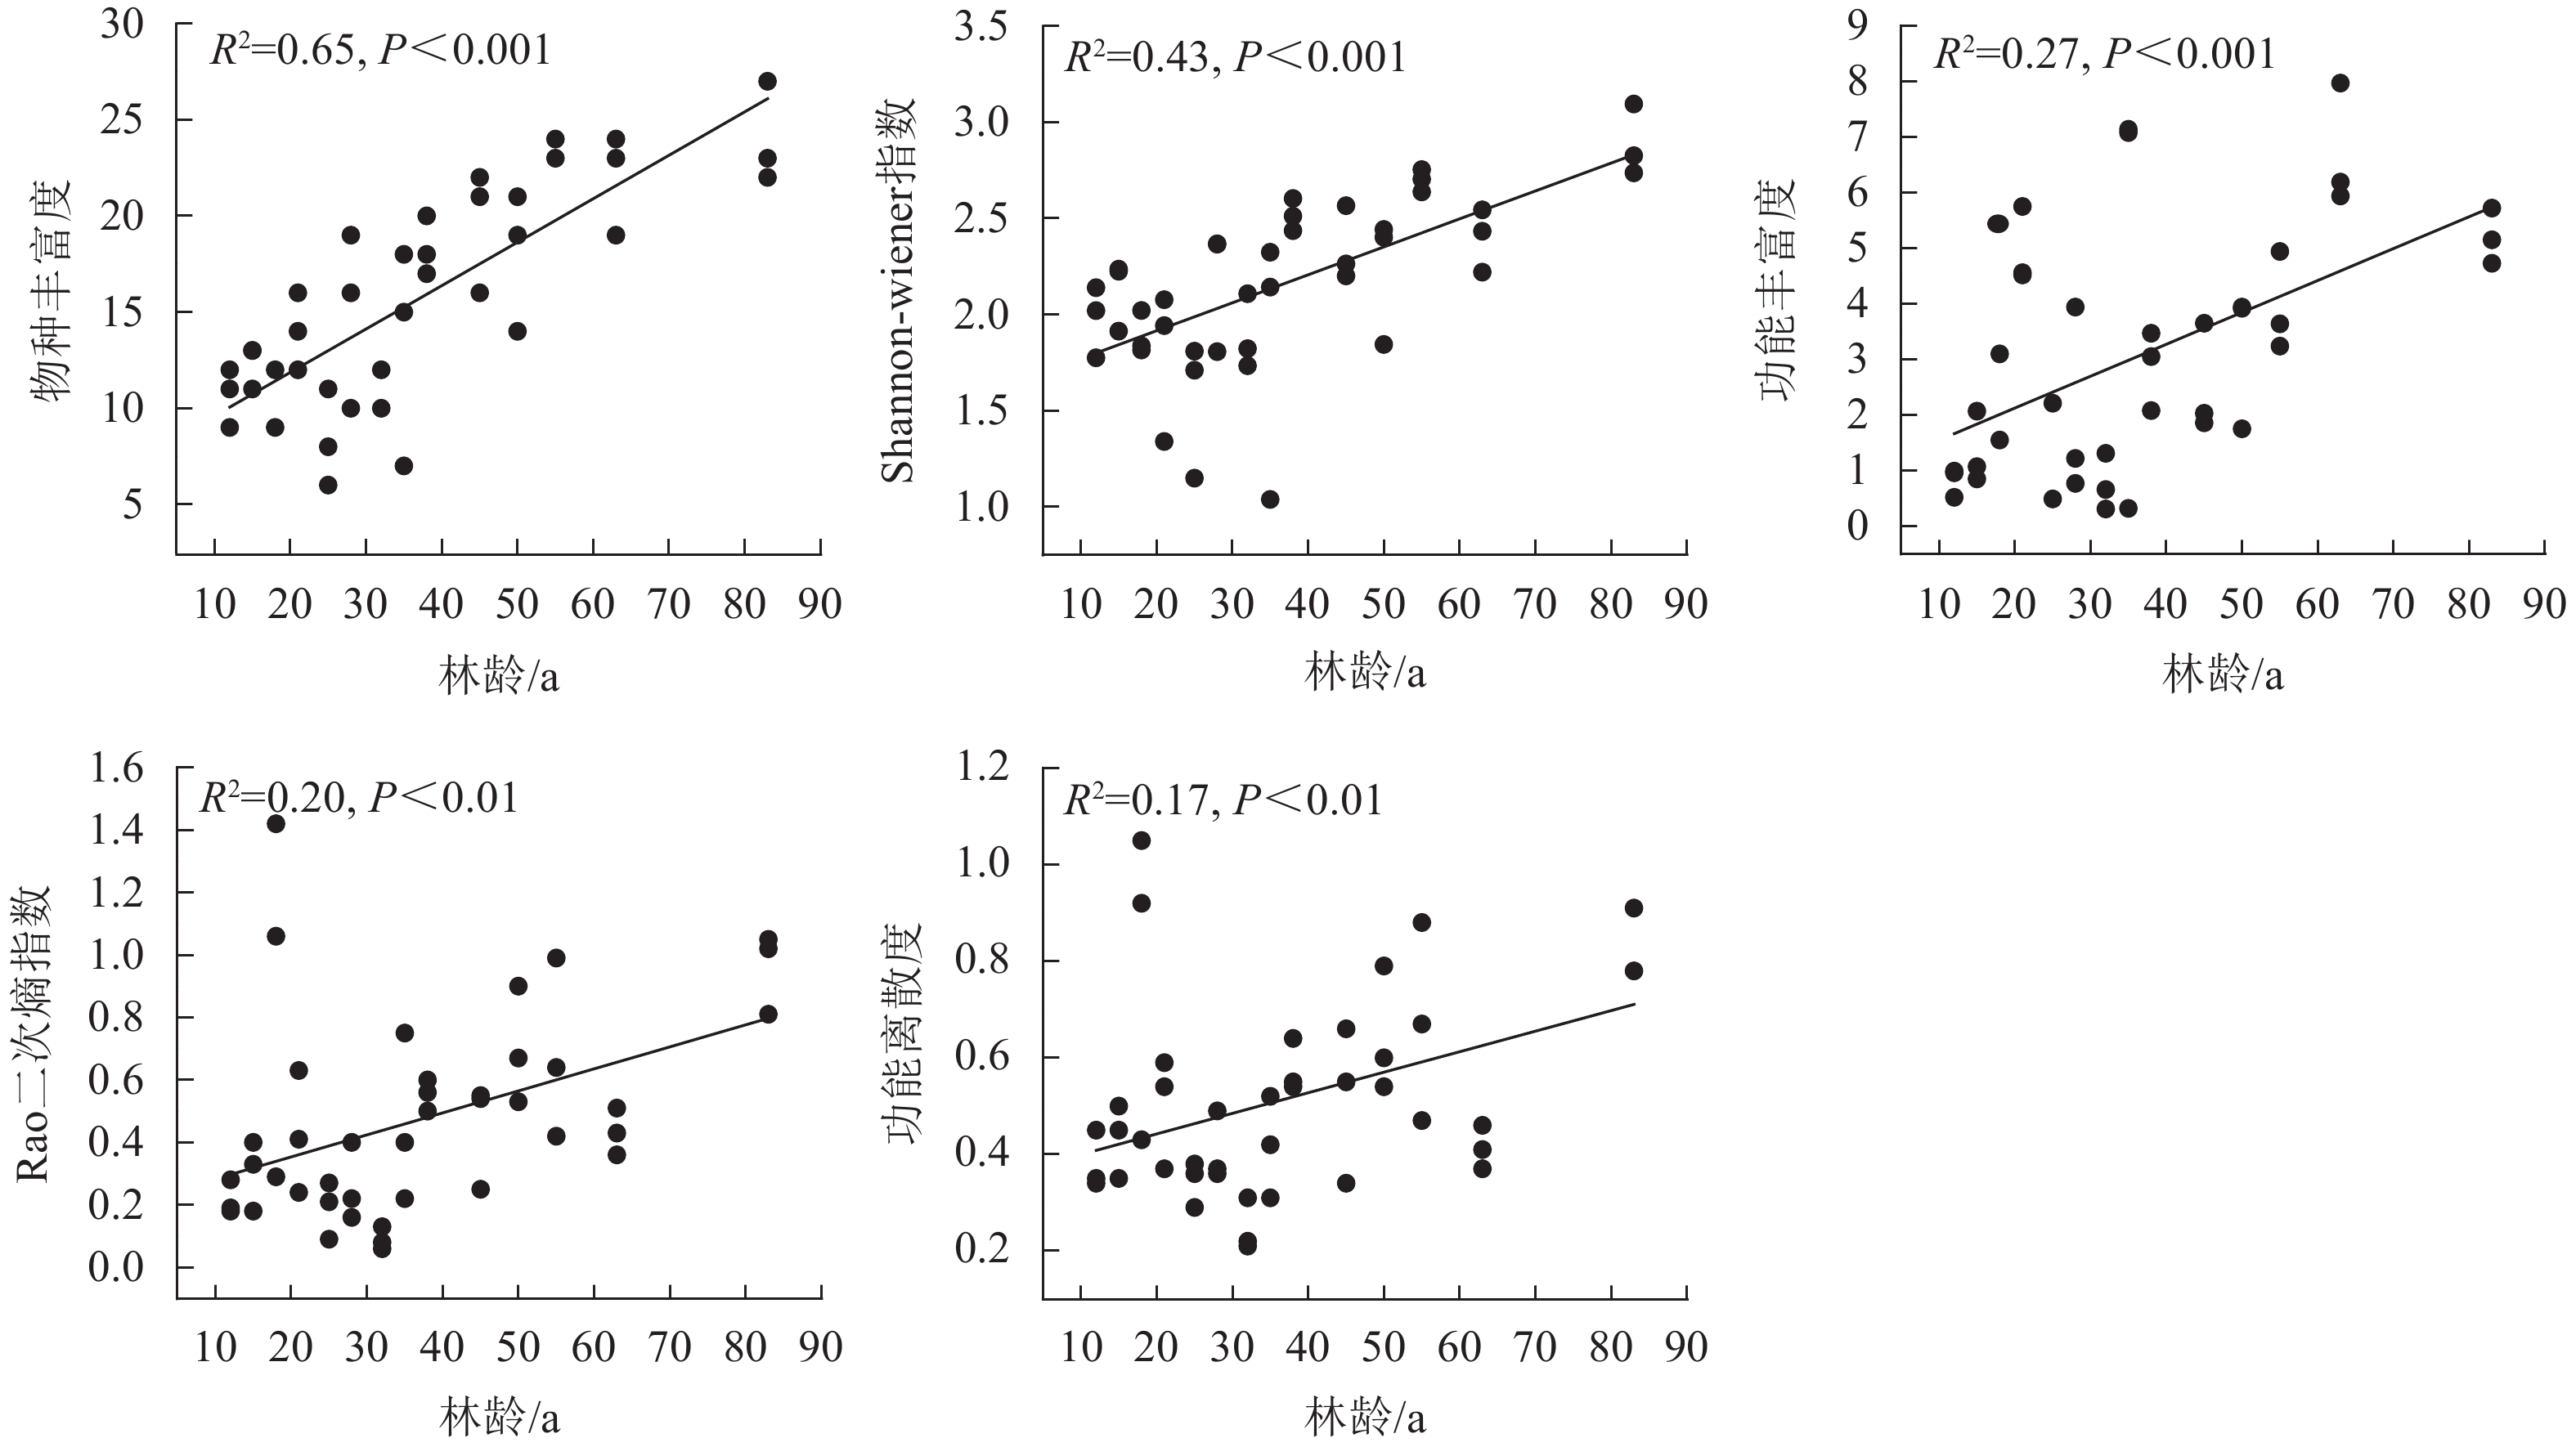
随林龄增加,林下植被物种丰富度、Shannon-Wiener指数、功能丰富度、功能离散度和Rao二次熵指数显著增加(P<0.01,图1)。对于功能性状群落加权平均值,比叶面积随林龄增加而降低,叶干物质质量分数、叶组织密度、叶片厚度随林龄增加而增加(P<0.01,图2)。
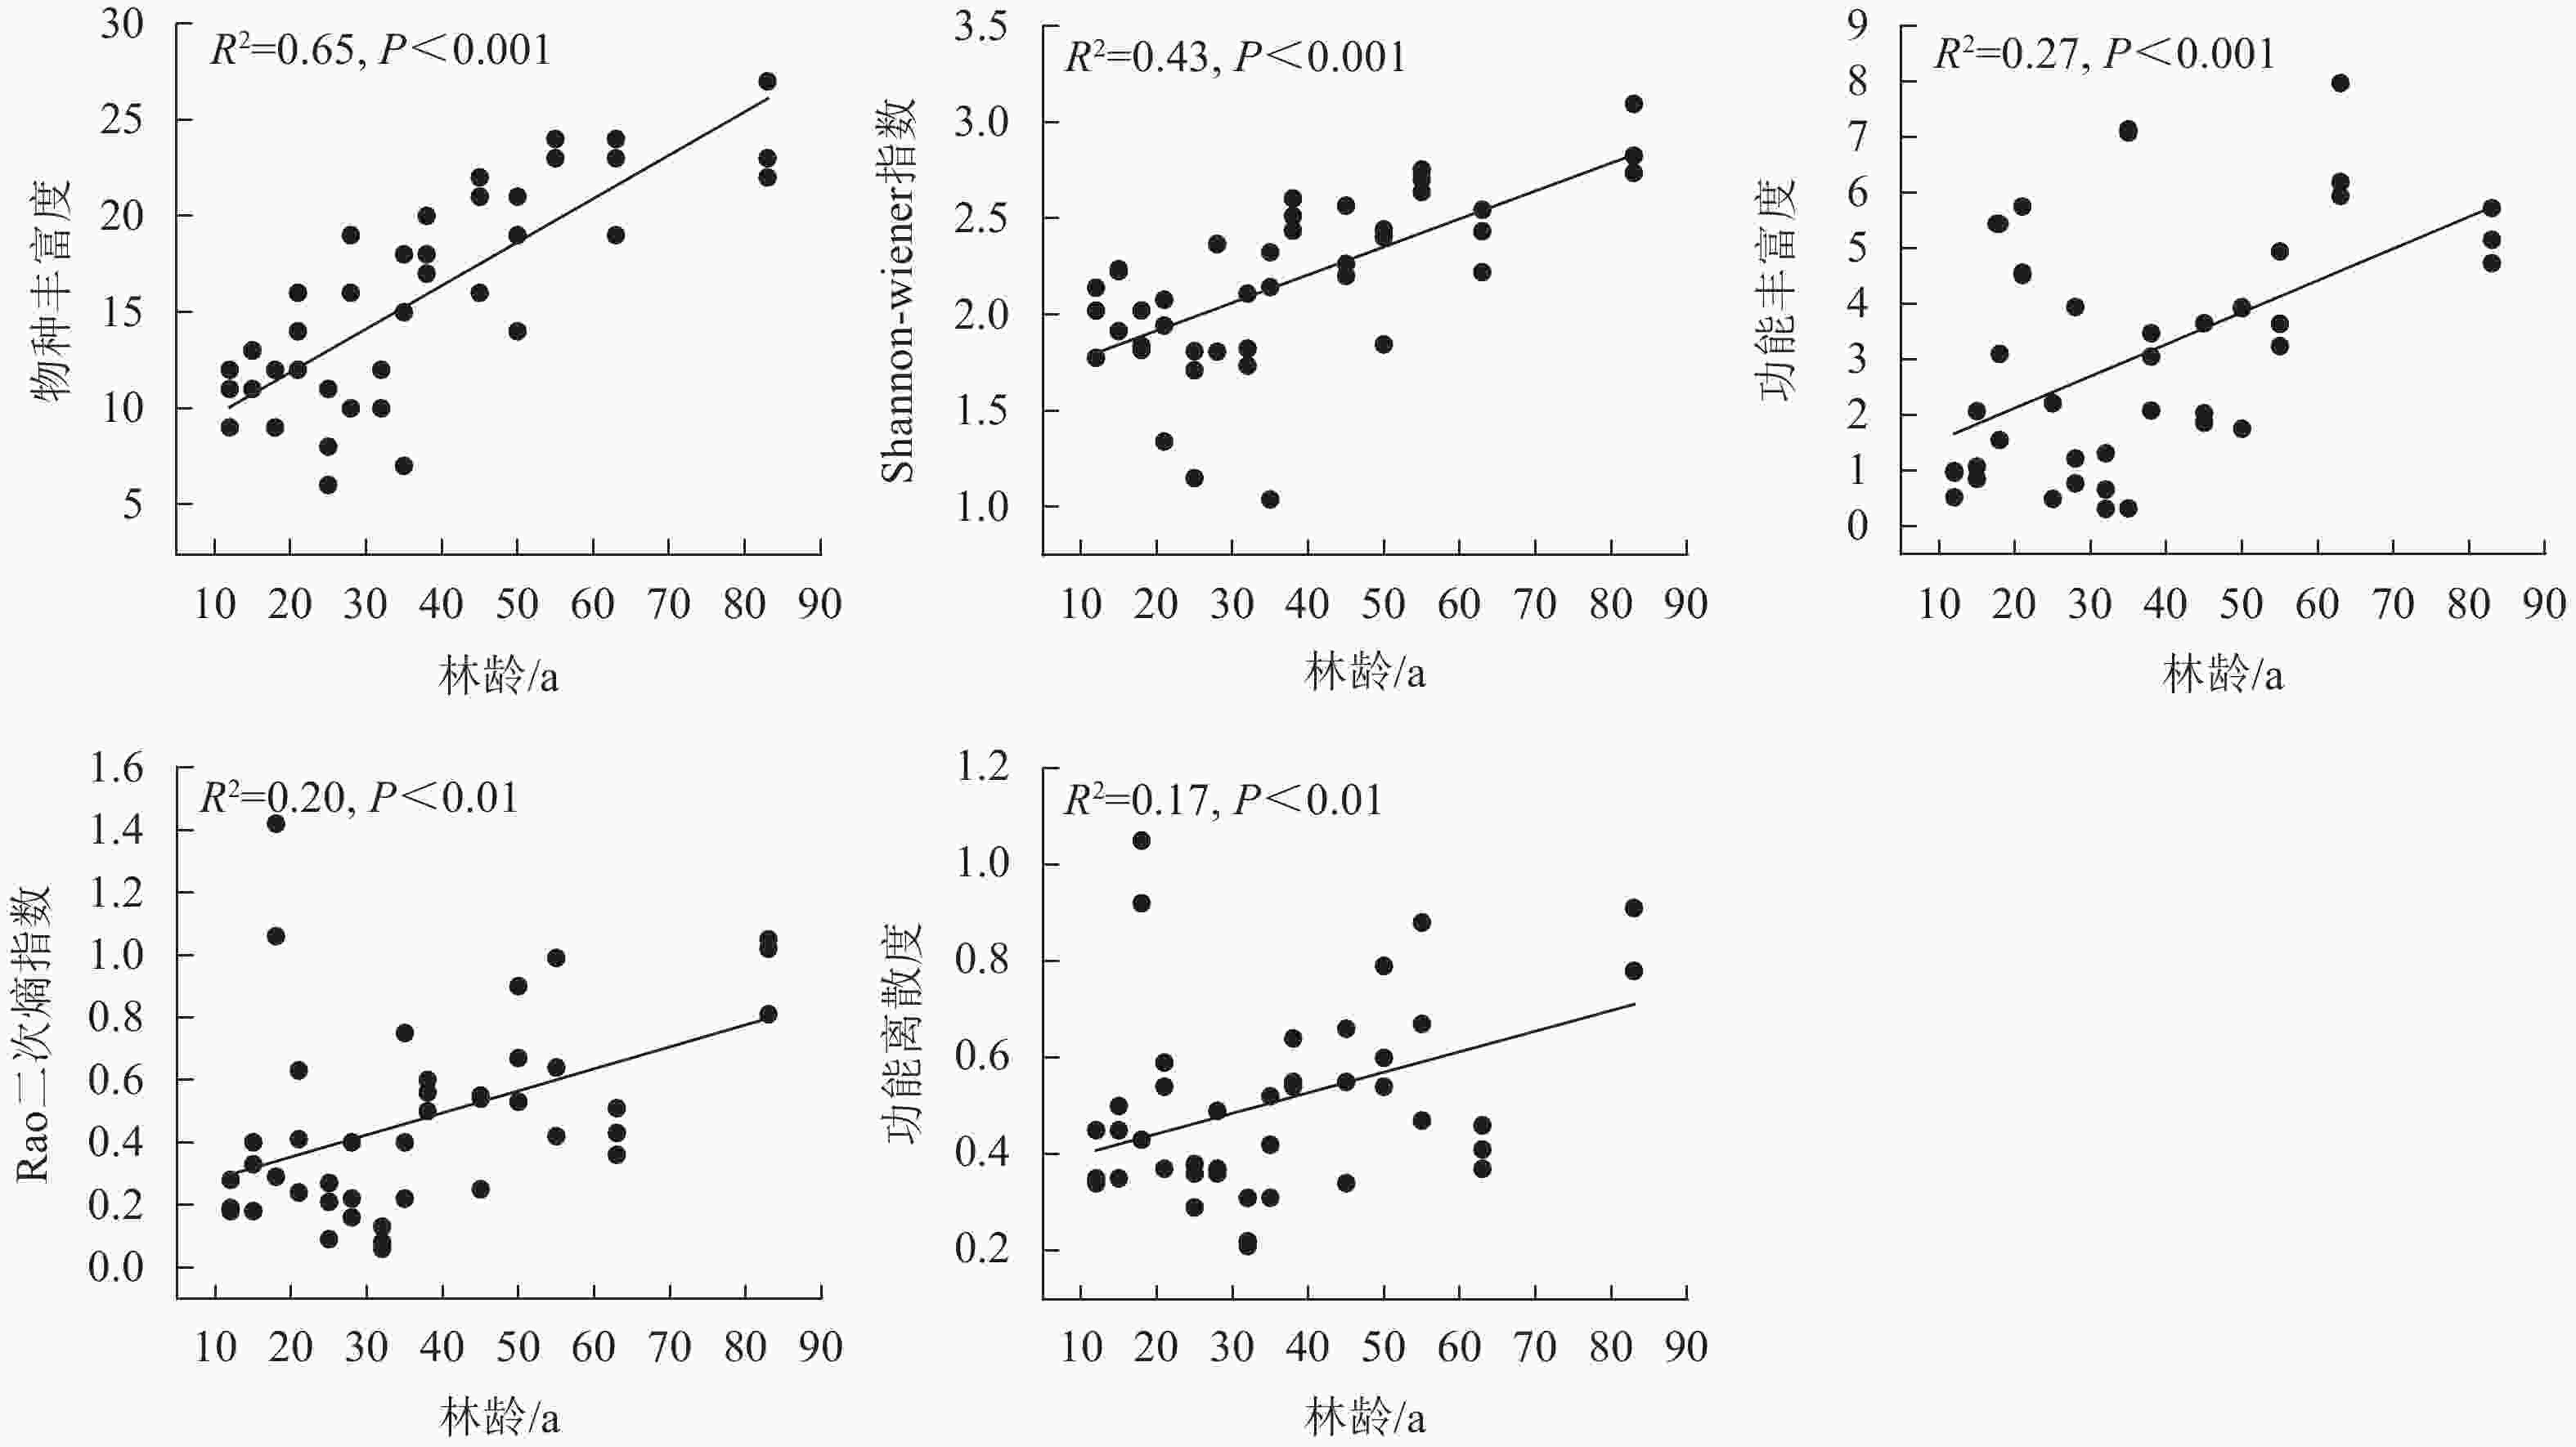
图 1 沿林龄序列华北落叶松人工林林下植被物种与功能多样性的变化
Figure 1. Changes in the species and functional diversity of understory vegetation across a chronosequence of L. gmelinii var. principis-rupprechtii plantation
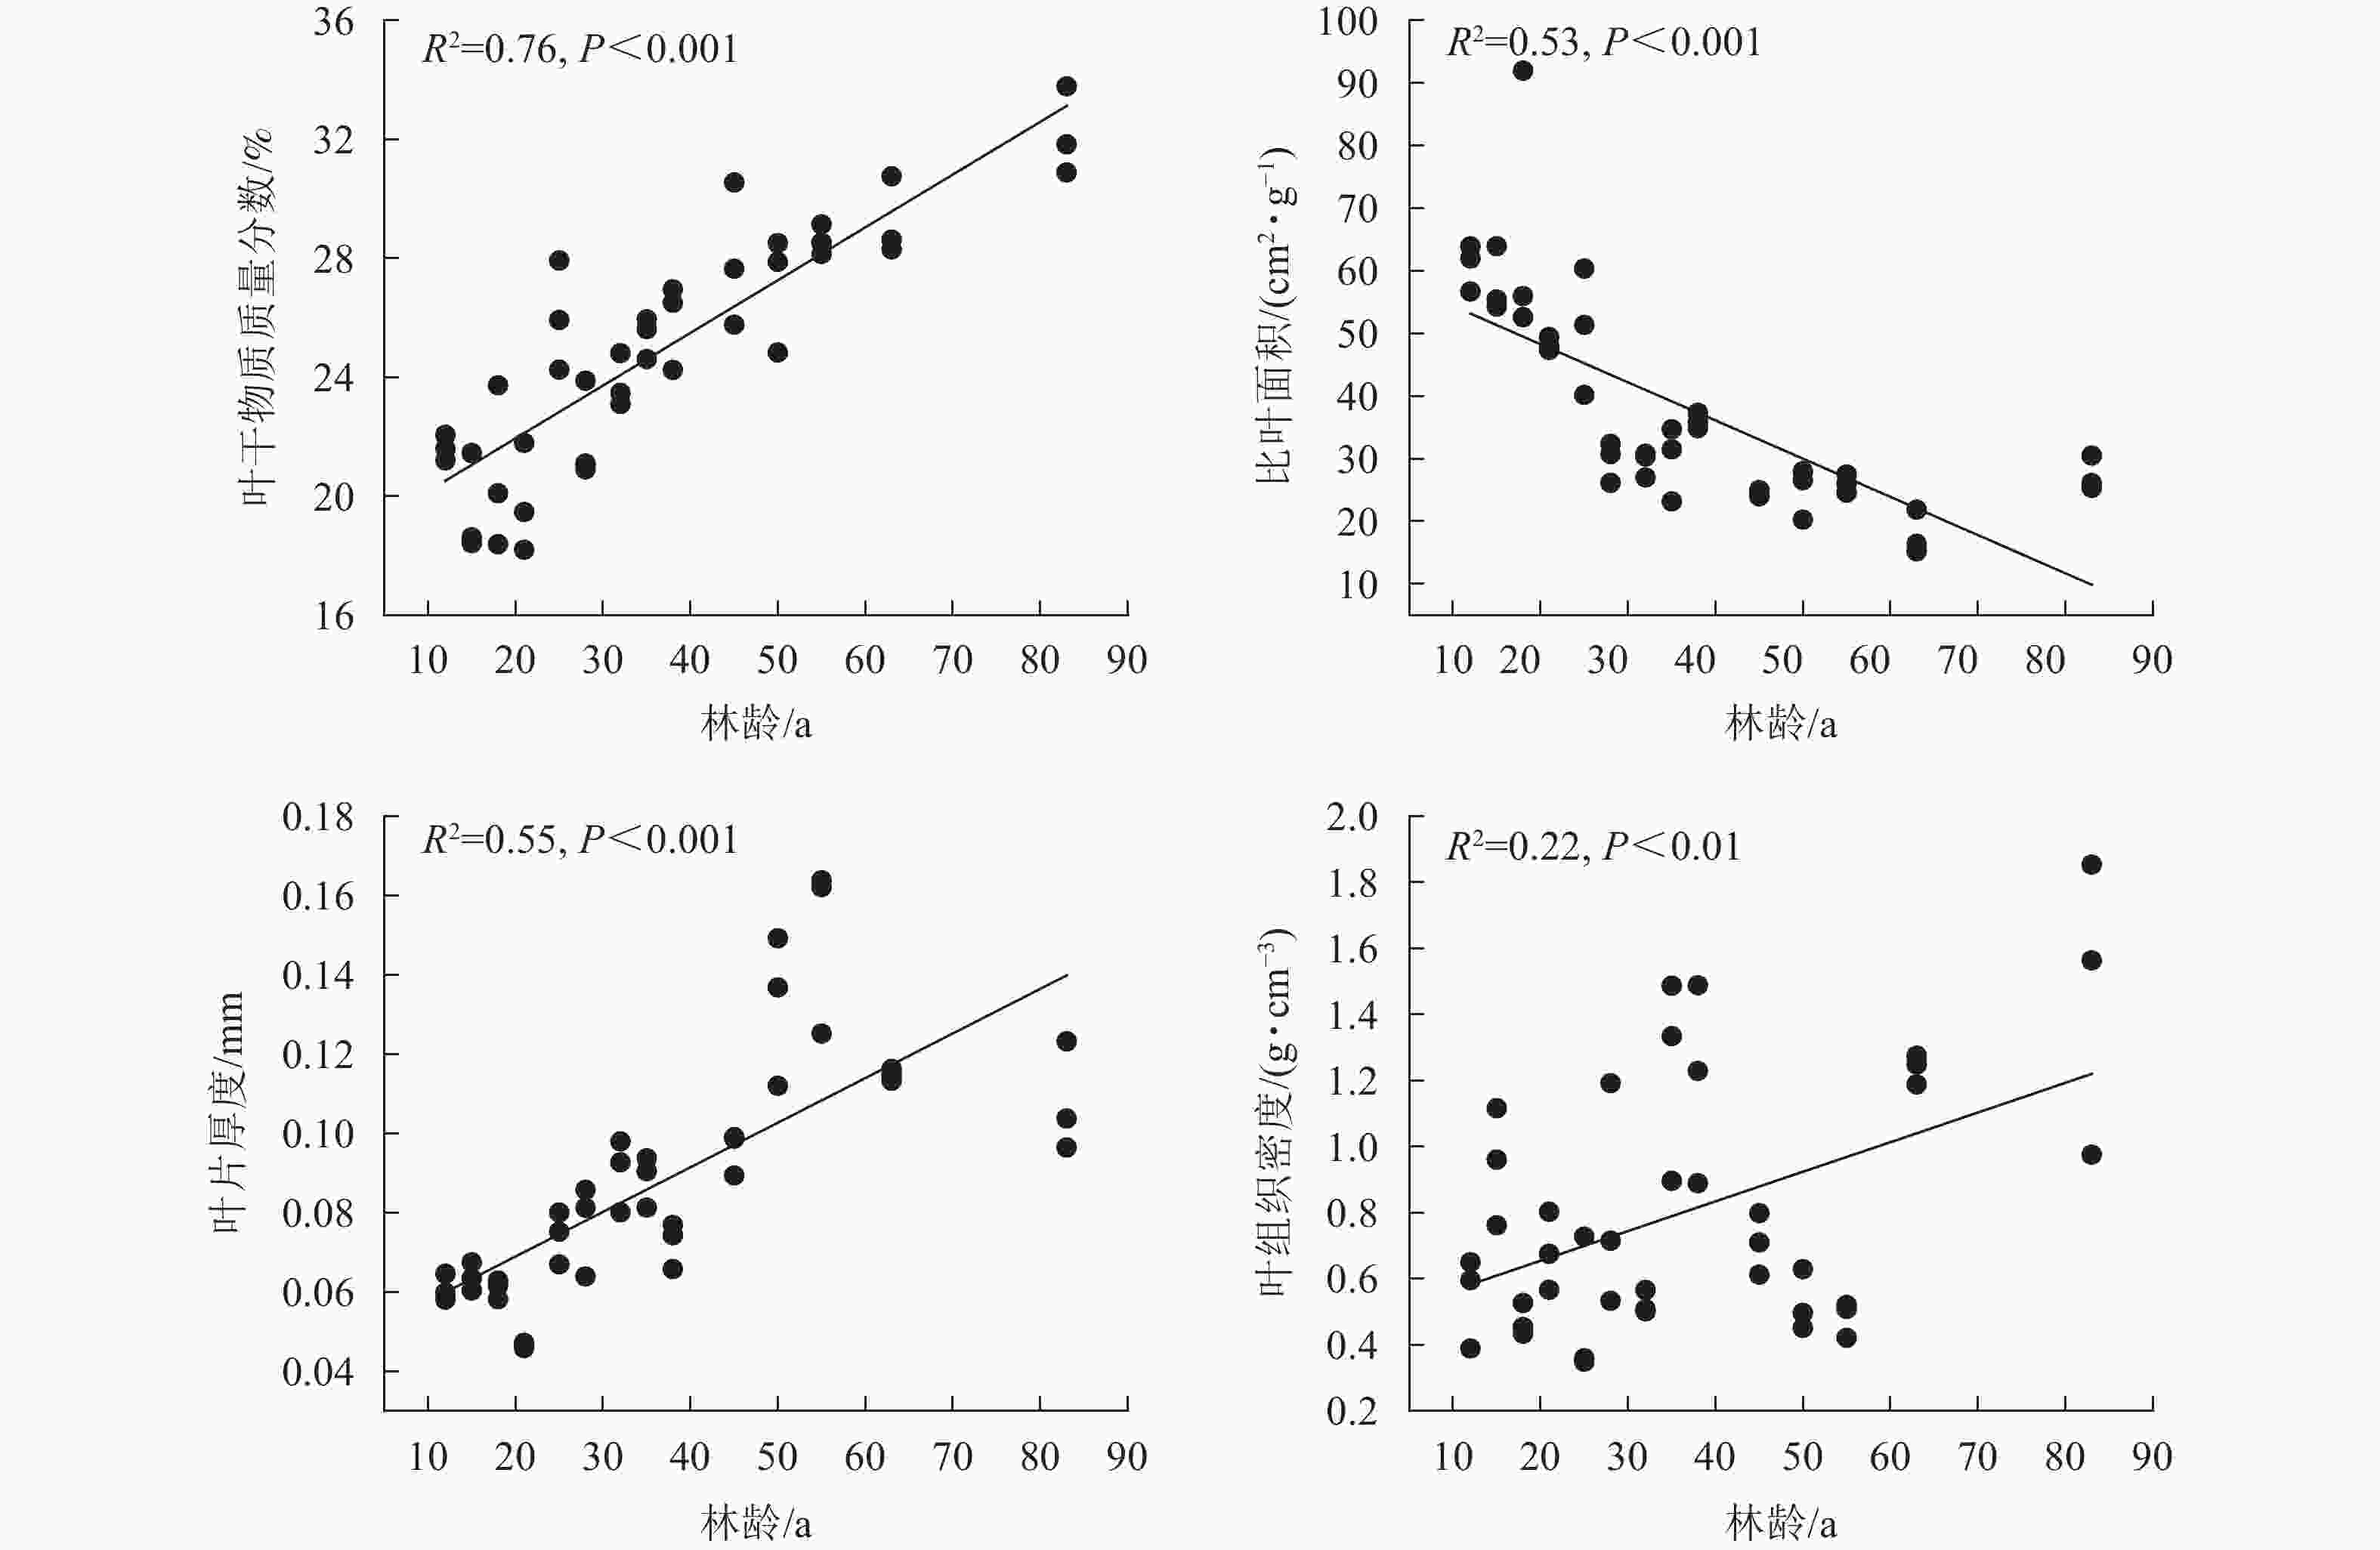
图 2 沿林龄序列华北落叶松人工林下植物叶功能性状群落加权平均值的变化
Figure 2. Changes in the community-weighted mean of leaf traits in understory vegetation across a chronosequence of L. gmelinii var. principis-rupprechtii plantations
-
相关性分析结果显示(表2):林下植被物种丰富度、功能丰富度与土壤砂粒百分比、林分密度、郁闭度呈显著负相关,与海拔、土壤粉粒百分比、土壤黏粒百分比、土壤有机碳、土壤全氮、凋落物层现存量呈显著正相关(P<0.05)。物种丰富度与土壤容重、土壤pH呈显著负相关,与土壤含水量、土壤碱解氮、植被地上生物量、胸高断面积呈显著正相关(P<0.05)。功能丰富度土壤全磷、土壤有效磷呈显著负相关(P<0.05)。功能离散度、Rao二次熵指数与海拔、土壤有机碳、土壤全氮呈显著的正相关,与土壤全磷呈显著负相关(P < 0.05)。Rao二次熵指数与土壤黏粒百分比呈显著正相关,与郁闭度呈显著的负相关(P<0.05)。
表 2 人工林下植被多样性与环境因素的相关性分析
Table 2. Relationships between environmental factors and diversity of understory vegetation
因素 物种
丰富度功能
丰富度功能
离散度Rao二次熵指数 功能性状群落加权平均值 叶干物质质量分数 比叶面积 叶片厚度 叶组织密度 土壤容重 −0.33* −0.30 0.04 −0.01 −0.50** 0.50** −0.48** −0.40** 土壤pH −0.50** −0.27 0.05 0.06 −0.48** 0.49** −0.17 −0.45** 土壤砂粒百分比 −0.73*** −0.38* −0.24 −0.29 −0.82*** 0.84*** −0.79*** −0.32* 土壤粉粒百分比 0.67*** 0.34* 0.18 0.24 0.75*** −0.84*** 0.80*** 0.27 土壤黏粒百分比 0.69*** 0.38* 0.30 0.33* 0.76*** −0.67*** 0.60*** 0.35* 土壤含水量 0.36* 0.17 0.14 0.18 0.57** −0.56*** 0.68*** 0.01 土壤有机碳 0.74*** 0.48** 0.38* 0.37* 0.75*** −0.57*** 0.66*** 0.31* 土壤全氮 0.62*** 0.48** 0.34* 0.34* 0.67*** −0.50** 0.46** 0.32* 土壤全磷 −0.29 −0.35* −0.35* −0.58*** −0.42** 0.14 −0.37* −0.25 土壤碱解氮 0.49** 0.19 0.03 0.08 0.48** −0.70*** 0.78*** −0.04 土壤有效磷 −0.23 −0.48** −0.09 −0.18 −0.34* 0.18 −0.11 −0.41** 林分密度 −0.56*** −0.41** −0.21 −0.27 −0.66*** 0.76*** −0.59*** −0.33* 郁闭度 −0.73*** −0.36* −0.28 −0.32* −0.84*** 0.81*** −0.79*** −0.30 凋落物层现存量 0.47** 0.34* 0.30 0.29 0.49** −0.52*** 0.32* 0.29 植被地上生物量 0.40** 0.27 0.16 0.17 0.47** −0.31* 0.26 −0.01 植被地下生物量 0.01 0.16 0.15 0.13 0.22 0.05 −0.14 0.11 胸高断面积 0.39** 0.07 0.06 0.08 0.51** −0.54*** 0.60*** −0.03 海拔 0.48** 0.44** 0.37* 0.37* 0.54*** −0.26 0.27 0.44** 坡度 0.08 0.29 0.07 0.11 0.18 −0.15 0.01 0.30 说明:表格中数值为相关系数;*. P<0.05;**. P<0.01;***. P<0.001。 对于功能性状群落加权平均值,叶干物质质量分数、叶组织密度与土壤容重、土壤砂粒百分比、土壤全磷、林分密度、郁闭度呈显著负相关,与土壤粉粒百分比、土壤黏粒百分比、土壤含水量、土壤有机碳、土壤全氮、土壤碱解氮、凋落物层现存量、胸高断面积呈显著正相关(P<0.05);比叶面积与上述因子的关系呈相反的规律。叶干物质质量分数还与土壤pH、土壤有效磷呈显著负相关,与植被地上生物量、海拔呈显著正相关(P<0.05);比叶面积则与土壤pH呈显著的正相关,与植被地上生物量呈显著负相关(P<0.05)。叶片厚度与土壤容重、土壤砂粒百分比、土壤有效磷、林分密度呈显著的负相关,与土壤黏粒百分比、土壤有机碳、土壤全氮呈显著正相关(P<0.05)。
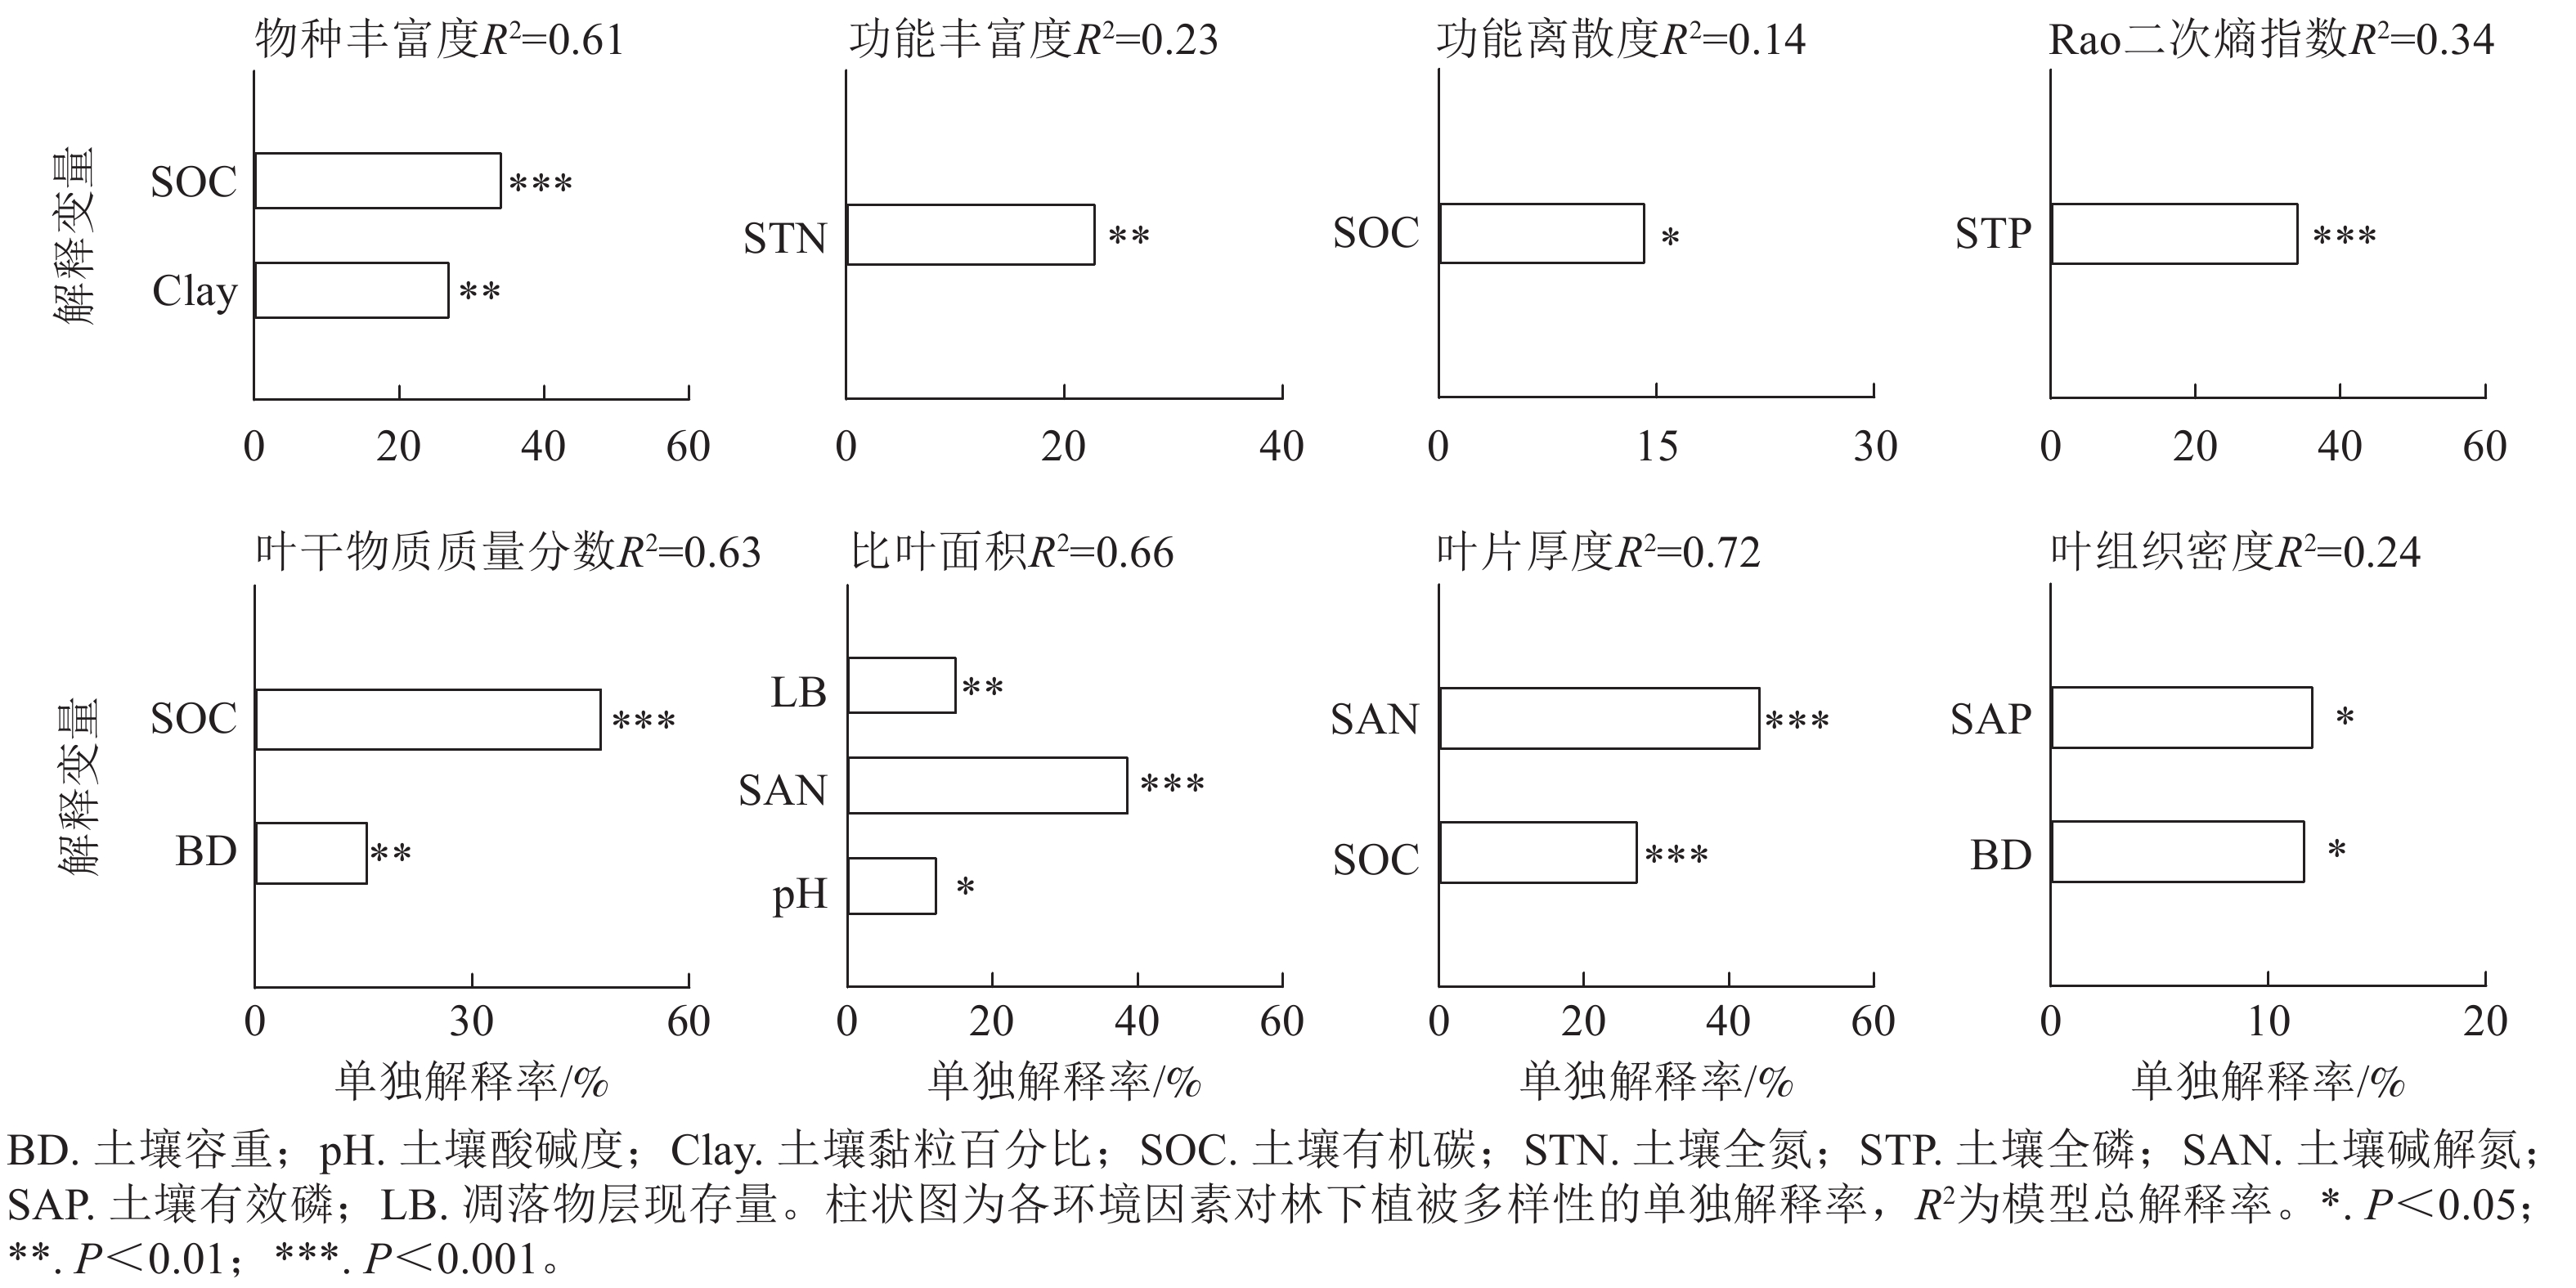
最优多元回归模型分别解释林下植被物种丰富度、功能丰富度、功能离散度、Rao二次熵指数变化的60.82%、22.78%、14.15%和34.04%。其中土壤有机碳、土壤黏粒百分比对物种丰富度的单独解释率分别为34.00%、26.82%;土壤全氮、土壤有机碳、土壤全磷分别对功能丰富度、功能离散度、Rao二次熵指数的单独解释率为22.78%、14.15%、34.04%。对于功能性状群落加权平均值,最优多元回归模型分别解释叶干物质质量分数、比叶面积、叶片厚度、叶组织密度变化的63.28%、65.67%、71.51%和23.65%(图3)。土壤有机碳、土壤有效磷分别对叶干物质质量分数、叶组织密度的单独解释率为47.83%和12.01%。土壤碱解氮对比叶面积和叶片厚度的单独解释率分别为38.59%、44.26%。
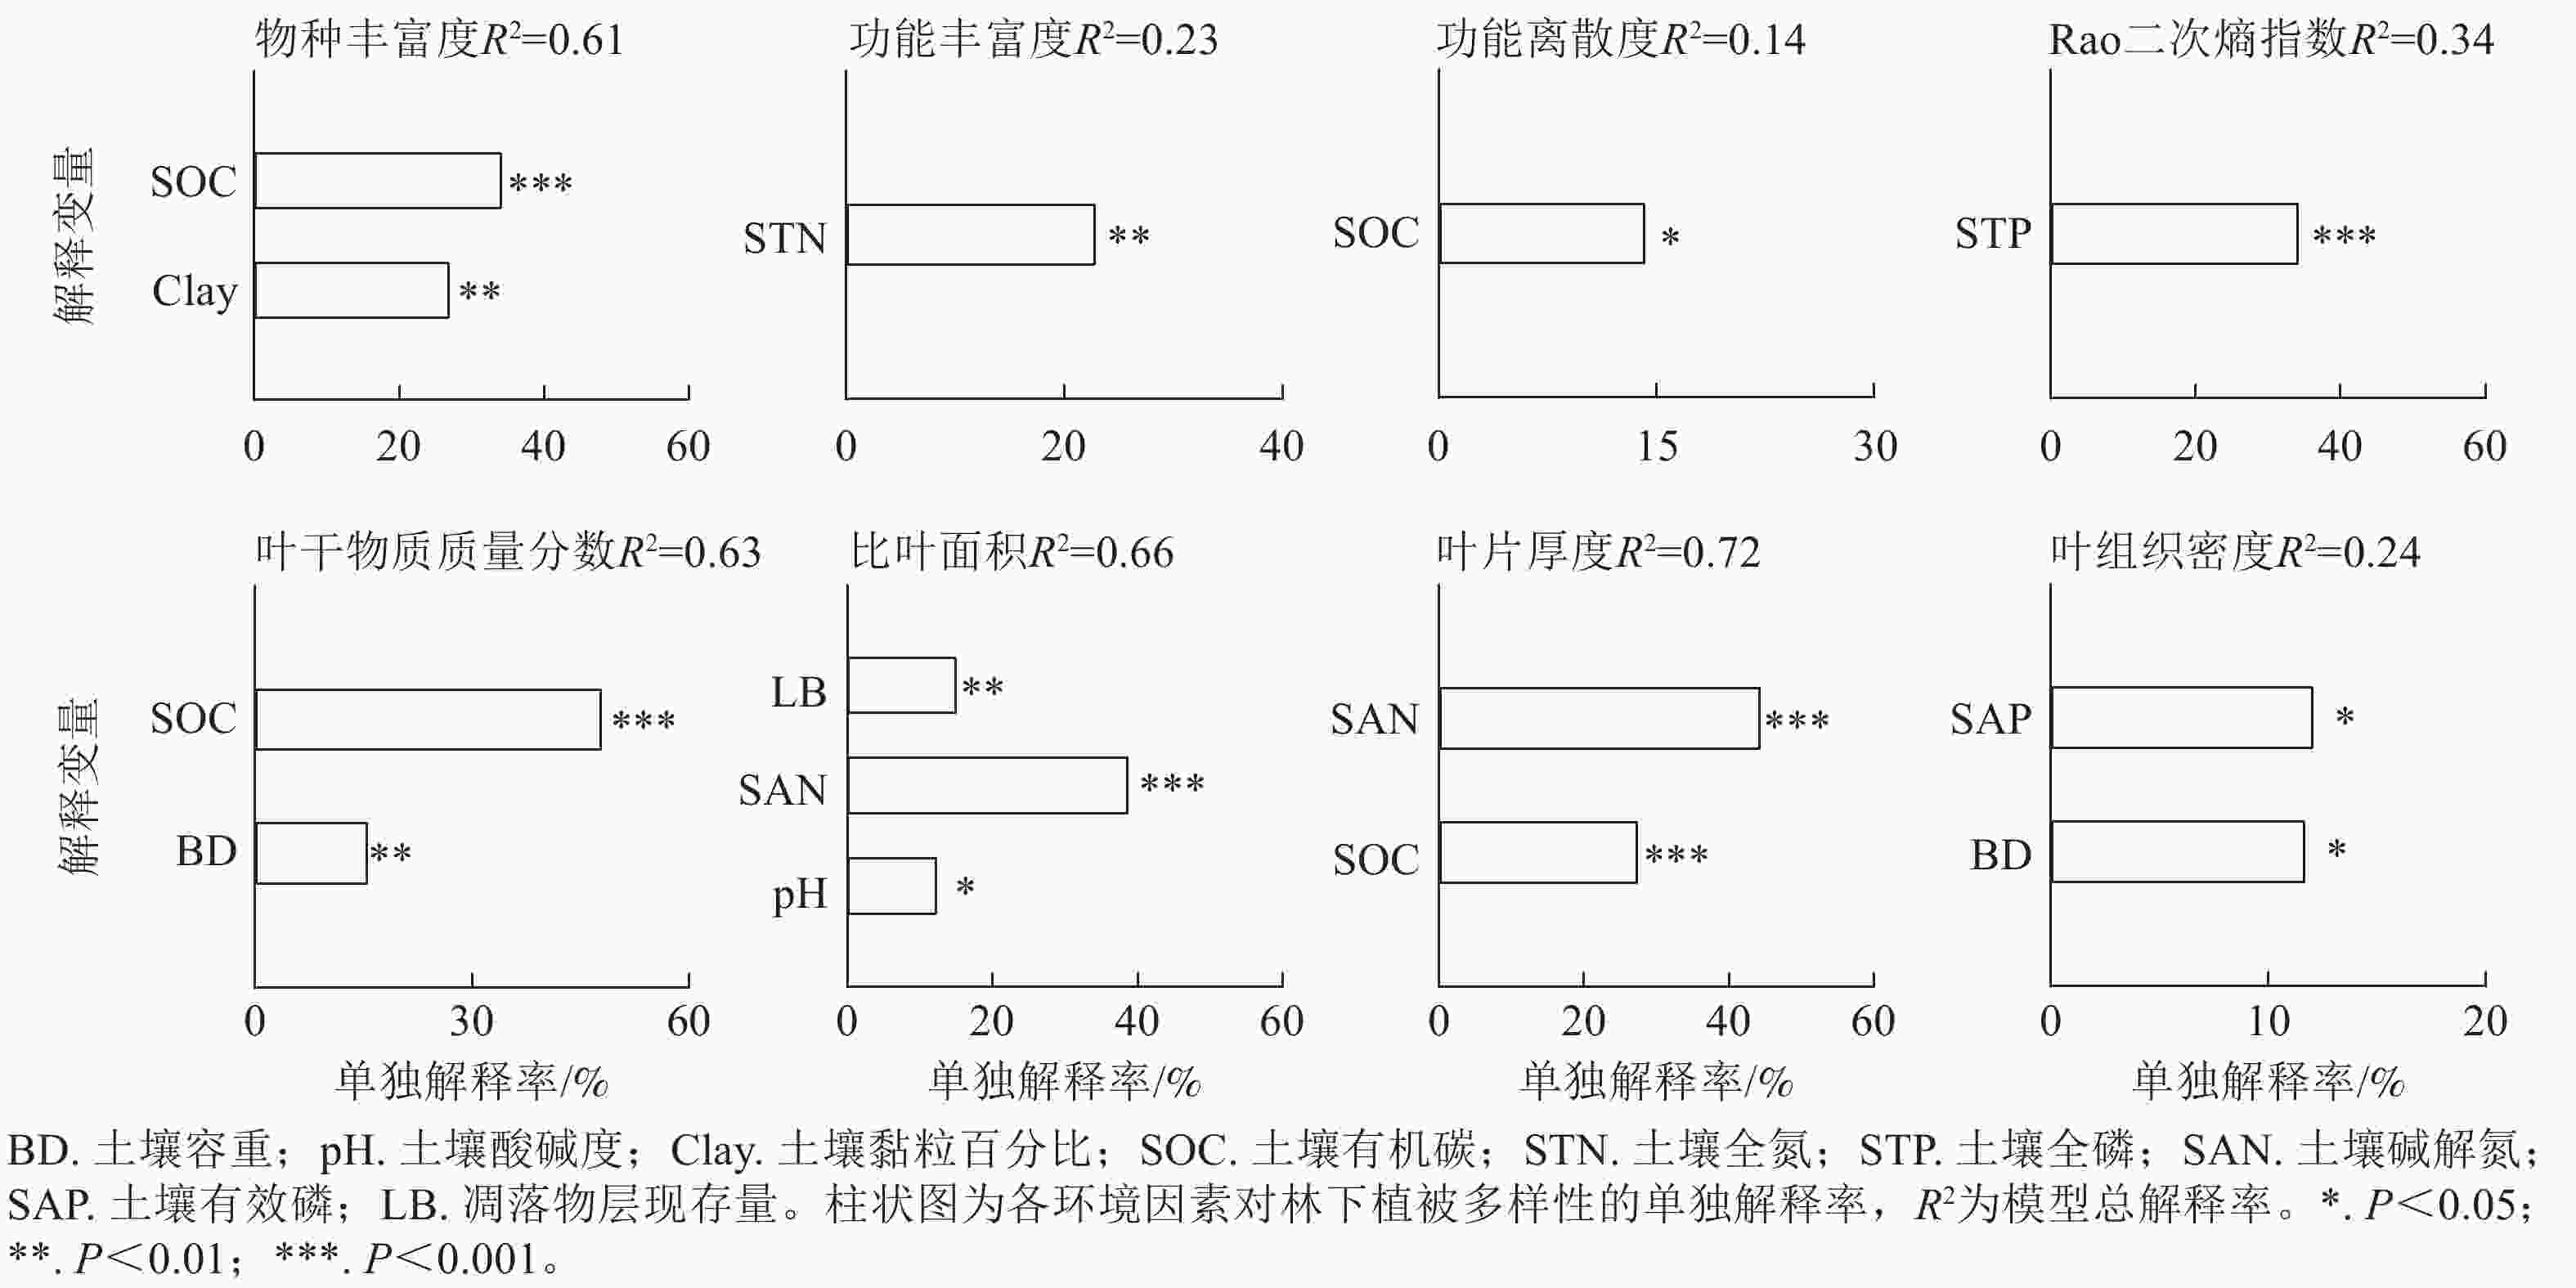
图 3 环境因素对林下植被多样性的解释
Figure 3. Relative contribution of environmental factors for understory vegetation diversity
-
本次调查在塞罕坝华北落叶松人工林下共记录灌草植物103种,分属37科94属,其中菊科、禾本科、毛茛科和蔷薇科是主要优势科。这一结果与前人在该区域研究基本一致[29]。本研究进一步聚焦人工林沿林龄序列物种组成的定向演替过程,揭示林下植物群落组成由先锋物种向地带性物种的演替规律。具体而言,中幼龄林阶段(12~25 a),林下植被以蒌蒿Artemisia selengensis、草问荆Equisetum pratense等1、2年生先锋草本为主;成熟林阶段(>45 a),大披针薹草Carex lanceolata、地榆Sanguisorba officinalis、唐松草Thalictrum aquilegiifolium var. sibiricum等多年生杂类草,以及稠李、花楸树等灌木逐渐成为优势种,群落由单一草本阶段向灌草复合阶段演替。群落内现有物种组成是环境筛选与种间竞争共同作用的结果[30]。在幼龄林阶段,华北落叶松人工林林分密度较高,达(1 872±654) 株·hm−2,林冠快速郁闭导致林下光照匮乏,并且土壤有机碳质量分数低,养分贫瘠,仅有耐受性强、繁殖迅速的1、2年生植物能够凭借其优势率先定居[31]。这类植物生命周期短、资源获取能力强,能在资源匮乏的生境中快速完成生活史,符合典型的“杂草策略”[32]。随林龄增加,如成熟林阶段,林分自然稀疏,密度降至(696±197) 株·hm−2,林下透光率显著提升;在这一阶段,乔木凋落物逐年积累并分解,土壤养分与水分状况得到改善[33]。生境条件的好转使得支持物种多样性的生态位大幅增加,导致竞争能力强的多年生植物逐步取代先锋物种。此外,前期研究表明,生物多样性与林龄呈显著正相关[34],与本研究结果一致,即随林龄增加,华北落叶松人工林下植被物种丰富度与Shannon-Wiener指数整体上呈不断升高的变化趋势。
-
本研究发现,功能丰富度、功能离散度和Rao二次熵指数均随林龄增加显著上升。功能丰富度通过量化物种在功能性状空间中所占据的范围,反映植物群落对各类资源的利用效率。幼龄林阶段功能丰富度较低,表明功能空间受到压缩,高郁闭度、低养分等强烈的环境过滤作用限制了功能性状的可变范围,使群落物种性状分布于相对有限的空间。与此同时,该阶段功能离散度较低,表明林下植被功能性状呈现明显的“优势化”格局。少量优势度极高的植物物种,其功能性状在林下植被中占据主导地位,致使其他物种的功能性状分布不均匀且分化程度低[35]。幼龄林阶段Rao二次熵指数较小,同样反映出植物为适应光照和养分限制,在功能性状上趋同,对资源利用的互补性较弱[36]。进入成熟林阶段后,较高的功能丰富度和功能离散度表明,物种功能性状空间更大且在空间中的分布更加分散,具有不同资源获取策略的植物物种能够占据多维生态位空间。
植物群落功能性状能够在群落尺度体现其环境适应性。本研究发现:对于功能性状的群落加权平均值,随林龄增加,比叶面积显著降低,而叶干物质质量分数、叶组织密度和叶片厚度则显著增加。这一性状组合的变化表明,林下植被的生存策略由资源获取型向资源保守型的转变。在中幼龄林阶段,郁闭度处于较高水平,光照匮乏成为林下植被生长的主要限制因子。林下植物表现为高比叶面积、低叶干物质质量分数和叶片厚度,能够在资源有限的环境中快速生长,属“杂草策略”。随着林龄增加,郁闭度下降,水分与养分环境条件好转,低比叶面积、高叶干物质质量分数和叶片厚度的林下植物获得优势,植物表现出保守策略。这可能是因为区域人工林优势种华北落叶松根系发达,消耗大量土壤养分,导致林下植被可利用资源不足。林下草本植物较木本植物竞争能力弱,因而表现为保守的资源利用策略,通过降低生长速率以维持基本的代谢活动[37−38]。
-
本研究结果证实人工造林可显著改善土壤属性[39−40]。随着林龄增长,土壤含水量、粉粒百分比、黏粒百分比、有机碳、全氮、碱解氮显著增加,而全磷、有效磷、砂粒百分比显著降低;胸高断面积、植被地上生物量、植被地下生物量、凋落物层现存量随林龄增长显著增加,林分密度显著降低。林下植被生物多样性与环境因素的相关分析表明:物种丰富度、功能丰富度与海拔、凋落物层现存量、土壤粉粒百分比、土壤黏粒百分比、土壤有机碳、土壤全氮均呈显著正相关,与土壤砂粒百分比、郁闭度呈显著负相关。物种丰富度与土壤容重、土壤pH、林分密度呈显著负相关,与土壤水分、土壤碱解氮、植被地上生物量、胸高断面积呈显著正相关。功能丰富度与土壤全磷、土壤有效磷呈显著负相关。由此可见,林下植被生物多样性的形成与维持受多种环境因素的综合调控。
本研究多元回归结果显示:土壤全氮、土壤有机碳、土壤全磷分别是功能丰富度、功能离散度和Rao二次熵指数的主要影响因素,物种丰富度则受到土壤有机碳和土壤黏粒百分比的共同影响。就功能性状群落加权平均值而言,土壤有机碳、土壤有效磷分别是叶干物质质量分数、叶组织密度的主要影响因素;土壤碱解氮决定着比叶面积和叶片厚度的变化。这些结果一致表明,随林龄变化的土壤养分是林下植被性状及多样性的重要影响因素。土壤碳、氮是植物生长需求最大的养分元素,其有效性的提升对植物生长具有显著的促进作用[41]。随着林龄增长,凋落物和根系分泌物增加,为林地释放更多的养分,提高土壤水源涵养能力与基质稳定性[42],为更多物种的定居、生长发育创造良好条件,促进林下植被演替的顺利进行与物种多样化。此外,土壤养分对功能性状的影响也体现在幼龄林阶段,养分限制可能通过筛选具有特定功能性状的植物,导致物种多样性和功能多样性[43]较低。
本研究存在部分局限性。在影响因素选取方面,多元模型中林分特征、地形与土壤因素对林下植被多样性的解释比例仍有部分空白。未来应综合考虑气候、土壤、生物等因素的作用,深入揭示林下植被多样性的形成与演变机制。此外,本研究使用郁闭度作为林下光环境的替代指标,未直接测定林冠开度或光照强度等指标。未来应结合林下光环境监测,进一步验证研究结论。
-
不同林龄华北落叶松人工林下植被优势种以菊科、禾本科、毛茛科、蔷薇科为主,呈现优势种集中于少数科,稀有种分散于多科的分布特征,多年生杂类草在成熟林和过熟林阶段占优。随林龄增加,林下植被逐渐多样化;功能性状呈现资源获取型向资源保守型的转变。林龄通过改善林下微生境来影响林下植被多样性与功能性状。
本文已在中国知网网络首发,可在知网搜索、下载并阅读全文。
不同林龄华北落叶松人工林下植被物种与功能多样性及其影响因素
DOI: 10.11833/j.issn.2095-0756.20260368
Species and functional diversity of understory vegetation in Larix gmelinii var. principis-rupprechtii plantations at different ages and their influencing factors
-
摘要:
目的 研究塞罕坝不同林龄华北落叶松Larix gmelinii var. principis-rupprechtii人工林下植被物种组成与多样性指数,探讨不同林龄人工林下植被物种与功能多样性的变化特征及主要影响因素,以期为高寒沙地人工林生物多样性保育提供理论依据。 方法 以塞罕坝长期林龄序列(12~83 a)华北落叶松人工林为研究对象,调查林下植被物种组成与叶功能性状,并测定土壤理化性质(有机氮、全氮、全磷、碱解氮、有效磷、pH、容重、含水量及土壤颗粒组成),计算物种多样性(物种丰富度、Shannon-Wiener指数)、叶功能性状的群落加权平均值(叶干物质质量分数、比叶面积、叶片厚度、叶组织密度)及功能多样性指数(功能丰富度、功能离散度、Rao二次熵指数),分析林龄对林下植被多样性的影响。 结果 ①不同林龄人工林共记录灌草植物103种,分属37科,优势种以菊科Asteraceae、禾本科Gramineae、毛茛科Ranunculaceae、蔷薇科Rosaceae为主。②随林龄增加,林下植被物种丰富度、Shannon-Wiener指数、功能丰富度、功能离散度和Rao二次熵指数均极显著增加(P<0.01)。林龄极显著增加叶干物质质量分数、叶组织密度、叶片厚度的群落加权平均值,但降低比叶面积的群落加权平均值(P<0.01)。③多元回归分析表明:土壤有机碳是物种丰富度、功能离散度和叶干物质质量分数的群落加权平均值的主要影响因素,单独解释率分别为34.00%、14.15%和47.83%;土壤全氮、全磷、有效磷则分别为功能丰富度、Rao二次熵指数、叶组织密度的群落加权平均值的主要影响因素,单独解释率为22.78%、34.04%和12.01%。对于比叶面积和叶片厚度的群落加权平均值,土壤碱解氮为主要因素,单独解释率分别为38.59%、44.26%。 结论 随华北落叶松人工林林龄增加,林下植被物种及功能多样性显著增加,功能策略从资源获取型转向资源保守型;林龄通过改善土壤养分影响林下植被多样性变化。塞罕坝人工林管理实践应注重土壤养分的维持,以促进林下植被多样性的保育。图3表2参43 Abstract:Objective The study aims to investigate the species composition and diversity index of understory vegetation in Larix gmelinii var. principis-rupprechtii plantations at different ages in Saihanba, and explore the variation patterns and influencing factors of species and functional diversity of understory vegetation in plantations at different ages, so as to provide theoretical support for biodiversity conservation in alpine sandy land plantations. Method Taking the long-term forest age sequence (12−83 a) of L. gmelinii var. principis-rupprechtii plantations in Saihanba as the research object, the species composition and leaf functional traits of understory vegetation were investigated, and soil physicochemical properties (soil organic carbon, total nitrogen, total phosphorus, alkali-hydrolyzable nitrogen, available phosphorus, pH, bulk density, water content, and soil particle composition) were measured. The species diversity (species richness, Shannon-Wiener index), community-weighted mean (CWM) of leaf functional traits (leaf dry matter content, specific leaf area, leaf thickness, and leaf tissue density), and functional diversity index (functional richness, functional divergence, and Rao’s quadratic entropy) were calculated to analyze the impact of forest age on understory vegetation diversity. Result (1) A total of 103 species of shrubs and herbs were recorded, belonging to 37 families. The dominant species mainly belonged to Asteraceae, Poaceae, Ranunculaceae and Rosaceae. (2) The species richness, Shannon-Wiener index, functional richness, functional divergence and Rao’s quadratic entropy of understory vegetation all increased significantly with increasing stand age (P< 0.01). The stand age significantly increased CWM of leaf dry matter content, leaf tissue density and leaf thickness, but decreased CWM of specific leaf area (P<0.01). (3) Multiple regression analysis indicated that soil organic carbon was the dominant factor affecting species richness, functional divergence and CWM of leaf dry matter content, with individual explanatory rates of 34.00%, 14.15%, and 47.83%, respectively. Soil total nitrogen, total phosphorus, and available phosphorus were the main influencing factors on functional richness, Rao’s quadratic entropy and CWM of leaf tissue density, with individual explanatory rates of 22.78%, 34.04% and 12.01%, respectively. For CWM of specific leaf area and leaf thickness, soil alkali-hydrolyzable nitrogen was the main factor, with individual explanatory rates of 38.59%, and 44.26%, respectively. Conclusion With increasing stand ages, the species and functional diversity of understory vegetation in L. gmelinii var. principis-rupprechtii plantations increase significantly, and the functional strategy shifts from resource acquisition type to conservative type. Stand ages influence variations in understory vegetation diversity by improving soil nutrient. Therefore, management practices for plantations in Saihanba should focus on the maintenance of soil nutrients to promote the biodiversity conservation of understory vegetation. [Ch, 3 fig. 2 tab. 43 ref.] -
图 1 沿林龄序列华北落叶松人工林林下植被物种与功能多样性的变化
Figure 1 Changes in the species and functional diversity of understory vegetation across a chronosequence of L. gmelinii var. principis-rupprechtii plantation
图 2 沿林龄序列华北落叶松人工林下植物叶功能性状群落加权平均值的变化
Figure 2 Changes in the community-weighted mean of leaf traits in understory vegetation across a chronosequence of L. gmelinii var. principis-rupprechtii plantations
图 3 环境因素对林下植被多样性的解释
Figure 3 Relative contribution of environmental factors for understory vegetation diversity
表 1 塞罕坝华北落叶松人工林调查点概况
Table 1. General situation of L. gmelinii var. principis-rupprechtii plantations plot in Saihanba
龄组 林龄/a 海拔/m 坡向 坡度/(°) 平均胸径/cm 平均树高/m 胸高断
面积/cm2林分密度/
(株·hm−2)郁闭度 幼龄林 12、15、18 1 603±46 东、西、西 9.3±1.3 9.9±3.4 7.7±2.3 87.0±48.1 1 872±654 0.81±0.03 中龄林 21、25、28 1 624±35 西、南、东北 7.6±2.5 18.7±4.5 9.2±1.9 297.6±107.7 1 519±478 0.69±0.04 近熟林 32、35、38 1 586±33 北、南、南 9.5±4.7 20.2±5.6 10.8±1.9 401.6±172.3 1 067±318 0.48±0.07 成熟林 45、50、55 1 593±39 东、东北、南 7.3±3.6 25.9±6.0 11.6±2.0 604.0±81.8 696±197 0.32±0.02 过熟林 63、83 1 808±26 东南、西北 11.8±3.6 27.0±9.8 11.7±3.0 857.2±789.6 428±65 0.37±0.08  下载: 导出CSV
表 2 人工林下植被多样性与环境因素的相关性分析
Table 2. Relationships between environmental factors and diversity of understory vegetation
因素 物种
丰富度功能
丰富度功能
离散度Rao二次熵指数 功能性状群落加权平均值 叶干物质质量分数 比叶面积 叶片厚度 叶组织密度 土壤容重 −0.33* −0.30 0.04 −0.01 −0.50** 0.50** −0.48** −0.40** 土壤pH −0.50** −0.27 0.05 0.06 −0.48** 0.49** −0.17 −0.45** 土壤砂粒百分比 −0.73*** −0.38* −0.24 −0.29 −0.82*** 0.84*** −0.79*** −0.32* 土壤粉粒百分比 0.67*** 0.34* 0.18 0.24 0.75*** −0.84*** 0.80*** 0.27 土壤黏粒百分比 0.69*** 0.38* 0.30 0.33* 0.76*** −0.67*** 0.60*** 0.35* 土壤含水量 0.36* 0.17 0.14 0.18 0.57** −0.56*** 0.68*** 0.01 土壤有机碳 0.74*** 0.48** 0.38* 0.37* 0.75*** −0.57*** 0.66*** 0.31* 土壤全氮 0.62*** 0.48** 0.34* 0.34* 0.67*** −0.50** 0.46** 0.32* 土壤全磷 −0.29 −0.35* −0.35* −0.58*** −0.42** 0.14 −0.37* −0.25 土壤碱解氮 0.49** 0.19 0.03 0.08 0.48** −0.70*** 0.78*** −0.04 土壤有效磷 −0.23 −0.48** −0.09 −0.18 −0.34* 0.18 −0.11 −0.41** 林分密度 −0.56*** −0.41** −0.21 −0.27 −0.66*** 0.76*** −0.59*** −0.33* 郁闭度 −0.73*** −0.36* −0.28 −0.32* −0.84*** 0.81*** −0.79*** −0.30 凋落物层现存量 0.47** 0.34* 0.30 0.29 0.49** −0.52*** 0.32* 0.29 植被地上生物量 0.40** 0.27 0.16 0.17 0.47** −0.31* 0.26 −0.01 植被地下生物量 0.01 0.16 0.15 0.13 0.22 0.05 −0.14 0.11 胸高断面积 0.39** 0.07 0.06 0.08 0.51** −0.54*** 0.60*** −0.03 海拔 0.48** 0.44** 0.37* 0.37* 0.54*** −0.26 0.27 0.44** 坡度 0.08 0.29 0.07 0.11 0.18 −0.15 0.01 0.30 说明:表格中数值为相关系数;*. P<0.05;**. P<0.01;***. P<0.001。
下载: 导出CSV
-
[1] 牛保亮, 陈志成, 李铭杰, 等. 长期干旱降低暖温带天然林下草本层生物多样性[J]. 林业科学研究, 2025, 38(5): 73−81. NIU Baoliang, CHEN Zhicheng, LI Mingjie, et al. Long-term drought reduced the biodiversity of understory herb layer in warm temperate natural forests[J]. Forest Research, 2025, 38(5): 73−81. DOI: 10.12403/j.1001-1498.20250020. [2] CHEN Xinli, REICH P B, CHEN Xin, et al. Environmental change shapes understory plant diversity and dominance in boreal forests[J]. Nature Communications, 2025, 16: 10579. DOI: 10.1038/s41467-025-65633-y. [3] WANG Ying, GUNINA A, REICH P B, et al. Nutrient cycles in transition: C∶N∶P stoichiometry by forest conversion to plantations[J]. Forest Ecology and Management, 2025, 593: 122874. DOI: 10.1016/j.foreco.2025.122874. [4] 王晨阳, 毕华兴, 王武, 等. 黄土高原不同林分密度油松人工林林下灌木层和草本层组成及多样性差异特征[J]. 浙江农林大学学报, 2026-09-26. https://link.cnki.net/urlid/33.1370.S.20260929.0917.002. WANG Chenyang, BI Huaxing, WANG Wu, et al. Differences in composition and diversity of understory shrub and herb layers in Pinus tabuliformis plantations with different stand densities on the Loess Plateau[J]. Journal of Zhejiang A&F University, 2026-09-26. https://link.cnki.net/urlid/33.1370.S.20260929.0917.002. [5] 杜雨霜, 吴刘萍, 陈杰, 等. 崩岗生态修复不同人工林林下入侵植物和本土植物对群落稳定性的影响[J]. 生态学报, 2024, 44(4): 1588−1600. DU Yushuang, WU Liuping, CHEN Jie, et al. Effects of understory invasive plants and native plants on community stability in Benggang ecological restoration of different artificial forests[J]. Acta Ecologica Sinica, 2024, 44(4): 1588−1600. DOI: 10.20103/j.stxb.202304010641. [6] LE BAGOUSSE-PINGUET Y, SOLIVERES S, GROSS N, et al. Phylogenetic, functional, and taxonomic richness have both positive and negative effects on ecosystem multifunctionality[J]. Proceedings of the National Academy of Sciences of the United States of America, 2019, 116(17): 8419−8424. DOI: 10.1073/pnas.1815727116. [7] 黄小荣. 广西马尾松林植物功能多样性与生产力的关系[J]. 生物多样性, 2018, 26(7): 690−700. HUANG Xiaorong. Relationship between plant functional diversity and productivity of Pinus massoniana plantations in Guangxi[J]. Biodiversity Science, 2018, 26(7): 690−700. DOI: 10.17520/biods.2018092. [8] BONGERS F J, SCHMID B, BRUELHEIDE H, et al. Functional diversity effects on productivity increase with age in a forest biodiversity experiment[J]. Nature Ecology & Evolution, 2021, 5(12): 1594−1603. DOI: 10.1038/s41559-021-01564-3. [9] 王宇宁, 冯天骄, 孙龙, 等. 晋西黄土区典型人工林与天然林林下植被物种多样性差异及其影响因素[J]. 北京林业大学学报, 2025, 47(4): 103−116. WANG Yuning, FENG Tianjiao, SUN Long, et al. Differences and influencing factors of understory vegetation species diversity between typical plantations and natural forests in the loess area of western Shanxi Province, Northern China[J]. Journal of Beijing Forestry University, 2025, 47(4): 103−116. DOI: 10.12171/j.1000−1522.20240228. [10] OXBROUGH A, FILLOY J, ODDI J A, et al. Understorey forest management as a potential tool to promote taxonomic and functional diversity in Eucalyptus plantations[J]. Ecosystems, 2025, 28(4): 37. DOI: 10.1007/s10021-025-00978-5. [11] 石慧, 王孝安, 郭华. 秦岭华北落叶松人工林群落结构及物种多样性[J]. 安徽农学通报, 2008, 14(15): 159−162, 204. SHI Hui, WANG Xiaoan, GUO Hua. Community structure and species diversity of Larix principis-rupprechtii plantation in Qinling Mountains[J]. Anhui Agricultural Science Bulletin, 2008, 14(15): 159−162, 204. DOI: 10.16377/j.cnki.issn1007-7731.2008.15.086. [12] 柴宗政, 王得祥, 郝亚中, 等. 秦岭中段华北落叶松人工林演替动态[J]. 林业科学, 2014, 50(2): 14−21. CHAI Zongzheng, WANG Dexiang, HAO Yazhong, et al. Succession dynamics of Larix principis-rupprechtii plantation in intermediate section of Qinling Mountains[J]. Scientia Silvae Sinicae, 2014, 50(2): 14−21. DOI: 10.11707/j.1001-7488.20140203. [13] 李敏敏, 魏天兴, 李信良, 等. 黄土区蔡家川流域刺槐人工林林下物种多样性[J]. 浙江农林大学学报, 2018, 35(2): 227−234. LI Minmin, WEI Tianxing, LI Xinliang, et al. Species diversity in the understory of a Robinia pseudoacacia plantation in the Caijiachuan Watershed of the Loess Plateau[J]. Journal of Zhejiang A&F University, 2018, 35(2): 227−234. DOI: 10.11833/j.issn.2095-0756.2018.02.005. [14] BUNESS V, SUNDQVIST M K, TUHIN ALI S, et al. Resource quantity and heterogeneity drive successional plant diversity in managed and unmanaged boreal forests[J]. Ecography, 2025, 2025(7): e07676. DOI: 10.1111/ecog.07676. [15] 付立华, 张岩, 张菲, 等. 塞罕坝地区森林群落演替规律初探[J]. 安徽农学通报, 2022, 28(2): 65−67. FU Lihua, ZHANG Yan, ZHANG Fei, et al. Preliminary study on the succession law of forest community in Saihanba Area[J]. Anhui Agricultural Science Bulletin, 2022, 28(2): 65−67. DOI: 10.16377/j.cnki.issn1007-7731.2022.02.046. [16] XU Jie, XIAO Yu, XIE Gaodi, et al. Assessment of the benefit diffusion of windbreak and sand fixation service in National Key Ecological Function Areas in China[J]. Aeolian Research, 2021, 52: 100728. DOI: 10.1016/j.aeolia.2021.100728. [17] 姚丹阳. 塞罕坝华北落叶松人工纯林和混交林林下植被多样性研究[J]. 防护林科技, 2018(12): 5−8. YAO Danyang. Vegetation diversity of Larix principis-rupprechtii plantation in Saihanba Region[J]. Protection Forest Science and Technology, 2018(12): 5−8. DOI: 10.13601/j.issn.1005-5215.2018.12.002. [18] 尹海龙, 张志伟, 宋伟, 等. 塞罕坝北曼甸林场森林生态功能等级评价[J]. 北京林业大学学报, 2023, 45(1): 89−98. YIN Hailong, ZHANG Zhiwei, SONG Wei, et al. Grade evaluation of forest ecological function for Beimandian Forest Farm of Saihanba, Hebei Province of Northern China[J]. Journal of Beijing Forestry University, 2023, 45(1): 89−98. DOI: 10.12171/j.1000-1522.20210373. [19] 葛兆轩, 苑美艳, 单博文, 等. 塞罕坝华北落叶松人工林不同经营模式效果评价[J]. 林业科学研究, 2020, 33(5): 38−47. GE Zhaoxuan, YUAN Meiyan, SHAN Bowen, et al. Evaluation of management modes on Larix principis-rupprechtii plantations in Saihanba of Hebei Province, China[J]. Forest Research, 2020, 33(5): 38−47. DOI: 10.13275/j.cnki.lykxyj.2020.05.005. [20] HUANG Kaichuan, ZHAO Wen, LI Junning, et al. Afforestation-induced shifts in soil bacterial diversity and community structure in the Saihanba Region[J]. Microorganisms, 2024, 12(3): 479. DOI: 10.3390/microorganisms12030479. [21] 田地, 迟小龙, 石亮, 等. 塞罕坝地区优势造林树种叶片化学计量特征及其环境驱动[J]. 植物生态学报, 2026, 50(2): 362−373. TIAN Di, CHI Xiaolong, SHI Liang, et al. Stoichiometric characteristics of dominant afforestation tree species and their environmental drivers in Saihanba Region[J]. Chinese Journal of Plant Ecology, 2026, 50(2): 362−373. DOI: 10.17521/cjpe.2025.0161. [22] 方精云, 王襄平, 沈泽昊, 等. 植物群落清查的主要内容、方法和技术规范[J]. 生物多样性, 2009, 17(6): 533−548. FANG Jingyun, WANG Xiangping, SHEN Zehao, et al. Methods and protocols for plant community inventory[J]. Biodiversity Science, 2009, 17(6): 533−548. DOI: 10.3724/SP.J.1003.2009.09253. [23] HU Yukun, PAN Xu, LIU Xuyan, et al. Above- and belowground plant functional composition show similar changes during temperate forest swamp succession[J]. Frontiers in Plant Science, 2021, 12: 658883. DOI: 10.3389/fpls.2021.658883. [24] DIAS R A, BASTAZINI V A G, GIANUCA A T, et al. The spatial scaling of multiple dimensions of functional diversity in habitat islands[J]. Functional Ecology, 2025, 39(11): 3164−3180. DOI: 10.1111/1365-2435.70158. [25] LIU Libin, GUAN Xiaoyin, WANG Yunquan, et al. Intermediate anthropogenic disturbances boost taxonomic and phylogenetic diversities but reduce functional diversity in subtropical forests of Eastern China[J]. Plants, 2025, 14(16): 2529. DOI: 10.3390/plants14162529. [26] 潘红林, 江怡航, 刘娜, 等. 不同林龄及区域杉木人工林林下植被多样性差异[J]. 林业科学研究, 2025, 38(6): 89−99. PAN Honglin, JIANG Yihang, LIU Na, et al. Understory vegetation diversity in Chinese fir plantations across stand ages and regions[J]. Forest Research, 2025, 38(6): 89−99. DOI: 10.12403/j.1001-1498.20250024. [27] ZHANG Dianye, PENG Yunfeng, LI Fei, et al. Trait identity and functional diversity co-drive response of ecosystem productivity to nitrogen enrichment[J]. Journal of Ecology, 2019, 107(5): 2402−2414. DOI: 10.1111/1365-2745.13184. [28] LAI Jiangshan, ZOU Yi, ZHANG Shuang, et al. Glmm. hp: an R package for computing individual effect of predictors in generalized linear mixed models[J]. Journal of Plant Ecology, 2022, 15(6): 1302−1307. DOI: 10.1093/jpe/rtac096. [29] 康义, 辛学兵, 裴顺祥, 等. 华北落叶松人工林林下物种多样性特征研究[J]. 西北林学院学报, 2025, 40(1): 23−31, 82. KANG Yi, XIN Xuebing, PEI Shunxiang, et al. Undergrowth species diversity characteristics of Larix principis-rupprechtii plantation[J]. Journal of Northwest Forestry University, 2025, 40(1): 23−31, 82. DOI: 10.3969/j.issn.1001-7461.2025.01.03. [30] 许驭丹, 董世魁, 李帅, 等. 植物群落构建的生态过滤机制研究进展[J]. 生态学报, 2019, 39(7): 2267−2281. XU Yudan, DONG Shikui, LI Shuai, et al. Research progress on ecological filtering mechanisms for plant community assembly[J]. Acta Ecologica Sinica, 2019, 39(7): 2267−2281. DOI: 10.5846/stxb201804260946. [31] SAUGIER B. Plant strategies, vegetation processes, and ecosystem properties[J]. Plant Science, 2001, 161(4): 813. DOI: 10.1016/s0168-9452(01)00469-1. [32] CACCIANIGA M, LUZZARO A, PIERCE S, et al. The functional basis of a primary succession resolved by CSR classification[J]. Oikos, 2006, 112(1): 10−20. DOI: 10.1111/j.0030-1299.2006.14107.x. [33] 戴楠, 王寅, 王梓静, 等. 植被恢复年限对塞罕坝华北落叶松人工林土壤碳氮磷储量的影响[J]. 北京林业大学学报, 2025, 47(5): 92−99. DAI Nan, WANG Yin, WANG Zijing, et al. Effects of vegetation recovery years on soil carbon, nitrogen and phosphorus stocks of Larix gmelinii var. principis-rupprechtii plantations in Saihanba, Hebei Province of Northern China[J]. Journal of Beijing Forestry University, 2025, 47(5): 92−99. DOI: 10.12171/j.1000−1522.20240415. [34] 于景金, 谷建才, 李校, 等. 塞罕坝落叶松人工林下植物多样性研究[J]. 林业资源管理, 2008(5): 90−94. YU Jingjin, GU Jiancai, LI Xiao, et al. Study on plant diversity of the larch plantation in Saihanba[J]. Forest Resources Management, 2008(5): 90−94. DOI: 10.13466/j.cnki.lyzygl.2008.05.013. [35] 黎露, 王永琪, 马姜明, 等. 南亚热带马尾松人工林近自然恢复过程中林下木本植物生态位动态[J]. 广西科学, 2021, 28(5): 499−510. LI Lu, WANG Yongqi, MA Jiangming, et al. Niche dynamics of understory woody plants during the near- natural restoration of Pinus massoniana plantations in southern subtropics[J]. Guangxi Sciences, 2021, 28(5): 499−510. DOI: 10.13656/j.cnki.gxkx.20211203.001. [36] 罗桂生, 张殿松, 黄拯, 等. 大岗山森林群落物种多样性和功能多样性的海拔格局特征[J/OL]. 中南林业科技大学学报, 2026-09-16. https://doi.org/10.14067/j.cnki.1673-923x.202510037. LUO Guisheng, ZHANG Diansong, HUANG Zheng, et al. Altitudinal pattern characteristics of species diversity and functional diversity in forest communities of Dagangshan[J/OL]. Journal of Central South University of Forestry and Technology, 2026-09-16. https://doi.org/10.14067/j.cnki.1673-923x.202510037. [37] ROSADO B H P, DE MATTOS E A. On the relative importance of CSR ecological strategies and integrative traits to explain species dominance at local scales[J]. Functional Ecology, 2017, 31(10): 1969−1974. DOI: 10.1111/1365-2435.12894. [38] ZHOU Tiancai, HOU Ge, SUN Jian, et al. Degradation shifts plant communities from S- to R-strategy in an alpine meadow, Tibetan Plateau[J]. Science of the Total Environment, 2021, 800: 149572. DOI: 10.1016/j.scitotenv.2021.149572. [39] 马文芳. 黄土丘陵区植被恢复对土壤碳、氮储量及团聚体分布的影响[D]. 杨凌: 西北农林科技大学, 2018. MA Wenfang. Effects of Vegetation Restoration on Distribution of Soil Carbon, Nitrogen, and Dggregates in the Loess Hilly Region[D]. Yangling: Northwest A&F University, 2018. DOI:10.27409/d.cnki.gxbnu.2018.000373. [40] 张泽凡, 张学珍. 黄土高原植被恢复对土壤物理参数的影响——基于已发表数据的荟萃分析[J]. 地理科学进展, 2021, 40(6): 1012−1025. ZHANG Zefan, ZHANG Xuezhen. Effects of vegetation restoration on soil physical parameters on the Loess Plateau: a meta-analysis based on published data[J]. Progress in Geography, 2021, 40(6): 1012−1025. DOI: 10.18306/dlkxjz.2021.06.011. [41] 拓行行, 李玉华, 俞瀚林, 等. 宁南山区华北落叶松林下草本层群落特征及其影响因素[J]. 生态学杂志, 2023, 42(10): 2449−2458. TUO Hanghang, LI Yuhua, YU Hanlin, et al. Community characteristics and influencing factors of herbaceous layer under Larix gmelinii var. principis-rupprechtii forests in a south mountainous area of Ningxia[J]. Chinese Journal of Ecology, 2023, 42(10): 2449−2458. DOI: 10.13292/j.1000-4890.202310.013. [42] 王梓静, 冯建, 李天雪, 等. 不同林龄华北落叶松人工林土壤水源涵养特征[J]. 河北师范大学学报(自然科学版), 2026, 50(2): 176−185. WANG Zijing, FENG Jian, LI Tianxue, et al. Soil water conservation characteristics across a chronosequence of Larix gmelinii var. principis-rupprechtii plantations[J]. Journal of Hebei Normal University (Natural Science), 2026, 50(2): 176−185. DOI: 10.13763/j.cnki.jhebnu.nse.202604004. [43] 刘浩栋, 王赫, 荣星星, 等. 尖峰岭陆均松群落功能性状与植物多样性关系的环境驱动机制[J]. 生态学报, 2026, 46(10): 5384−5395. LIU Haodong, WANG He, RONG Xingxing, et al. Environmental filtering drives functional trait variation and mediates plant diversity patterns in Dacrydium pectinatum de Laubenfels communities of Jianfengling, Hainan Island, China[J]. Acta Ecologica Sinica, 2026, 46(10): 5384−5395. DOI: 10.20103/j.stxb.202503080506. -

-
链接本文:
https://zlxb.zafu.edu.cn/article/doi/10.11833/j.issn.2095-0756.20260368
 点击查看大图
计量
- 文章访问数: 11
- HTML全文浏览量: 1
- PDF下载量: 0
- 被引次数: 0
