留言板

尊敬的读者、作者、审稿人, 关于本刊的投稿、审稿、编辑和出版的任何问题, 您可以本页添加留言。我们将尽快给您答复。谢谢您的支持!

姓名
邮箱
手机号码
标题
留言内容
验证码

楸树MYB基因家族的全基因组鉴定及盐胁迫关键基因成员筛选

余硕 ,  付鹏跃 ,  包平安 ,  曲冠证 ,  孙敬爽 ,  胡瑞阳 ,  王军辉 ,  贠慧玲

余硕, 付鹏跃, 包平安, 等. 楸树MYB基因家族的全基因组鉴定及盐胁迫关键基因成员筛选[J]. 浙江农林大学学报, 2026, 43(5): 925−934 doi:  10.11833/j.issn.2095-0756.20260188
引用本文: 余硕, 付鹏跃, 包平安, 等. 楸树MYB基因家族的全基因组鉴定及盐胁迫关键基因成员筛选[J]. 浙江农林大学学报, 2026, 43(5): 925−934 doi:  10.11833/j.issn.2095-0756.20260188
YU Shuo, FU Pengyue, BAO Ping’an, et al. Genome-wide identification of MYB gene family and screening of key members under salt stress in Catalpa bungei[J]. Journal of Zhejiang A&F University, 2026, 43(5): 925−934 doi:  10.11833/j.issn.2095-0756.20260188
Citation: YU Shuo, FU Pengyue, BAO Ping’an, et al. Genome-wide identification of MYB gene family and screening of key members under salt stress in Catalpa bungei[J]. Journal of Zhejiang A&F University, 2026, 43(5): 925−934 doi:  10.11833/j.issn.2095-0756.20260188

本文已在中国知网网络首发,可在知网搜索、下载并阅读全文。

楸树MYB基因家族的全基因组鉴定及盐胁迫关键基因成员筛选

DOI: 10.11833/j.issn.2095-0756.20260188
基金项目: 中国林业科学研究院中央级公益性科研院所基本科研业务费专项资金(CAFYBB2020ZB004-2)
详细信息
    作者简介: 余硕(ORCID: 0009-0002-0188-3004),从事楸树遗传转化研究。E-mail: y2875438113@163.com
    通信作者: 孙敬爽(ORCID: 0000-0002-2384-7453),副研究员,博士,从事林木遗传育种研究。E-mail: sjshuang1129@163.com
  • 中图分类号: S722.3

Genome-wide identification of MYB gene family and screening of key members under salt stress in Catalpa bungei

  • 摘要:   目的  盐胁迫是影响林木正常生长发育的关键非生物胁迫因子。楸树Catalpa bungei作为中国特有的珍贵用材树种,其耐盐性分子机制研究尚属薄弱环节,筛选楸树耐盐基因可为解析其耐盐机制及耐盐良种选育提供理论依据。  方法  以楸树良种‘9-1’为材料,在0.1 mol·L−1 NaCl胁迫下,设置0、6、12、24、48、72、96 h共7个时间梯度,取其叶片进行全基因组鉴定、转录组测序和生物信息学分析。  结果  在全基因组水平共鉴定出107个楸树MYB家族成员(命名为CbuMYB)。基因结构分析显示:CbuMYB基因家族包含10个Motif和8个保守基序。系统发育分析将其划分为12个亚家族。盐胁迫时间序列表达谱显示:CbuMYB家族成员响应模式呈差异化。CbuMYB52、CbuMYB56和CbuMYB93于胁迫早期(6~12 h)与0 h相比显著下调(P<0.05);CbuMYB9、CbuMYB19、CbuMYB23、CbuMYB95和CbuMYB96则在胁迫中后期(24~96 h)与0 h相比显著上调(P<0.05),其中CbuMYB19在72 h出现单一诱导峰。  结论  CbuMYB家族成员之间具有较高的保守性,其在盐胁迫下的时序表达特征揭示了该家族在楸树盐胁迫应答中的复杂调控模式。图5参46
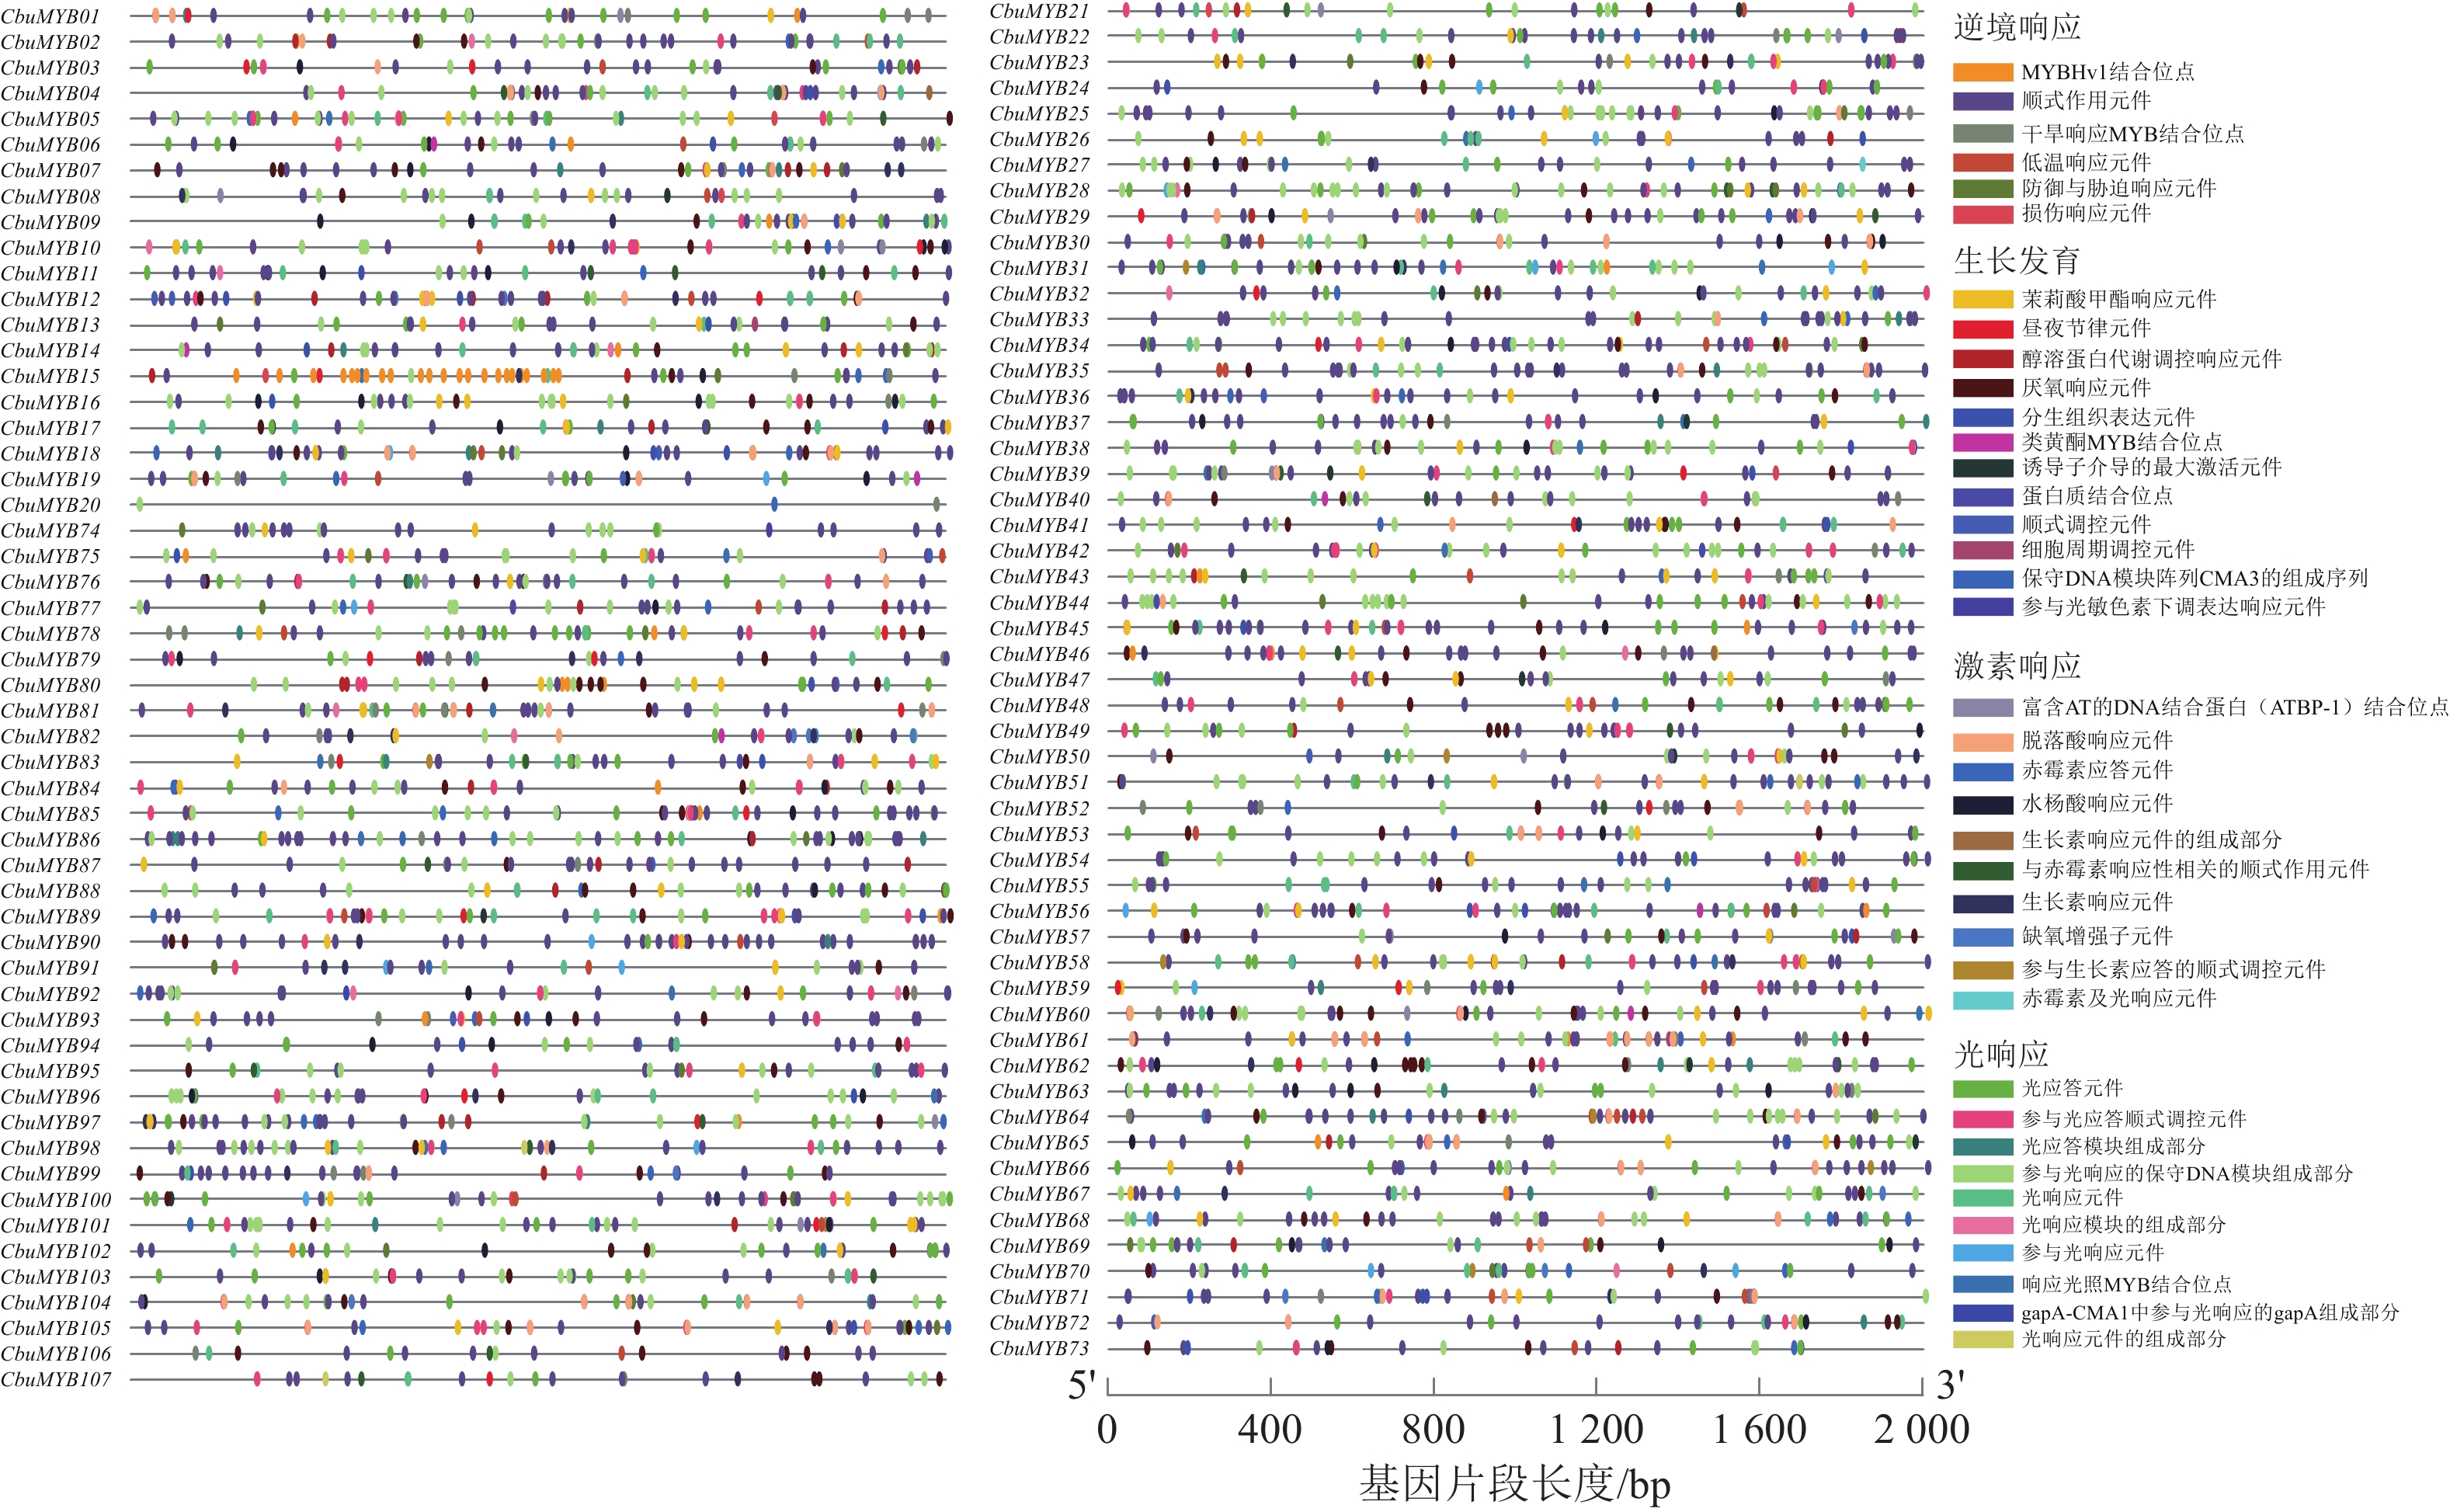
  • 图  1  CbuMYB基因家族成员顺式作用元件预测分析

    Figure  1  Prediction of cis-acting elements in the promoter regions of CbuMYB gene family members

    图  2  楸树良种‘9-1’盐胁迫不同时期的表型观测

    Figure  2  Phenotypic observation of C. bungei superior variety ‘9-1’ under salt stress at different time periods

    图  3  盐胁迫下楸树良种‘9-1’叶片活性氧积累的DAB染色检测

    Figure  3  DAB staining detection of reactive oxygen species accumulation in leaves of C. bungei superior variety ‘9-1’ under salt stress

    图  4  盐胁迫下CbuMYB基因家族的表达量热图分析

    Figure  4  Heat map analysis of the expression levels of CbuMYB gene family under salt stress

    图  5  CbuMYB基因家族成员的RT-qPCR验证

    Figure  5  Experimental verification of CbuMYB gene family members by RT-qPCR

  • [1] 刘佳铭, 王楠, 马志梅, 等. 蚯蚓-秸秆联合修复设施盐渍化土壤的效果及其作用机制[J]. 浙江农业学报, 2026, 38(2): 327−338.

    LIU Jiaming, WANG Nan, MA Zhimei, et al. Effect and mechanisms of remediation on salinized greenhouse soil by earthworm-straw[J]. Acta Agriculturae Zhejiangensis, 2026, 38(2): 327−338. DOI: 10.3969/j.issn.1004-1524.20250118.
    [2] 刘小京, 郭凯, 封晓辉, 等. 农业高效利用盐碱地资源探讨[J]. 中国生态农业学报(中英文), 2023, 31(3): 345−353.

    LIU Xiaojing, GUO Kai, FENG Xiaohui, et al. Discussion on the agricultural efficient utilization of saline-alkali land resources[J]. Chinese Journal of Eco-Agriculture, 2023, 31(3): 345−353. DOI: 10.12357/cjea.20220967.
    [3] GONG Zhizhong. Plant abiotic stress: new insights into the factors that activate and modulate plant responses[J]. Journal of Integrative Plant Biology, 2021, 63(3): 429−430. DOI: 10.1111/jipb.13079.
    [4] 王臣, 虞木奎, 王宗星, 等. 9个楸树无性系对盐胁迫的差异响应[J]. 南京林业大学学报(自然科学版), 2011, 35(2): 20−24.

    WANG Chen, YU Mukui, WANG Zongxing, et al. Difference of response to salt stress of nine clones of Catalpa bungei[J]. Journal of Nanjing Forestry University (Natural Sciences Edition), 2011, 35(2): 20−24. DOI: 10.3969/j.issn.1000-2006.2011.02.004.
    [5] 郜新强, 王小艳, 焦伟, 等. 金丝楸幼苗响应盐碱胁迫的生理和转录组分析[J]. 林业科学研究, 2023, 36(1): 166−178.

    GAO Xinqiang, WANG Xiaoyan, JIAO Wei, et al. Physiological and transcriptomic analysis of Catalpa bungei seedlings in response to saline-alkali stresses[J]. Forest Research, 2023, 36(1): 166−178. DOI: 10.12403/j.1001-1498.20220180.
    [6] GU Jiaojiao, LÜ Fenni, GAO Lulu, et al. A WRKY transcription factor CbWRKY27 negatively regulates salt tolerance in Catalpa bungei[J]. Forests, 2023, 14(3): 486. DOI: 10.3390/f14030486.
    [7] BAO Pingan, SUN Jingshuang, QU Guanzheng, et al. Identification and expression analysis of CCCH gene family and screening of key low temperature stress response gene CbuC3H24 and CbuC3H58 in Catalpa bungei[J]. BMC Genomics, 2024, 25(1): 779. DOI: 10.1186/s12864-024-10690-8.
    [8] 彭方仁, 郝明灼, 梁有旺, 等. 我国楸树种质资源现状及开发利用策略[J]. 林业科技开发, 2011, 25(6): 1−5.

    PENG Fangren, HAO Mingzhuo, LIANG Youwang, et al. Present situation and development and utilization strategy of Catalpa bungeana germplasm resources in China[J]. China Forestry Science and Technology, 2011, 25(6): 1−5. DOI: 10.3969/j.issn.1000-8101.2011.06.001.
    [9] 费鹏飞. 楸树组织培养体系的研究[D]. 合肥: 安徽农业大学, 2007.

    FEI Pengfei. Study on the System about Tissure Culture and Rapid Propagation of Catalpa bungei[D]. Hefei: Anhui Agricultural University, 2007.
    [10] 包平安, 刘帛鑫, 何雅馨, 等. 楸树NAC基因家族鉴定及低温胁迫响应关键基因筛选[J]. 植物研究, 2026, 46(3): 434−448.

    BAO Ping’an, LIU Boxin, HE Yaxin, et al. Identification of NAC gene family and screening of cold stress-responsive genes in Catalpa bungei[J]. Bulletin of Botanical Research, 2026, 46(3): 434−448. DOI: 10.7525/j.issn.1673-5102.2026.03.005.
    [11] 王茂鹏. 楸树响应盐胁迫转录因子的筛选及Cbuhdz34功能鉴定[D]. 哈尔滨: 东北林业大学, 2025.

    WANG Maopeng. Screening of Transcription Factors of Catalpa bungeana in Response to Salt Stress and Functional Identification of Cbuhdz34[D]. Harbin: Northeast Forestry University, 2025. DOI: 10.27009/d.cnki.gdblu.2025.000338.
    [12] 付茵茵, 宋彦勇, 韩友吉, 等. ‘鲁楸3号’楸树组培快繁体系的建立[J]. 山东林业科技, 2026, 56(1): 8−14, 21.

    FU Yinyin, SONG Yanyong, HAN Youji, et al. Establishment of a tissue culture and rapid propagation system for Catalpa bungei ‘Luqiu 3’[J]. Journal of Shandong Forestry Science and Technology, 2026, 56(1): 8−14, 21. DOI: 10.3969/j.issn.1002-2724.2026.01.002.
    [13] JIANG Chenkun, RAO Guangyuan. Insights into the diversification and evolution of R2R3-MYB transcription factors in plants[J]. Plant Physiology, 2020, 183(2): 637−655. DOI: 10.1104/pp.19.01082.
    [14] ZHANG Dawei, ZHOU Huapeng, ZHANG Yang, et al. Diverse roles of MYB transcription factors in plants[J]. Journal of Integrative Plant Biology, 2025, 67(3): 539−562. DOI: 10.1111/jipb.13869.
    [15] XIAO Shenghua, HU Qin, SHEN Jili, et al. GhMYB4 downregulates lignin biosynthesis and enhances cotton resistance to Verticillium dahliae[J]. Plant Cell Reports, 2021, 40(4): 735−751. DOI: 10.1007/s00299-021-02672-x.
    [16] BAI Qiuxian, DUAN Bingbing, MA Jianchao, et al. Coexpression of PalbHLH1 and PalMYB90 genes from Populus alba enhances pathogen resistance in poplar by increasing the flavonoid content[J]. Frontiers in Plant Science, 2020, 10: 1772. DOI: 10.3389/fpls.2019.01772.
    [17] GE Linhao, DOU Yining, LI Maomao, et al. SiMYB3 in foxtail millet (Setaria italica) confers tolerance to low-nitrogen stress by regulating root growth in transgenic plants[J]. International Journal of Molecular Sciences, 2019, 20(22): 5741. DOI: 10.3390/ijms20225741.
    [18] ZHOU Yuanyuan, ZHU Hong, HE Shaozhen, et al. A novel sweetpotato transcription factor gene IbMYB116 enhances drought tolerance in transgenic Arabidopsis[J]. Frontiers in Plant Science, 2019, 10: 1025. DOI: 10.3389/fpls.2019.01025.
    [19] WIESE A J, TORUTAEVA E, HONYS D. The transcription factors and pathways underpinning male reproductive development in Arabidopsis[J]. Frontiers in Plant Science, 2024, 15: 1354418. DOI: 10.3389/fpls.2024.1354418.
    [20] LI Jingbin, ZHAO Shang, YU Xue, et al. Role of Xanthoceras sorbifolium MYB44 in tolerance to combined drought and heat stress via modulation of stomatal closure and ROS homeostasis[J]. Plant Physiology and Biochemistry, 2021, 162: 410−420. DOI: 10.1016/j.plaphy.2021.03.007.
    [21] AN Jianping, LI Rui, QU Fengjia, et al. R2R3-MYB transcription factor MdMYB23 is involved in the cold tolerance and proanthocyanidin accumulation in apple[J]. The Plant Journal, 2018, 96(3): 562−577. DOI: 10.1111/tpj.14050.
    [22] 杨悦, 李昌宁, 孙晓露, 等. 大豆转录因子GmMYB069的克隆与耐盐功能鉴定[J]. 生物技术通报, 2026, 42(1): 1−12.

    YANG Yue, LI Changning, SUN Xiaolu, et al. Cloning and identification of salt tolerance function of soybean transcription factor GmMYB06[J]. Biotechnology Bulletin., 2026, 42(1): 1−12. DOI: 10.13560/j.cnki.biotech.bull.1985.2025-0348.
    [23] 李小欢, 陈相宇, 陶麒宇, 等. PtoMYB61对毛白杨木质素合成及耐盐性的影响[J]. 生物技术通报, 2025, 41(6): 284−296.

    LI Xiaohuan, CHEN Xiangyu, TAO Qiyu, et al. Effects of PtoMYB61 on lignin biosynthesis and salt tolerance in Populus tomentosa[J]. Biotechnology Bulletin, 2025, 41(6): 284−296. DOI: 10.13560/j.cnki.biotech.bull.1985.2025-0006.
    [24] 骆鹰, 谭智, 王帆, 等. 银杏GbR2R3-MYB1基因的克隆及非生物胁迫应答分析[J]. 生物技术通报, 2022, 38(10): 184−194.

    LUO Ying, TAN Zhi, WANG Fan, et al. Cloning and response analysis to abiotic stress of GbR2R3-MYB1 gene from Ginkgo biloba[J]. Biotechnology Bulletin, 2022, 38(10): 184−194. DOI: 10.13560/j.cnki.biotech.bull.1985.2021-1546.
    [25] CHEN Chengjie, WU Ya, LI Jiawei, et al. TBtools-Ⅱ: a “one for all, all for one” bioinformatics platform for biological big-data mining[J]. Molecular Plant, 2023, 16(11): 1733−1742. DOI: 10.1016/j.molp.2023.09.010.
    [26] KRANZ H D, DENEKAMP M, GRECO R, et al. Towards functional characterisation of the members of the R2R3-MYB gene family from Arabidopsis thaliana[J]. The Plant Journal, 1998, 16(2): 263−276. DOI: 10.1046/j.1365-313x.1998.00278.x.
    [27] YANG Xiaoyu, GUO Ting, LI Juan, et al. Genome-wide analysis of the MYB-related transcription factor family and associated responses to abiotic stressors in Populus[J]. International Journal of Biological Macromolecules, 2021, 191: 359−376. DOI: 10.1016/j.ijbiomac.2021.09.042.
    [28] 吴家胜, 赵彦宏, 汪旭升. 粳稻MYB蛋白家族的生物信息学分析[J]. 华南农业大学学报, 2009, 30(4): 43−47.

    WU Jiasheng, ZHAO Yanhong, WANG Xusheng. Bioinformatic analysis of MYB protein family in Oryza sativa L. ssp. japonica[J]. Journal of South China Agricultural University, 2009, 30(4): 43−47. DOI: 10.3969/j.issn.1001-411X.2009.04.010.
    [29] YANG Xiaoyu, LI Juan, GUO Ting, et al. Comprehensive analysis of the R2R3-MYB transcription factor gene family in Populus trichocarpa[J]. Industrial Crops and Products, 2021, 168: 113614. DOI: 10.1016/j.indcrop.2021.113614.
    [30] CHEN Xiang, MAO Yucheng, CHAI Weiguo, et al. Genome-wide identification and expression analysis of MYB gene family under nitrogen stress in Panax notoginseng[J]. Protoplasma, 2023, 260(1): 189−205. DOI: 10.1007/s00709-022-01770-1.
    [31] ZHANG Shikai, ZENG Dong, ZHANG Heng, et al. Genome-wide identification and functional analysis of R2R3-MYB genes in Acer pseudosieboldianum: insights into low temperature stress response and anthocyanin biosynthesis[J]. BMC Plant Biology, 2025, 25(1): 795. DOI: 10.1186/s12870-025-06782-6.
    [32] JEFFARES D C, PENKETT C J, BÄHLER J. Rapidly regulated genes are intron poor[J]. Trends in Genetics, 2008, 24(8): 375−378. DOI: 10.1016/j.tig.2008.05.006.
    [33] BLANCO E, CURCI P L, MANCONI A, et al. R2R3-MYBs in durum wheat: genome-wide identification, poaceae-specific clusters, expression, and regulatory dynamics under abiotic stresses[J]. Frontiers in Plant Science, 2022, 13: 896945. DOI: 10.3389/fpls.2022.896945.
    [34] PENG Xianjun, LIU Hui, WANG Dan, et al. Genome-wide identification of the Jatropha curcas MYB family and functional analysis of the abiotic stress responsive gene JcMYB2[J]. BMC Genomics, 2016, 17(1): 251. DOI: 10.1186/s12864-016-2576-7.
    [35] CHEN Yanhui, YANG Xiaoyuan, HE Kun, et al. The MYB transcription factor superfamily of Arabidopsis: expression analysis and phylogenetic comparison with the rice MYB family[J]. Plant Molecular Biology, 2006, 60(1): 107−124. DOI: 10.1007/s11103-005-2910-y.
    [36] WU Jiandong, JIANG Yingli, LIANG Yani, et al. Expression of the maize MYB transcription factor ZmMYB3R enhances drought and salt stress tolerance in transgenic plants[J]. Plant Physiology and Biochemistry, 2019, 137: 179−188. DOI: 10.1016/j.plaphy.2019.02.010.
    [37] ZHANG Jiashuo, WU Jinzhang, GUO Mingliang, et al. Genome-wide characterization and expression profiling of Eucalyptus grandis HD-Zip gene family in response to salt and temperature stress[J]. BMC Plant Biology, 2020, 20(1): 451. DOI: 10.1186/s12870-020-02677-w.
    [38] CHEN Zixuan, YE Chanjuan, ZENG Yuan, et al. Multiomics analysis revealed the temporally common and specific molecular changes in Arabidopsis thaliana (L.) under salt stress[J]. BMC Genomics, 2025, 26(1): 1123. DOI: 10.1186/s12864-025-12292-4.
    [39] LIU Jingui, HAN Xiao, YANG Tong, et al. Genome-wide transcriptional adaptation to salt stress in Populus[J]. BMC Plant Biology, 2019, 19(1): 367. DOI: 10.1186/s12870-019-1952-2.
    [40] MATSUI A, ISHIDA J, MOROSAWA T, et al. Arabidopsis transcriptome analysis under drought, cold, high-salinity and ABA treatment conditions using a tiling array[J]. Plant & Cell Physiology, 2008, 49(8): 1135−1149. DOI: 10.1093/pcp/pcn101.
    [41] JUNG C, SEO J S, HAN S W, et al. Overexpression of AtMYB44 enhances stomatal closure to confer abiotic stress tolerance in transgenic Arabidopsis[J]. Plant Physiology, 2008, 146(2): 623−635. DOI: 10.1104/pp.107.110981.
    [42] WANG Qiang, SHU Huiyu, DONG Guangyi, et al. The BpNF-YC9-BpbHLH80 module: a key regulator of salt stress in birch revealed via hierarchical gene regulatory networks[J]. Plant Physiology and Biochemistry, 2026, 231: 110951. DOI: 10.1016/j.plaphy.2025.110951.
    [43] 郑琳, 王凤敏, 凡婷婷, 等. 核桃JrGA3ox基因表达对生长及干旱胁迫的响应[J]. 浙江农林大学学报, 2025, 42(2): 261−272.

    ZHENG Lin, WANG Fengmin, FAN Tingting, et al. Response of JrGA3ox gene expression to growth and drought stress in Juglans regia[J]. Journal of Zhejiang A&F University, 2025, 42(2): 261−272. DOI: 10.11833/j.issn.2095-0756.20240327.
    [44] YU Huan, GUO Qi, JI Wei, et al. Transcriptome expression profiling reveals the molecular response to salt stress in Gossypium anomalum seedlings[J]. Plants, 2024, 13(2): 312. DOI: 10.3390/plants13020312.
    [45] DAI Xiaoyan, XU Yunyuan, MA Qibin, et al. Overexpression of an R1R2R3 MYB gene, OsMYB3R-2, increases tolerance to freezing, drought, and salt stress in transgenic Arabidopsis[J]. Plant Physiology, 2007, 143(4): 1739−1751. DOI: 10.1104/pp.106.094532.
    [46] CHEN S, POLLE A. Salinity tolerance of Populus[J]. Plant Biology, 2010, 12(2): 317−333. DOI: 10.1111/j.1438-8677.2009.00301.x.
  • [1] 丛蓉, 赵冰, 姜黎.  罗布麻属4个品种花香成分鉴定及转录组分析 . 浙江农林大学学报, doi: 10.11833/j.issn.2095-0756.20250610
    [2] 刘畅, 陆雨帆, 姜燕, 郭子雨, 项睿子, 王雨新, 向丽娟, 张玥, 张宁, 傅学浩, 孙明.  脱落酸调控芙蓉菊及其杂交后代耐盐性的生理特性及分子机制 . 浙江农林大学学报, 2025, 42(5): 1025-1036. doi: 10.11833/j.issn.2095-0756.20250469
    [3] 张雷, 陈辉, 张子洁, 尚旭岚, 杨万霞, 方升佐.  青钱柳GATA基因家族鉴定及盐胁迫下表达分析 . 浙江农林大学学报, 2025, 42(6): 1142-1153. doi: 10.11833/j.issn.2095-0756.20250263
    [4] 刘一灵, 刘奇源, 董帅, 张民, 罗燕, 李振华.  基于转录组和蛋白组数据联合分析浅光休眠烟草种子暗萌发的分子网络 . 浙江农林大学学报, 2023, 40(2): 237-243. doi: 10.11833/j.issn.2095-0756.20220515
    [5] 王佳琦, 王欣, 邓小梅, 吴蔼民.  基于代谢与转录水平的花榈木萜类合成候选基因分析 . 浙江农林大学学报, 2023, 40(5): 970-981. doi: 10.11833/j.issn.2095-0756.20220737
    [6] 黄清晨, 赖建新, 黄李超, 卢孟柱.  过氧化物酶基因PagPRX19对银腺杨‘84K’耐盐性的影响 . 浙江农林大学学报, 2022, 39(6): 1163-1172. doi: 10.11833/j.issn.2095-0756.20220387
    [7] 王改萍, 王晓聪, 章雷, 张晨, 刘彬.  楸树扦插过程中插穗内含物变化分析 . 浙江农林大学学报, 2021, 38(2): 296-303. doi: 10.11833/j.issn.2095-0756.20200313
    [8] 许世达, 耿兴敏, 王露露.  植物乙烯响应因子(ERF)的结构、功能及表达调控研究进展 . 浙江农林大学学报, 2021, 38(3): 624-633. doi: 10.11833/j.issn.2095-0756.20200346
    [9] 郝力慧, 董彬, 朱绍华, 马进.  牡丹响应高温胁迫的转录组分析及PsHSP基因表达 . 浙江农林大学学报, 2021, 38(4): 802-811. doi: 10.11833/j.issn.2095-0756.20200529
    [10] 刘政, 胡孙田, 沈晓飞, 朱培, 褚旭东, 李卓娅, 罗平.  外源褪黑素处理对月季幼苗盐胁迫的缓解效应 . 浙江农林大学学报, 2020, 37(5): 957-962. doi: 10.11833/j.issn.2095-0756.20190604
    [11] 许蔷薇, 楼雄珍, 杨彬, 林二培, 童再康.  云锦杜鹃转录组分析 . 浙江农林大学学报, 2019, 36(6): 1190-1198. doi: 10.11833/j.issn.2095-0756.2019.06.017
    [12] 尹跃, 安巍, 赵建华, 王亚军, 樊云芳, 曹有龙.  黑果枸杞转录组SSR信息分析及分子标记开发 . 浙江农林大学学报, 2019, 36(2): 422-428. doi: 10.11833/j.issn.2095-0756.2019.02.025
    [13] 王改萍, 徐涛, 樊莉丽, 彭方仁, 吕昕, 陈琳月.  楸树花粉壁蛋白质提取及特异性 . 浙江农林大学学报, 2016, 33(1): 65-70. doi: 10.11833/j.issn.2095-0756.2016.01.009
    [14] 孙张晗, 樊怀福, 杜长霞, 黄玲英.  盐胁迫对黄瓜幼苗叶片、韧皮部渗出液和根系抗氧化酶同工酶表达的影响 . 浙江农林大学学报, 2016, 33(4): 652-657. doi: 10.11833/j.issn.2095-0756.2016.04.014
    [15] 马进, 郑钢, 裴翠明, 张振亚.  南方型紫花苜蓿根系盐胁迫应答转录因子鉴定与分析 . 浙江农林大学学报, 2016, 33(2): 201-208. doi: 10.11833/j.issn.2095-0756.2016.02.003
    [16] 杨升, 张华新, 刘涛.  16个树种盐胁迫下的生长表现和生理特性 . 浙江农林大学学报, 2012, 29(5): 744-754. doi: 10.11833/j.issn.2095-0756.2012.05.018
    [17] 马进, 刘志高, 郑钢.  差异蛋白质组学及其在植物盐胁迫响应研究中的应用 . 浙江农林大学学报, 2011, 28(1): 139-143. doi: 10.11833/j.issn.2095-0756.2011.01.022
    [18] 谢福春, 陈才业, 张文婷, 魏娟, 李媛媛, 王华田.  土壤盐胁迫对海州常山形态与气体交换特性的影响 . 浙江农林大学学报, 2009, 26(2): 176-181.
    [19] 王改萍, 岑显超, 彭方仁, 杨红宁.  不同楸树品种的抗旱性鉴定 . 浙江农林大学学报, 2009, 26(6): 815-821.
    [20] 岑显超, 彭方仁, 陈隆升, 杨燕.  楸树品种间水分特征曲线主要参数比较与抗旱性评价 . 浙江农林大学学报, 2008, 25(6): 760-764.
  • 2026-0188-附件材料.pdf
  • 加载中
  • 链接本文:

    https://zlxb.zafu.edu.cn/article/doi/10.11833/j.issn.2095-0756.20260188

    https://zlxb.zafu.edu.cn/article/zjnldxxb/2026/5/925

图(5)
计量
  • 文章访问数:  18
  • HTML全文浏览量:  2
  • PDF下载量:  0
  • 被引次数: 0
出版历程
  • 收稿日期:  2026-03-09
  • 修回日期:  2026-08-01
  • 录用日期:  2026-08-22
  • 网络出版日期:  2026-09-29

楸树MYB基因家族的全基因组鉴定及盐胁迫关键基因成员筛选

doi: 10.11833/j.issn.2095-0756.20260188
    基金项目:  中国林业科学研究院中央级公益性科研院所基本科研业务费专项资金(CAFYBB2020ZB004-2)
    作者简介:

    余硕(ORCID: 0009-0002-0188-3004),从事楸树遗传转化研究。E-mail: y2875438113@163.com

    通信作者: 孙敬爽(ORCID: 0000-0002-2384-7453),副研究员,博士,从事林木遗传育种研究。E-mail: sjshuang1129@163.com
  • 中图分类号: S722.3

摘要:   目的  盐胁迫是影响林木正常生长发育的关键非生物胁迫因子。楸树Catalpa bungei作为中国特有的珍贵用材树种,其耐盐性分子机制研究尚属薄弱环节,筛选楸树耐盐基因可为解析其耐盐机制及耐盐良种选育提供理论依据。  方法  以楸树良种‘9-1’为材料,在0.1 mol·L−1 NaCl胁迫下,设置0、6、12、24、48、72、96 h共7个时间梯度,取其叶片进行全基因组鉴定、转录组测序和生物信息学分析。  结果  在全基因组水平共鉴定出107个楸树MYB家族成员(命名为CbuMYB)。基因结构分析显示:CbuMYB基因家族包含10个Motif和8个保守基序。系统发育分析将其划分为12个亚家族。盐胁迫时间序列表达谱显示:CbuMYB家族成员响应模式呈差异化。CbuMYB52、CbuMYB56和CbuMYB93于胁迫早期(6~12 h)与0 h相比显著下调(P<0.05);CbuMYB9、CbuMYB19、CbuMYB23、CbuMYB95和CbuMYB96则在胁迫中后期(24~96 h)与0 h相比显著上调(P<0.05),其中CbuMYB19在72 h出现单一诱导峰。  结论  CbuMYB家族成员之间具有较高的保守性,其在盐胁迫下的时序表达特征揭示了该家族在楸树盐胁迫应答中的复杂调控模式。图5参46

English Abstract

余硕, 付鹏跃, 包平安, 等. 楸树MYB基因家族的全基因组鉴定及盐胁迫关键基因成员筛选[J]. 浙江农林大学学报, 2026, 43(5): 925−934 doi:  10.11833/j.issn.2095-0756.20260188
引用本文: 余硕, 付鹏跃, 包平安, 等. 楸树MYB基因家族的全基因组鉴定及盐胁迫关键基因成员筛选[J]. 浙江农林大学学报, 2026, 43(5): 925−934 doi:  10.11833/j.issn.2095-0756.20260188
YU Shuo, FU Pengyue, BAO Ping’an, et al. Genome-wide identification of MYB gene family and screening of key members under salt stress in Catalpa bungei[J]. Journal of Zhejiang A&F University, 2026, 43(5): 925−934 doi:  10.11833/j.issn.2095-0756.20260188
Citation: YU Shuo, FU Pengyue, BAO Ping’an, et al. Genome-wide identification of MYB gene family and screening of key members under salt stress in Catalpa bungei[J]. Journal of Zhejiang A&F University, 2026, 43(5): 925−934 doi:  10.11833/j.issn.2095-0756.20260188
  • 土壤盐渍化作为制约植物生长的关键非生物胁迫因子,通过离子毒性、渗透胁迫与氧化损伤等多重机制,显著抑制种子萌发及林木生长发育[1]。而中国盐碱地分布广泛,东北、西北、华北及沿海地区均有大量存在,总面积已超过1亿hm2[2]。楸树Catalpa bungei作为中国特有的珍贵用材及园林绿化树种,关于其响应盐胁迫分子机制的研究相对匮乏。土壤高盐致使离子不平衡,过高钠离子通过根尖分生区进入植物细胞,限制植物对养分和水分的吸收,进而导致其生长发育缓慢[3]。有研究表明:楸树的耐盐机制涉及生理适应[4]和分子调控[5] 2个层面,过表达CbWRKY27的楸树植株较野生型耐盐性降低,表明CbWRKY27在楸树体内呈现负调控机制[6]。楸树具有重要的经济价值和生态价值[7−8],但其对盐胁迫敏感,加之耐盐楸树品种或良种缺乏,严重制约了该树种在盐渍化地区的推广应用[9−12]。因此,从生物信息学水平系统筛选楸树耐盐基因,为选育耐盐楸树新品种提供理论基础,对提升盐碱地利用效率、维护国家木材安全与生态屏障功能具有重要战略意义。

    MYB转录因子结构基序通过特异性识别并结合靶标基因启动子区段的特定顺式调控元件,实现对下游基因转录过程的调控[13−14]。MYB转录因子广泛参与植物生长发育、次生代谢以及生物与非生物胁迫响应过程[15−19],其中R2R3-MYB已被证实在干旱、低温、高盐等多种逆境信号通路中发挥关键调控作用。如XsMYB44基因沉默通过抑制抗氧化酶和脯氨酸积累,增加活性氧(ROS)水平,降低文冠果Xanthoceras sorbifolium耐旱及耐热性[20];MdMYB23过表达则通过激活MdANR启动子,促进原花青素生物合成及ROS清除,从而增强苹果Malus domestica和拟南芥Arabidopsis thaliana的抗寒性[21];过表达GmMYB069可通过增强抗氧化酶活性,抑制大豆Glycine max根部对Na+的吸收[22]。目前,木本植物中MYB转录因子参与耐盐调控的研究仍较为有限。已知毛白杨Populus tomentosa PtoMYB61通过调控次生壁发育增强耐盐性[23],银杏Ginkgo biloba GbR2R3-MYB1已被鉴定为盐胁迫响应的关键基因[24],而楸树MYB家族全基因组鉴定及盐胁迫响应模式尚不明确。鉴于此,本研究以楸树‘9-1’为材料,在0.1 mol·L−1 NaCl胁迫处理0~96 h后采集叶片,通过转录组联合分析筛选关键响应基因CbuMYB,并开展全基因组鉴定,解析MYB家族在盐胁迫相应下的表达模式,以期为楸树耐盐调控网络构建提供科学依据。

    • 供试材料为东北林业大学林科楼培育的15 d楸树良种‘9-1’苗木,基质配比为珍珠岩∶蛭石∶泥炭土=1∶1∶2(质量比)。培养条件为16 h光照/8 h黑暗,光强为200 μmol·m−2·s−1,隔2 d浇水1次。选取21株长势一致的幼苗,以200 mL 0.1 mol·L−1 NaCl首次浇透土壤,后续每2 d浇灌等量0.1 mol·L−1 NaCl维持盐浓度。分别于胁迫后0、6、12、24、48、72、96 h采集第2轮叶片,液氮速冻后于−80 ℃保存,用于活性氧测定及转录组测序,每个时间点设3个生物学重复(单株独立样本)。

    • 基于拟南芥数据库(TAIR)中125条R2R3-MYB蛋白序列,比对楸树全基因组,利用TBtools[25]鉴定CbuMYB家族成员,并根据染色体位置命名。使用MEGA11 (MUSCLE工具)进行多序列比对,利用MEME在线分析网站及美国国家生物技术信息中心(NCBI)数据库,分别对保守基序(Motif)和保守结构域进行鉴定,并通过TBtools进行基因结构可视化。基于最大似然法构建楸树与拟南芥MYB蛋白系统发育树,利用TBtools完成染色体定位及启动子上游2 kb序列提取。通过Plant CARE数据库预测顺式作用元件,并借助TBtools Heat Map插件对盐胁迫下CbuMYB家族每百万映射读数中每千碱基转录本的片段数(FPKM)进行表达量热图可视化。

    • 委托蓝景科信河北生物科技有限公司完成测序。使用试剂盒提取总RNA,经质量浓度为1%的琼脂糖凝胶电泳质检合格后,以1 μg总RNA建库,于Illumina Novaseq平台测序,原始数据以R包分析。盐胁迫各时间点叶片同时用于表型观测及二氨基联苯胺(DAB)染色,检测活性氧积累。基于转录组数据,结合差异表达WGCNA共表达网络筛选关键候选基因,对CbuMYB2、CbuMYB23、CbuMYB29等显著差异表达基因进行实时荧光定量PCR (RT-qPCR)验证。使用在线工具设计引物,以Actin和MADH为内参,采用TB Green Ex TaqTM Ⅱ酶进行20.0 μL体系扩增(含cDNA 2.0 μL、Premix 10.0 μL、DAB染料0.4 μL、引物0.8 μL及灭菌水6.0 μL)。相对表达量以2−ΔΔCt法计算,每个样本3次生物学重复,将FPKM值(FPKM)经log2(1+FPKM)转换均一化后,与RT-qPCR检测结果进行联合可视化分析。

    • 通过楸树基因保守基序分析发现:107个CbuMYB基因家族成员共鉴定出10个Motif基序,且每个成员至少含有一个保守基序,除CbuMYB25、CbuMYB89、CbuMYB106仅包含1个Motif 5基序外,其余104个CbuMYB成员都包含Motif 1基序,表明Motif 1在楸树CbuMYB基因家族中相对较为保守(附图1)。保守结构域分析表明:楸树CbuMYB基因家族包含8个保守结构域,其中105个基因家族成员包含1个保守结构域,95个成员仅包含PLN03212 superfamily和PLN03091 superfamily保守结构域。楸树CbuMYB基因结构分析发现:所有CbuMYB基因均含有编码序列(CDS),而家族内部基因结构发生明显变异,其中34个CbuMYB基因成员不含有非翻译区(UTR)区域,23个家族成员不含内含子区域。

    • 构建楸树与拟南芥MYB基因家族(AtMYB)系统进化树发现:CbuMYB基因家族成员分为12个亚族(附图2),其中第2亚族成员最多,为18个 (16.8%),第3亚族成员最少,为3个 (2.8%),其他亚家族成员4~13个不等。楸树与拟南芥同一亚族中的CbuMYB成员相似度较高(0.8),表明它们可能具有相似的生物学关系,行使相同的生物学功能。

    • 由图1表明:CbuMYB基因家族成员的顺式作用元件功能集中在逆境响应、生长发育、激素响应和光响应4个主要方面,其中105个楸树CbuMYB成员在逆境响应方面有调控基因表达元件,揭示MYB成员可能是楸树逆境胁迫过程中的关键调控基因。96个CbuMYB家族成员含有生长和发育元件,59个CbuMYB家族成员含有激素响应元件,85个CbuMYB家族成员含有参与光响应元件。
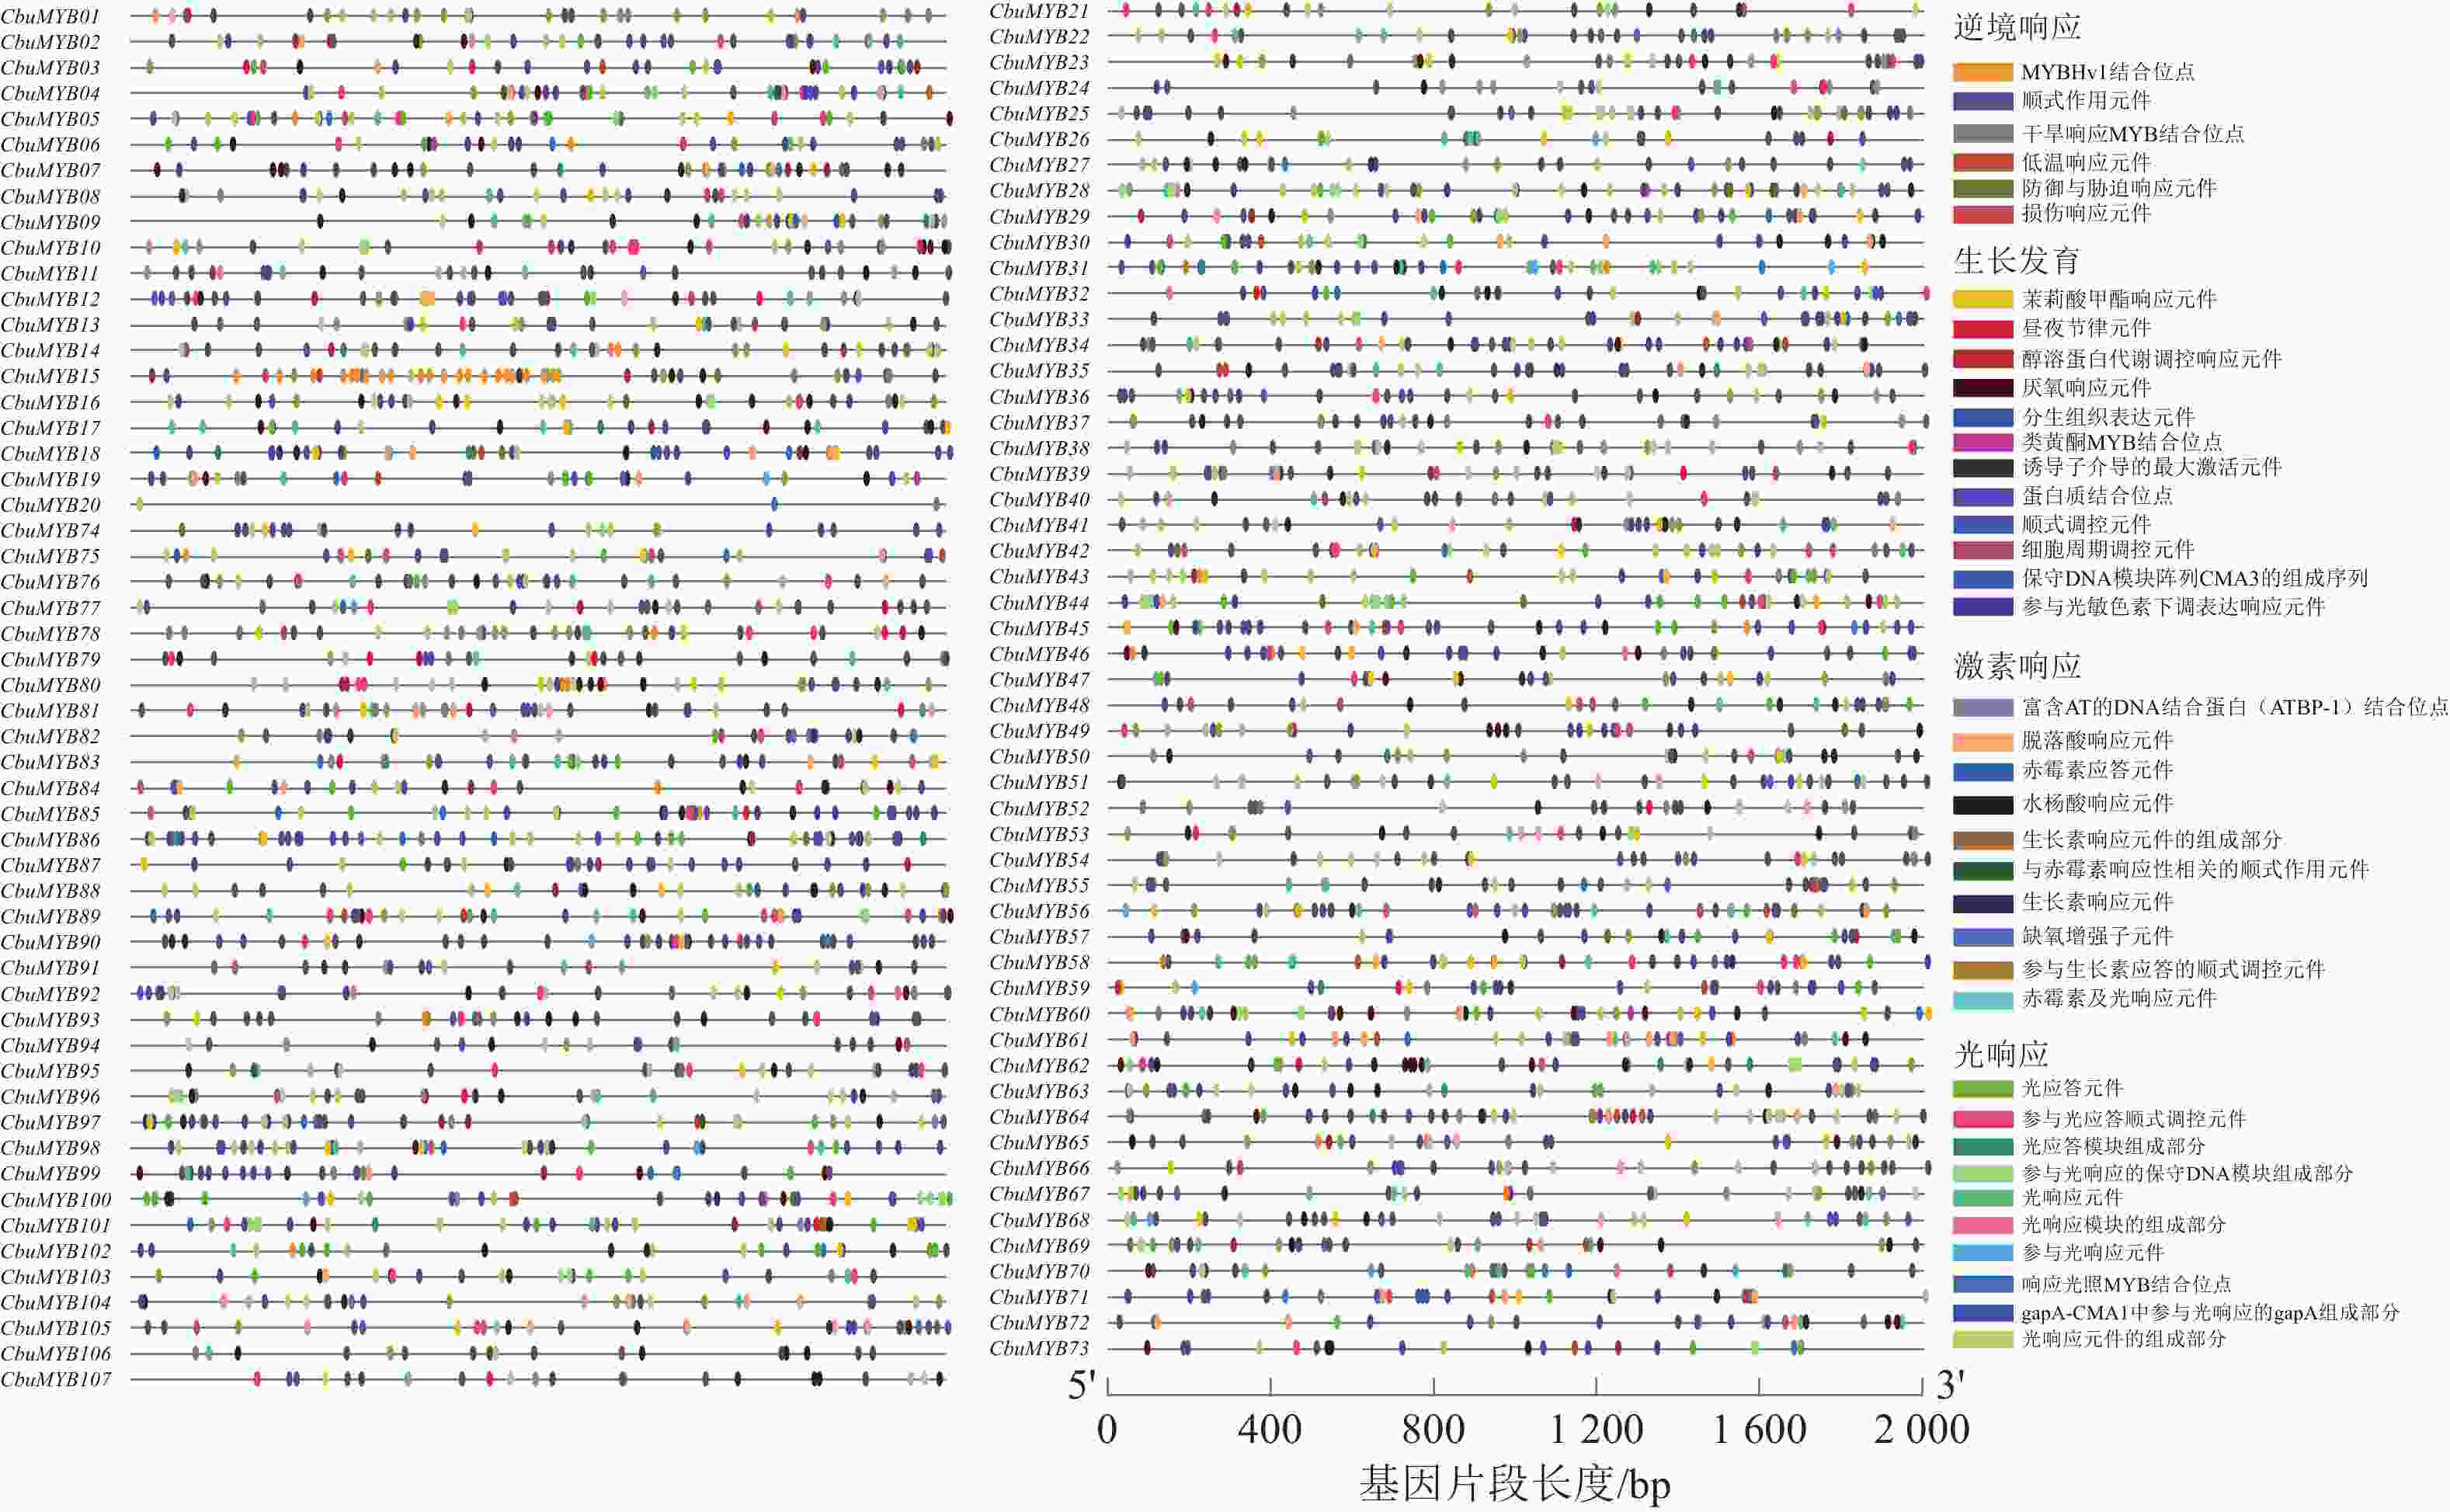
      图  1  CbuMYB基因家族成员顺式作用元件预测分析

      Figure 1.  Prediction of cis-acting elements in the promoter regions of CbuMYB gene family members

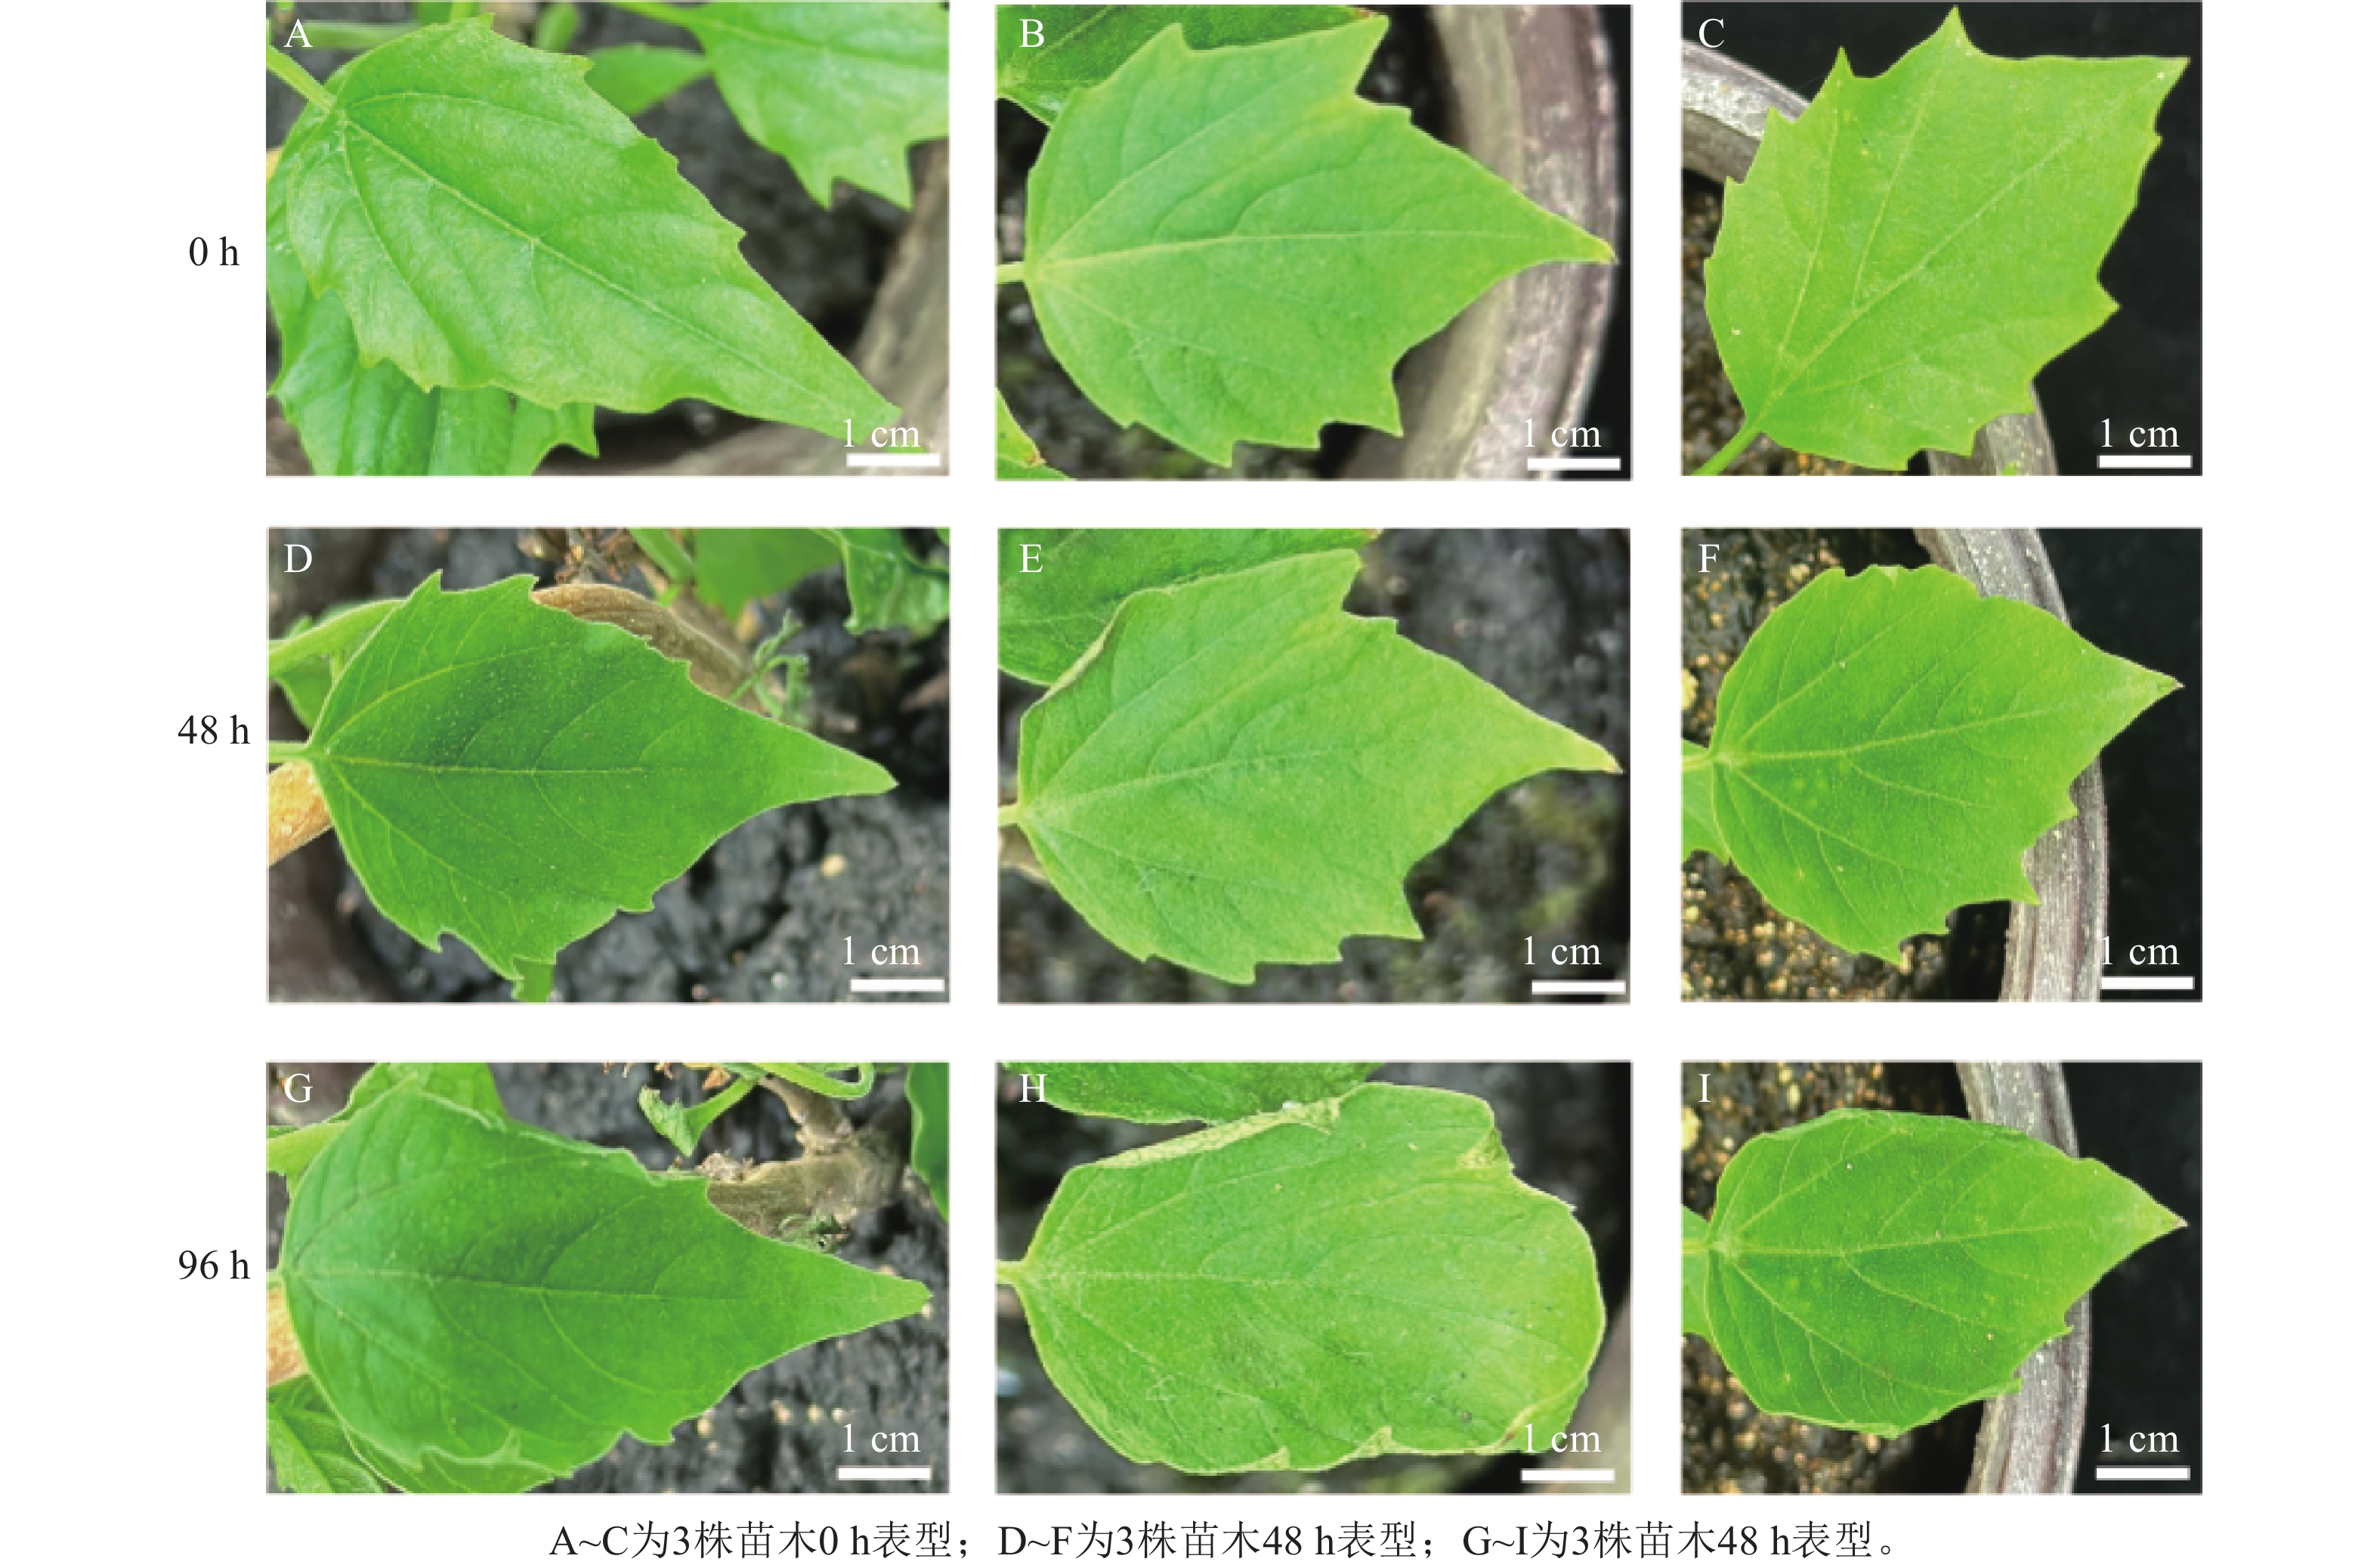
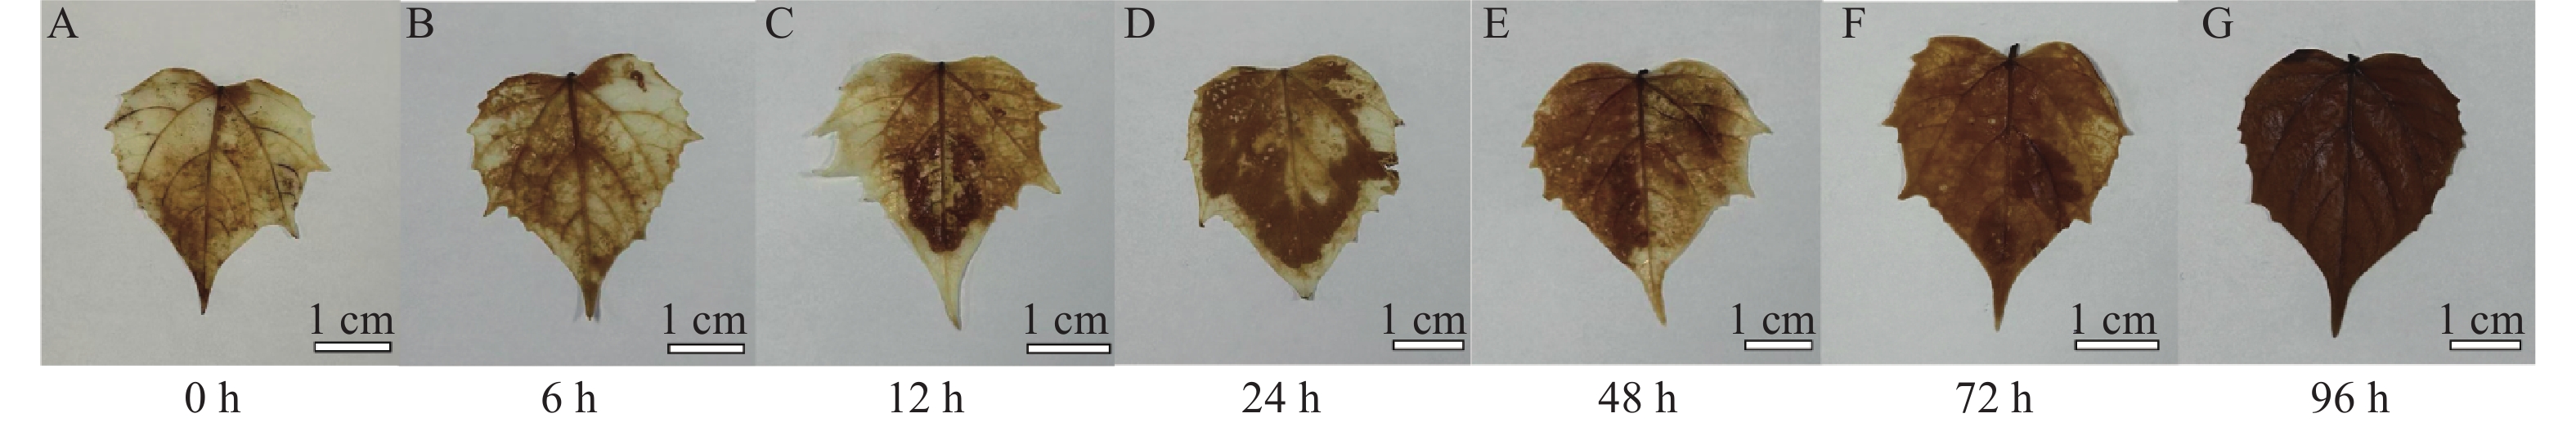
    • 对盐胁迫处理后不同时期楸树叶片的表型变化(图2)及DAB染色结果(图3)观测发现:与盐胁迫0 h相比,盐胁迫48 h后叶片开始萎蔫、边缘开始出现卷曲,96 h后叶片卷曲现象更加严重。
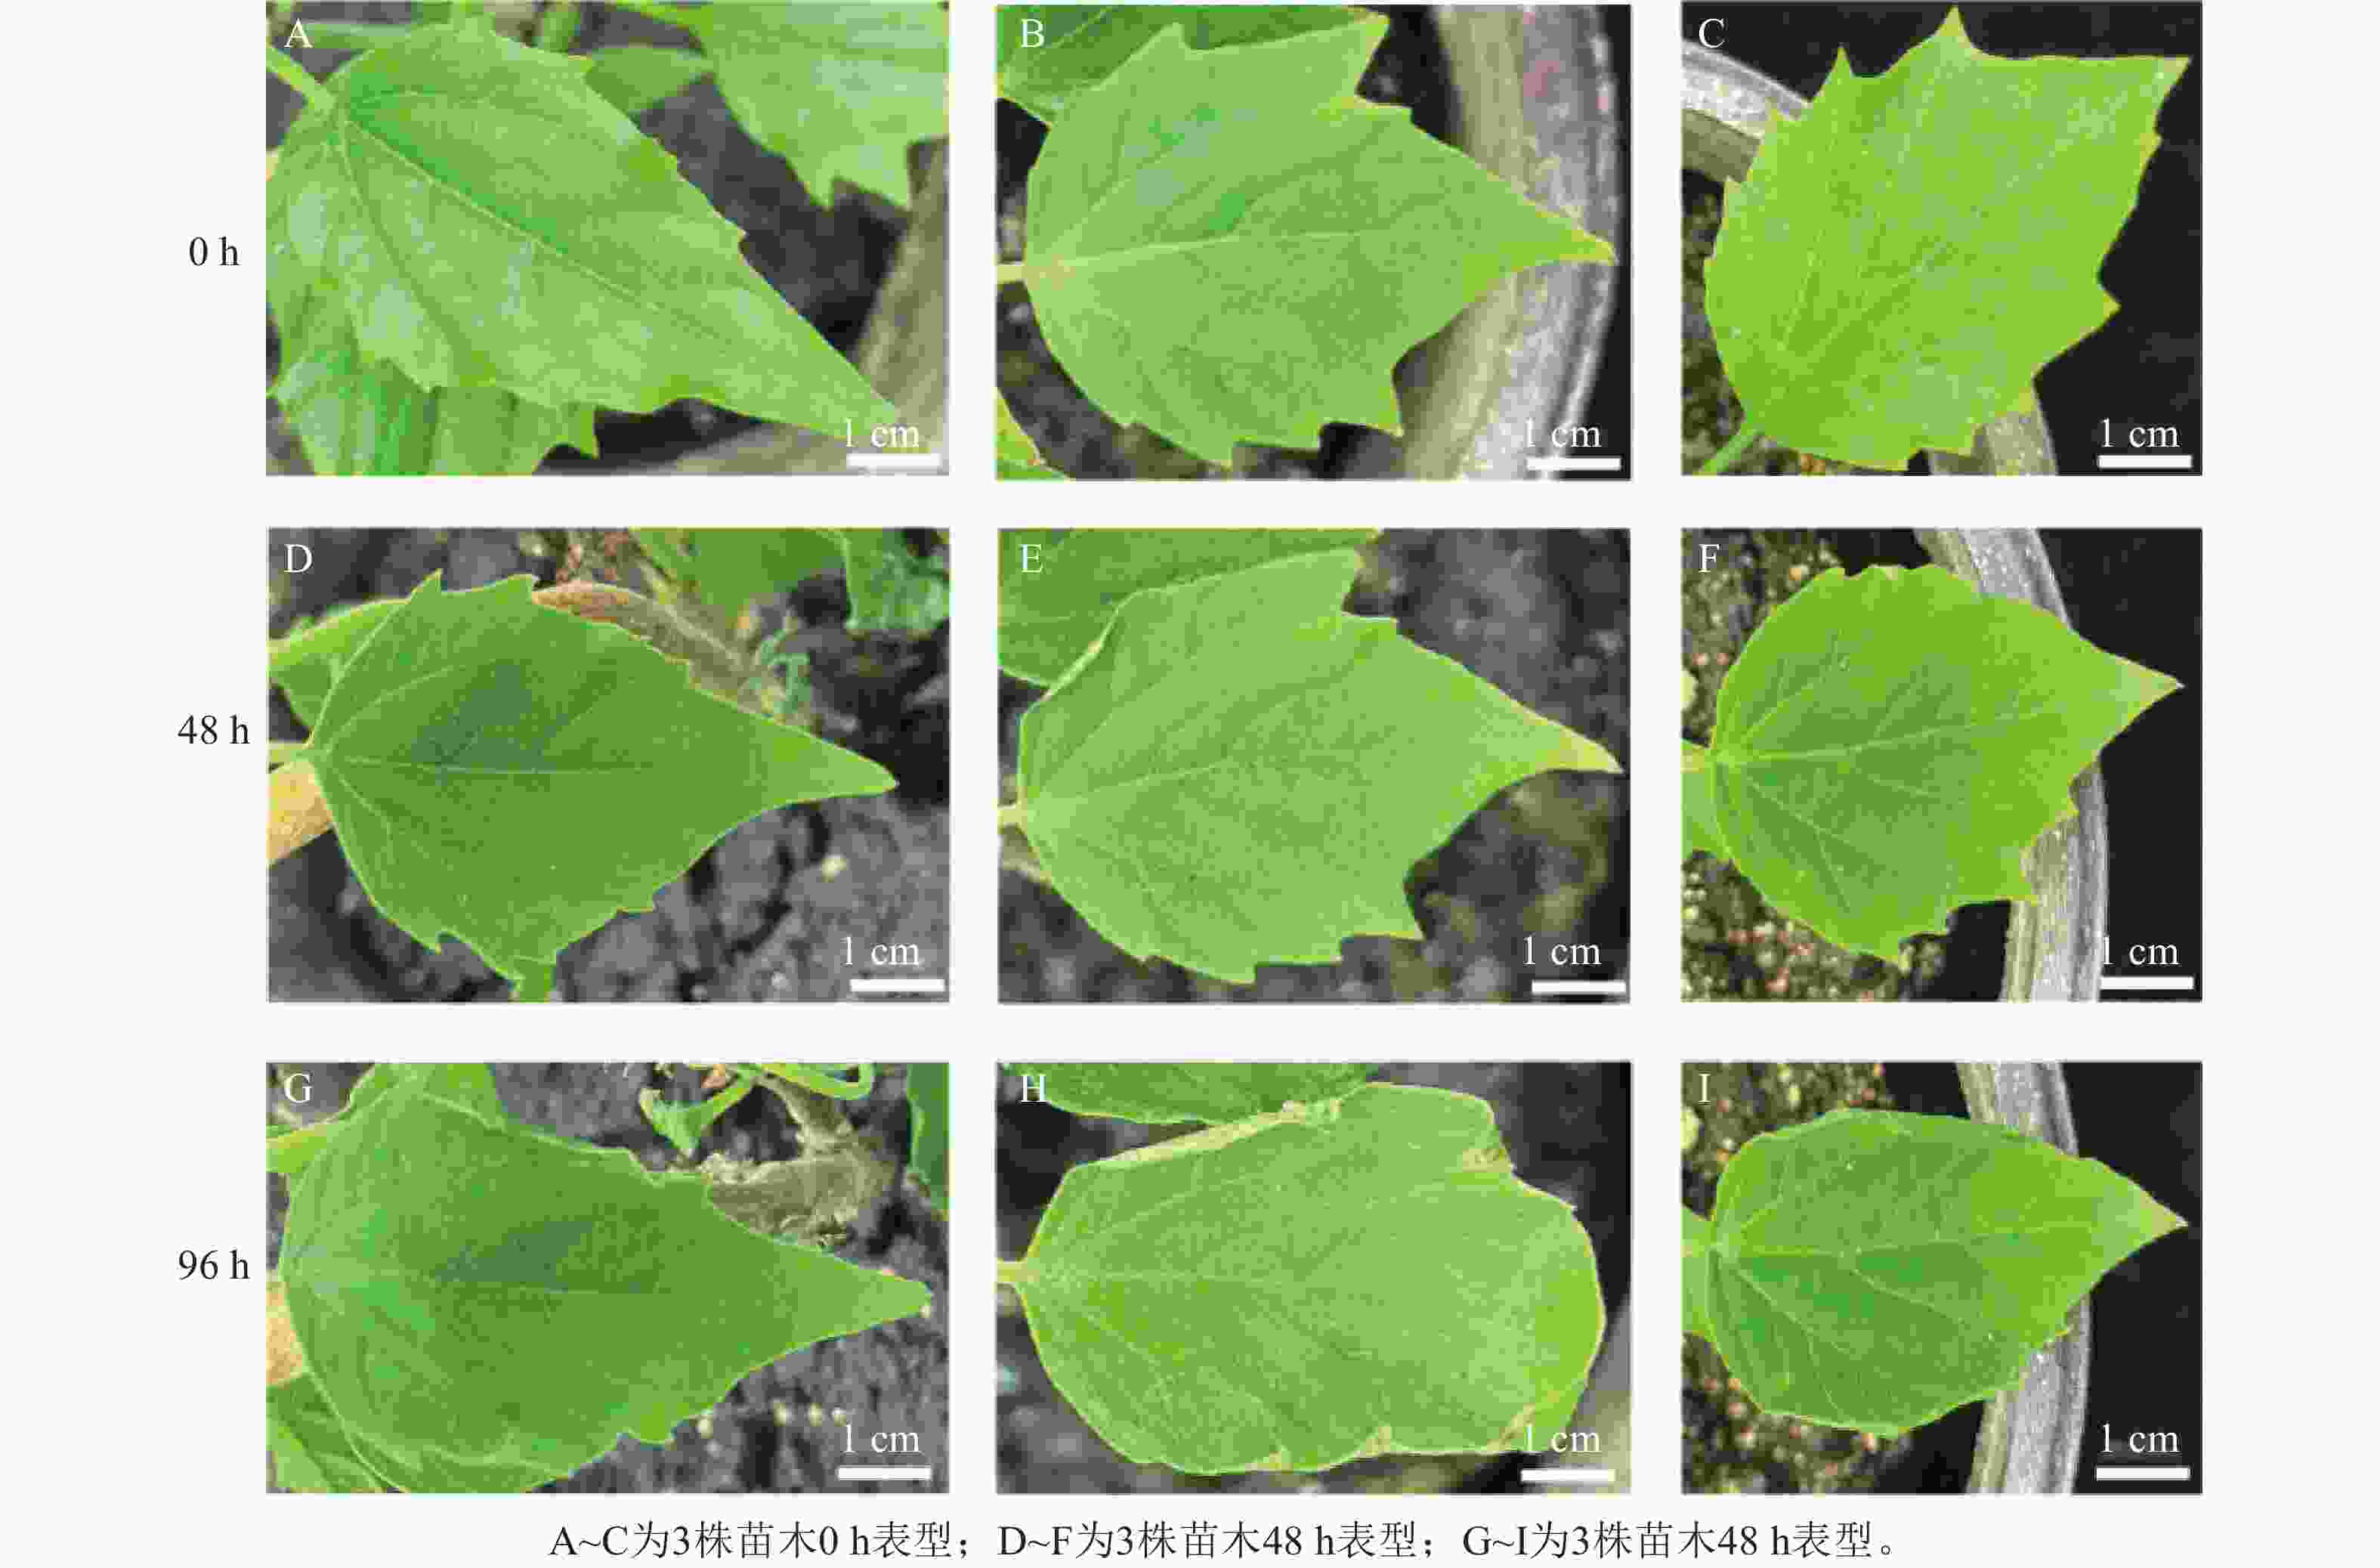
      图  2  楸树良种‘9-1’盐胁迫不同时期的表型观测

      Figure 2.  Phenotypic observation of C. bungei superior variety ‘9-1’ under salt stress at different time periods
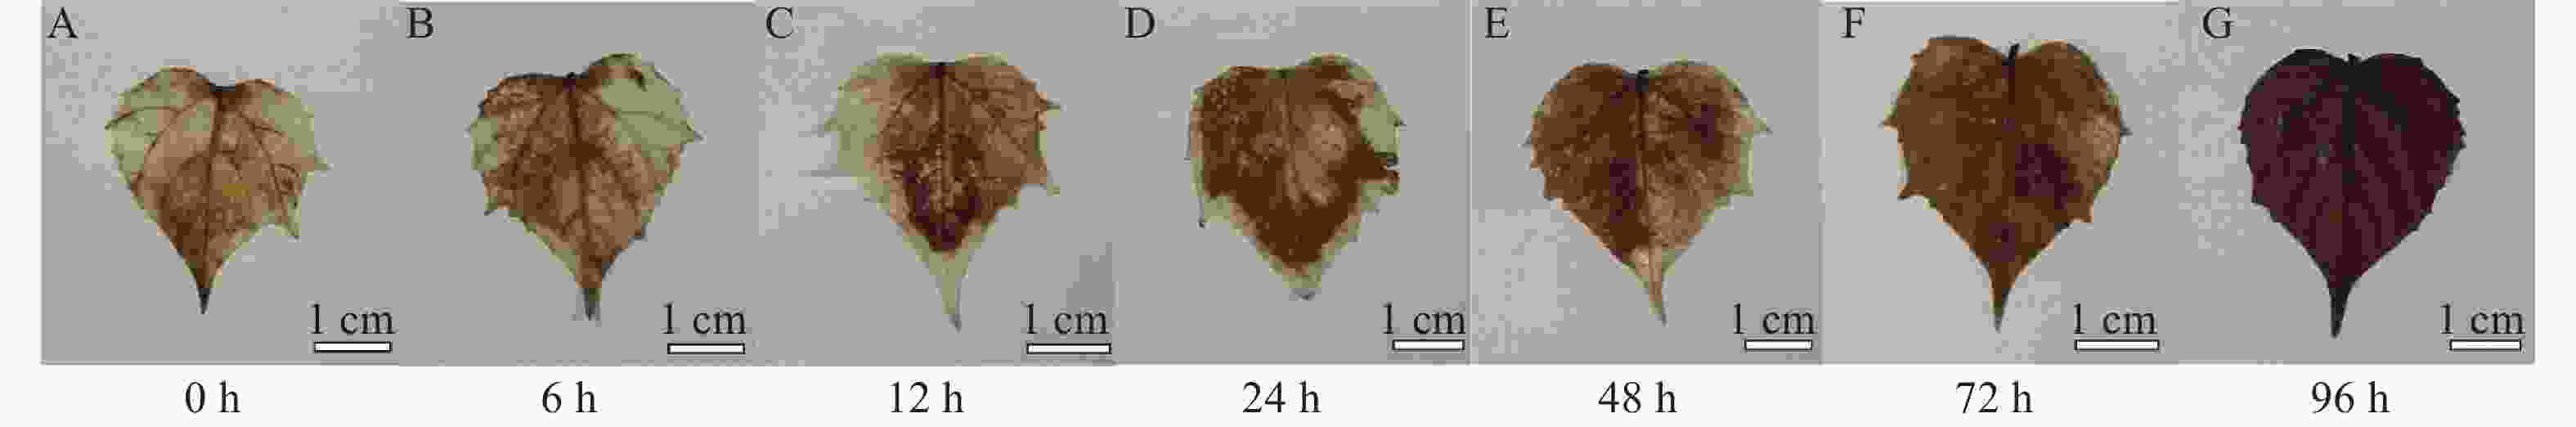
      图  3  盐胁迫下楸树良种‘9-1’叶片活性氧积累的DAB染色检测

      Figure 3.  DAB staining detection of reactive oxygen species accumulation in leaves of C. bungei superior variety ‘9-1’ under salt stress

      DAB染色结果显示:盐胁迫处理6~12 h后,叶片局部开始出现分散的浅褐色点状沉积,但整体着色程度较轻;处理至24 h时,叶片褐色染色区域显著扩大,呈现不规则斑块状分布,颜色深度明显加深,由浅褐色转为棕褐色;盐胁迫48 h后,褐色沉积面积急剧扩展,且褐色深度进一步加深至黑褐色;处理至72 h时,褐色区域已覆盖叶片大部分面积,仅叶片边缘残留少量黄绿色组织;至96 h时,整个叶片被深褐色至黑褐色均匀覆盖,几乎观察不到正常组织。表型与活性氧结果均表明:楸树在盐胁迫48 h开始受到损伤,并随时间延长而程度加深。

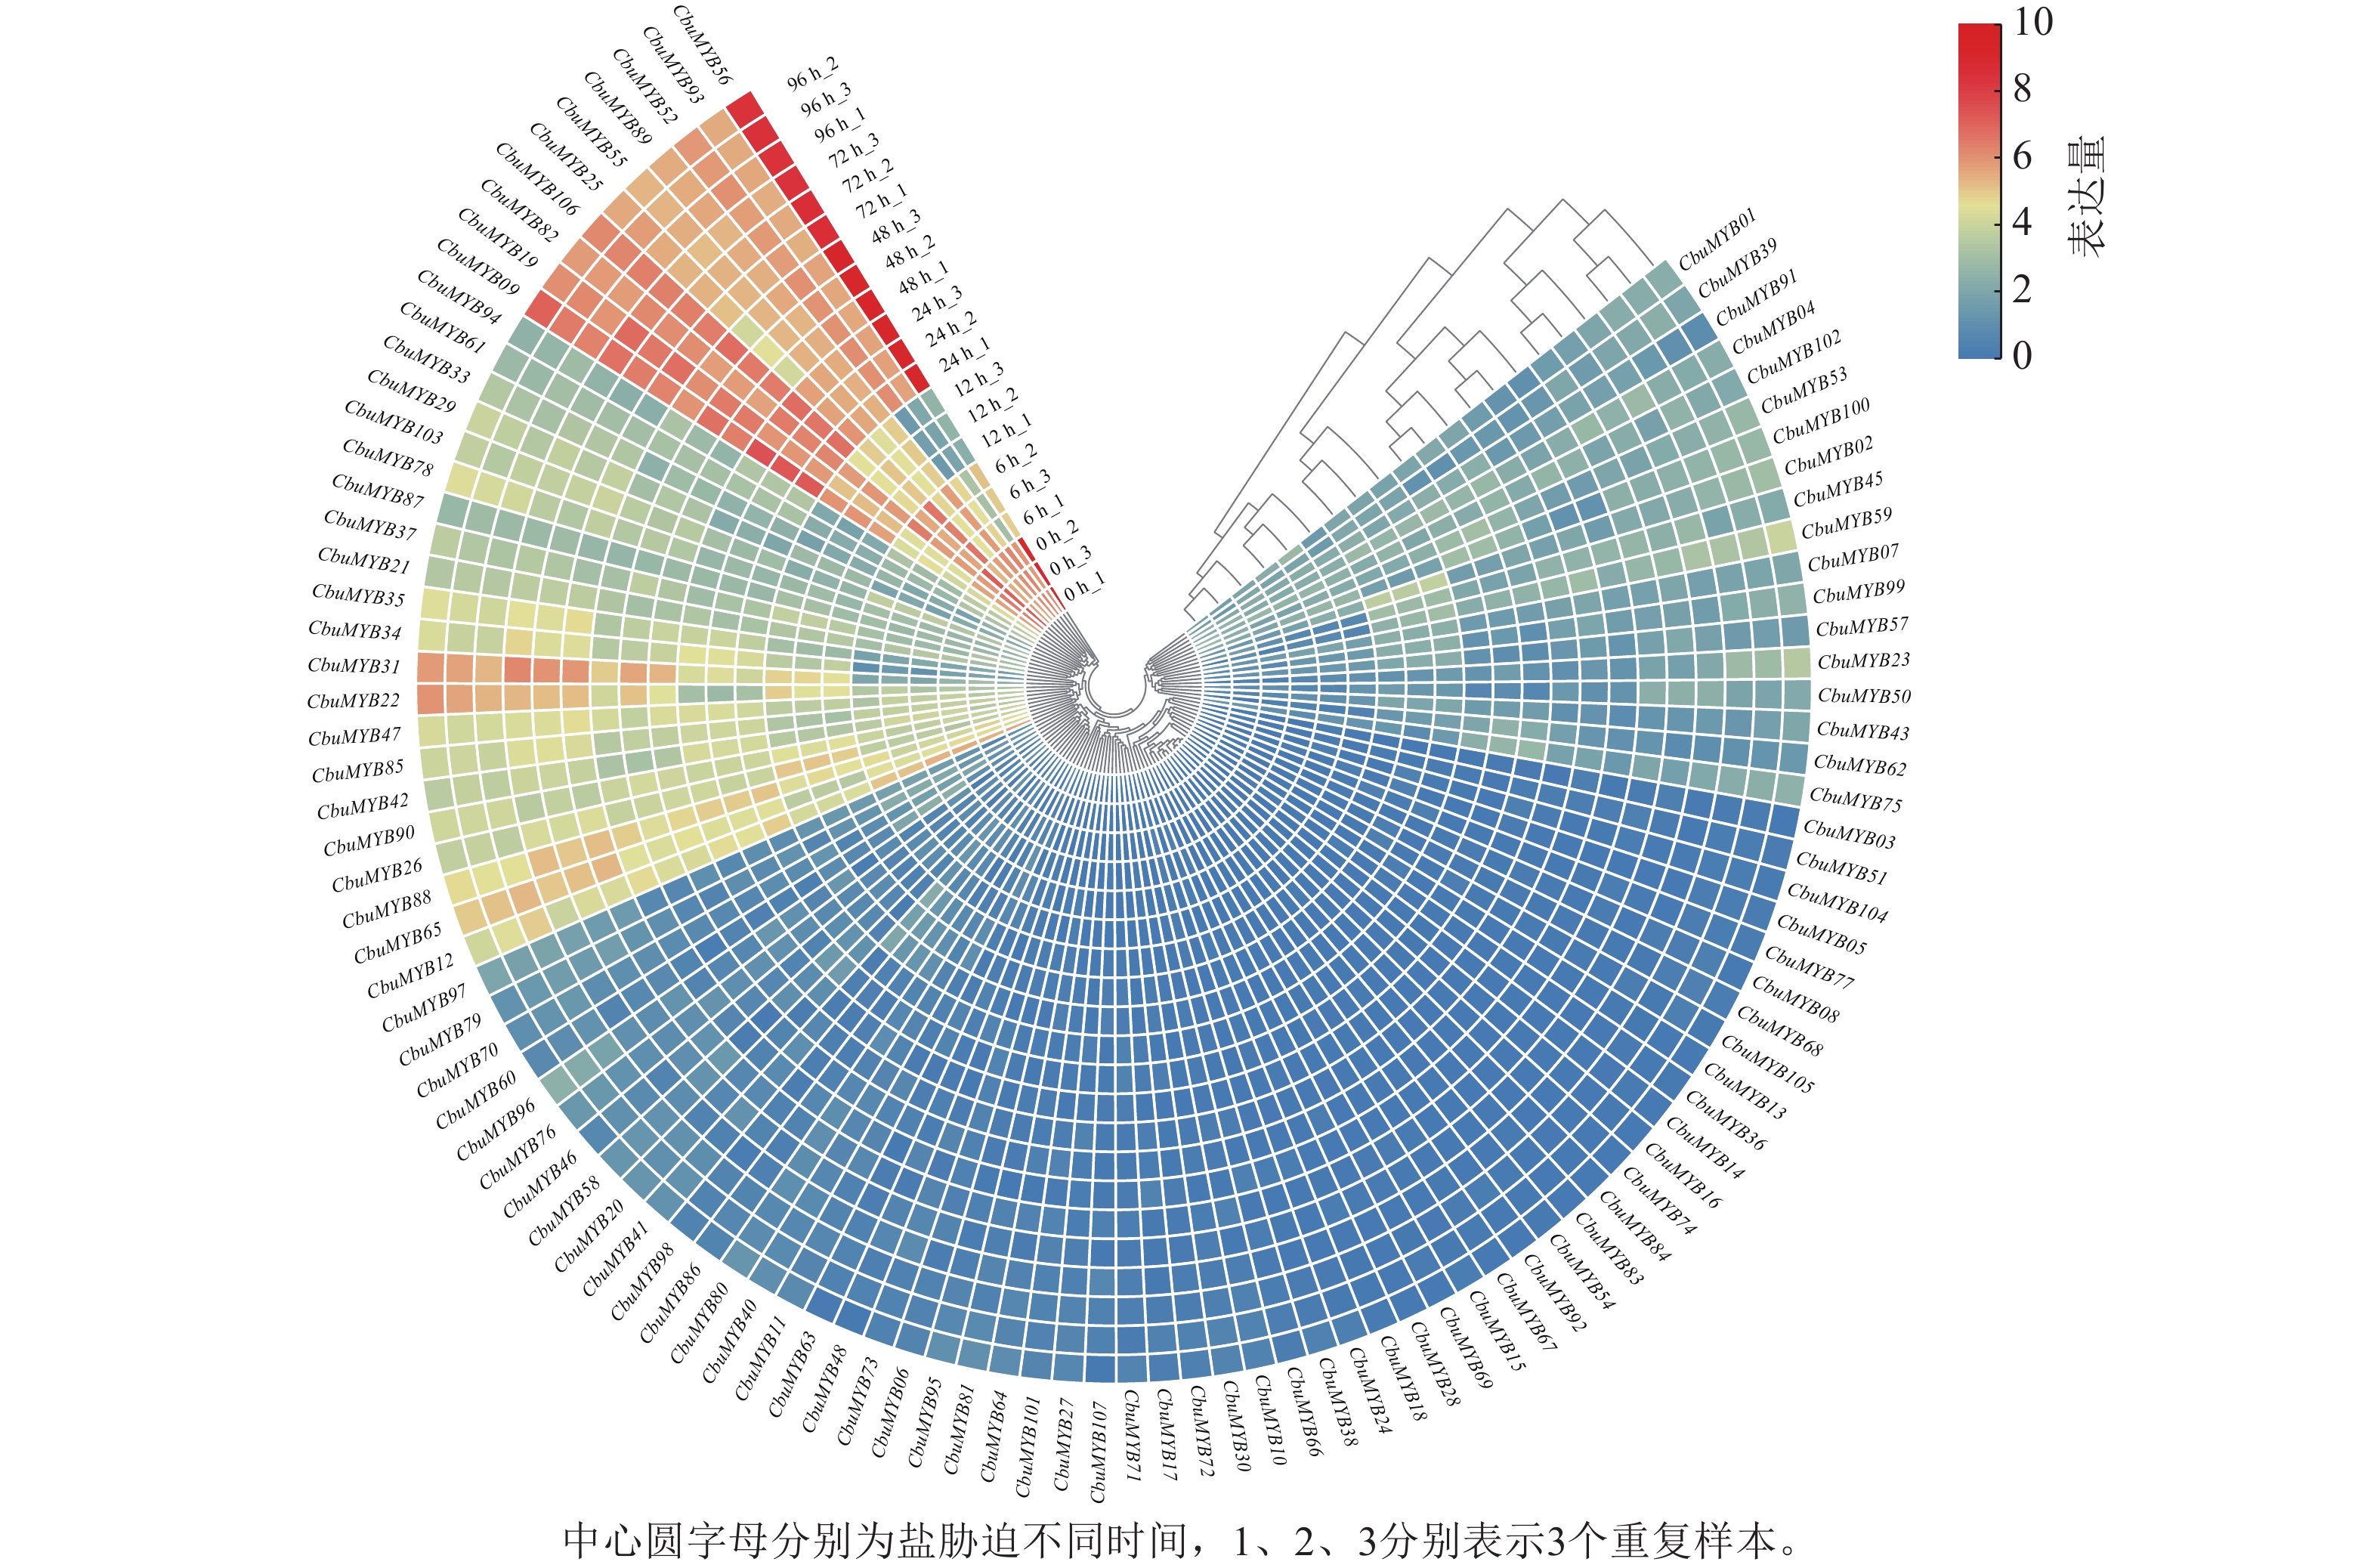
      基于楸树盐胁迫处理(0、6、12、24、48、72、96 h)转录组数据,利用TBtools对MYB家族基因成员进行聚类分析。由图4表明:楸树31个MYB基因成员参与盐胁迫反应,其中CbuMYB9、CbuMYB19等10个成员是楸树盐胁迫响应的主要调控基因;而CbuMYB12、CbuMYB21、CbuMYB22等21个成员在盐胁迫下表达量虽上调,但差异程度不及CbuMYB9、CbuMYB19等10个成员。
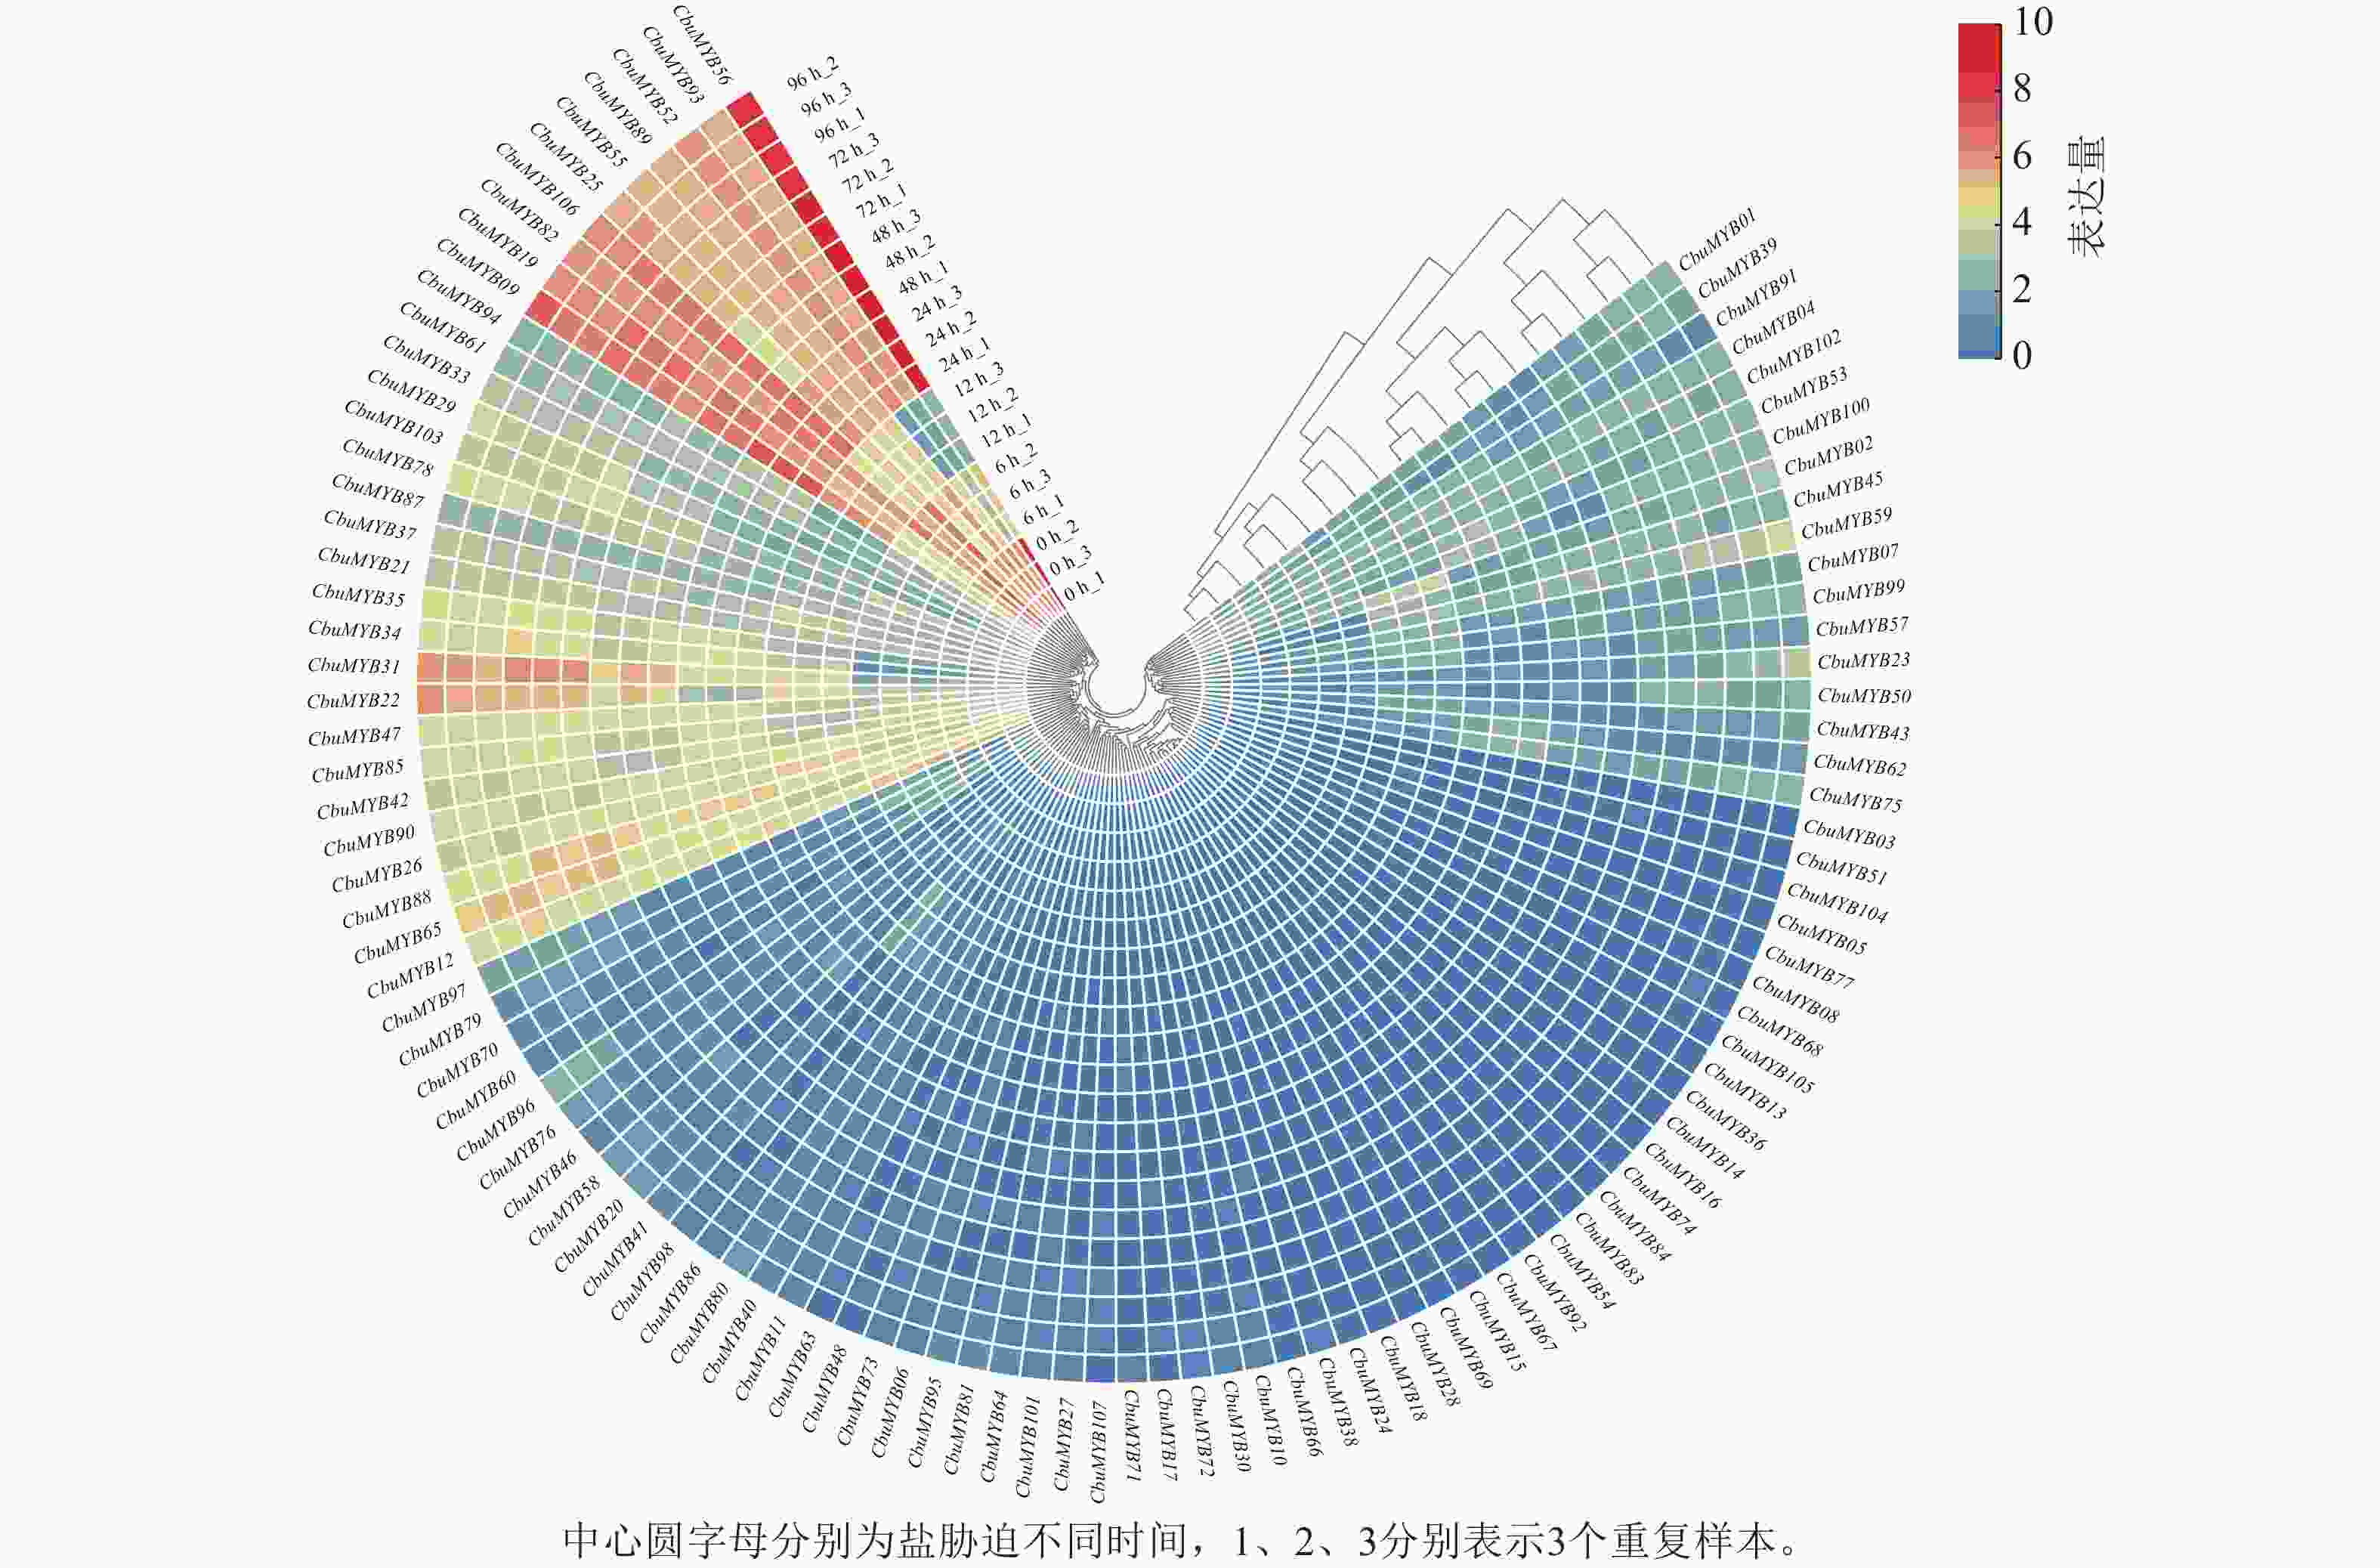
      图  4  盐胁迫下CbuMYB基因家族的表达量热图分析

      Figure 4.  Heat map analysis of the expression levels of CbuMYB gene family under salt stress

      进一步时序表达分析显示:CbuMYB52、CbuMYB56与CbuMYB93在盐胁迫6、12 h后表达量下调,至24 h恢复至胁迫初期水平,其可能通过抑制下游靶基因表达,负向调控楸树对盐胁迫的响应。而CbuMYB25在盐胁迫后6 h表达量上调,CbuMYB9在盐胁迫12 h后表达量上调,CbuMYB19在盐胁迫72 h表达量上调,可能通过激活下游抗逆相关基因,对楸树盐胁迫应答进行正向调控。

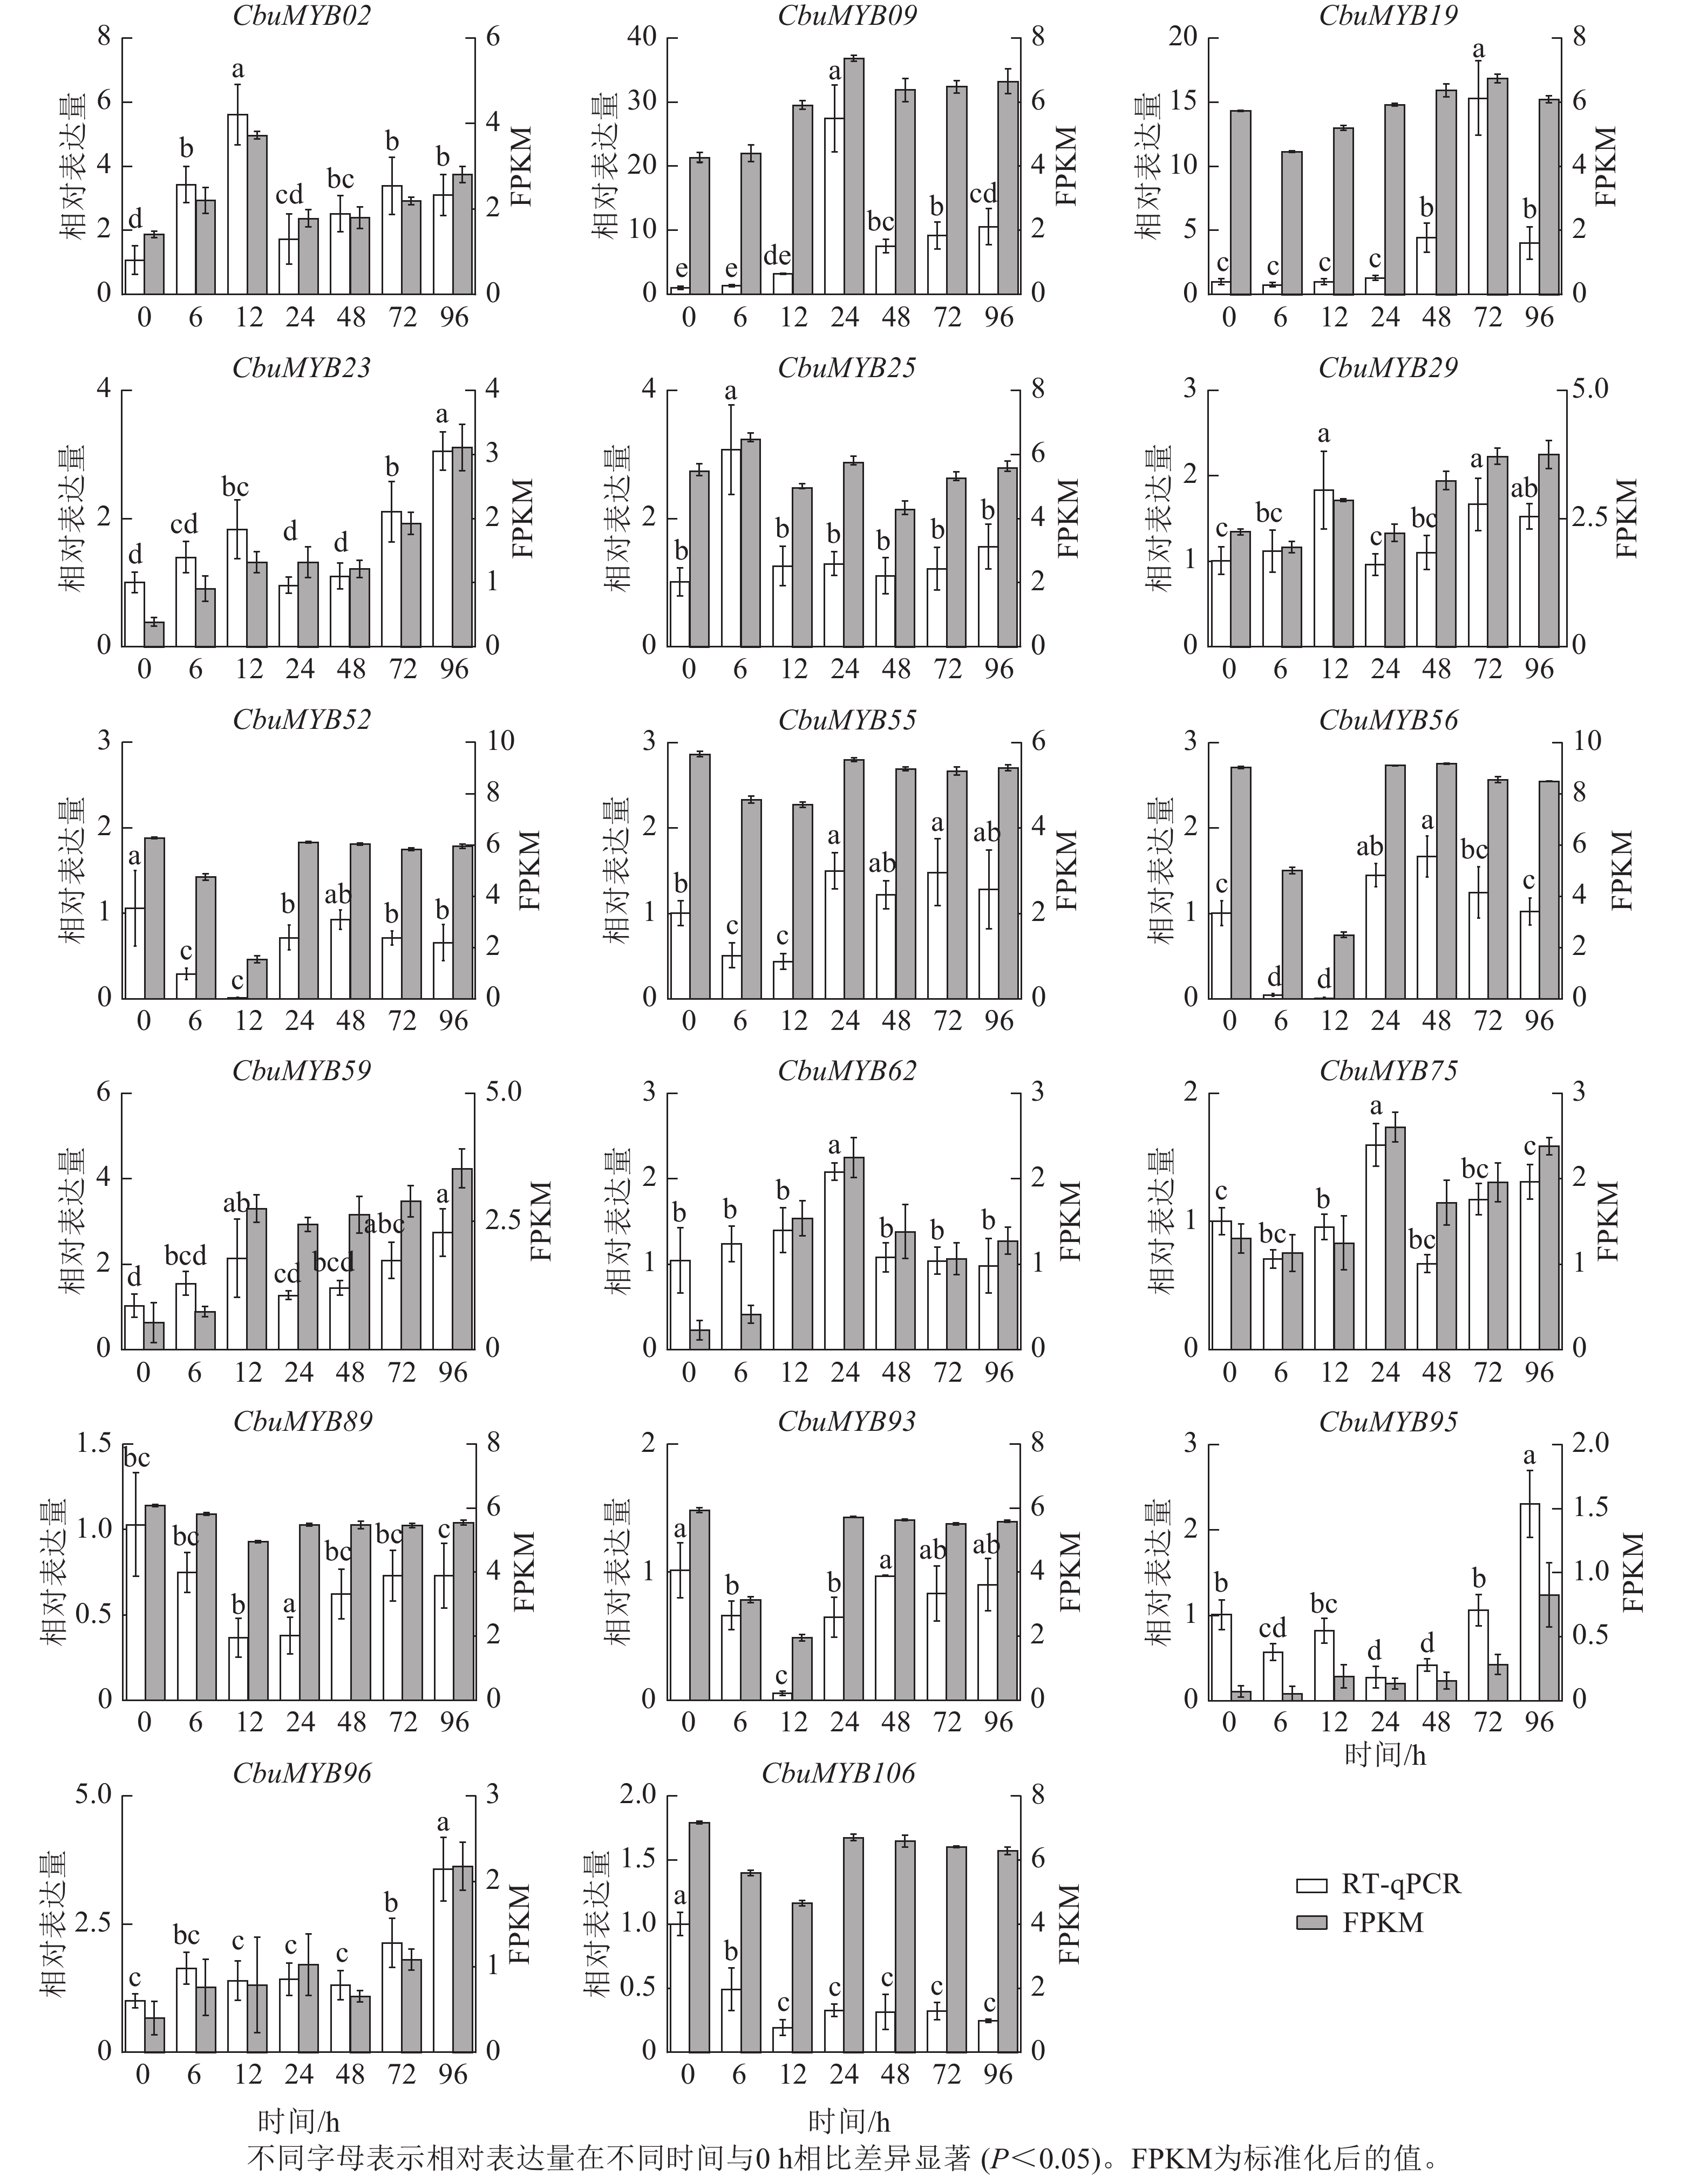
    • 为验证转录组数据可靠性,对17个CbuMYB家族成员进行RT-qPCR分析。结果显示基因荧光定量表达变化趋势与转录组测序(RNA-Seq)结果基本一致(图5)。通过RT-qPCR分析发现:在胁迫初期(6~12 h),CbuMYB52、CbuMYB55、CbuMYB56、CbuMYB93、CbuMYB106表达量与0 h相比显著下调(P<0.05),仅CbuMYB02、CbuMYB25表达量呈现上调表达;在胁迫后期(72~96 h),CbuMYB19、CbuMYB23、CbuMYB95、CbuMYB96表达量与0 h相比上调表达。表明在盐胁迫早期楸树MYB基因可能以下调表达为主,而后期以上调表达为主。不同CbuMYB家族成员在盐胁迫过程中表达量变化存在差异,CbuMYB09、CbuMYB19和CbuMYB56在盐胁迫下差异表达较为明显,其中CbuMYB09在24 h表达量与0 h相比上调30倍,CbuMYB19在72 h表达量上调15倍;而CbuMYB56在6、12 h表达量下调,分别下调为0 h的26、28倍。
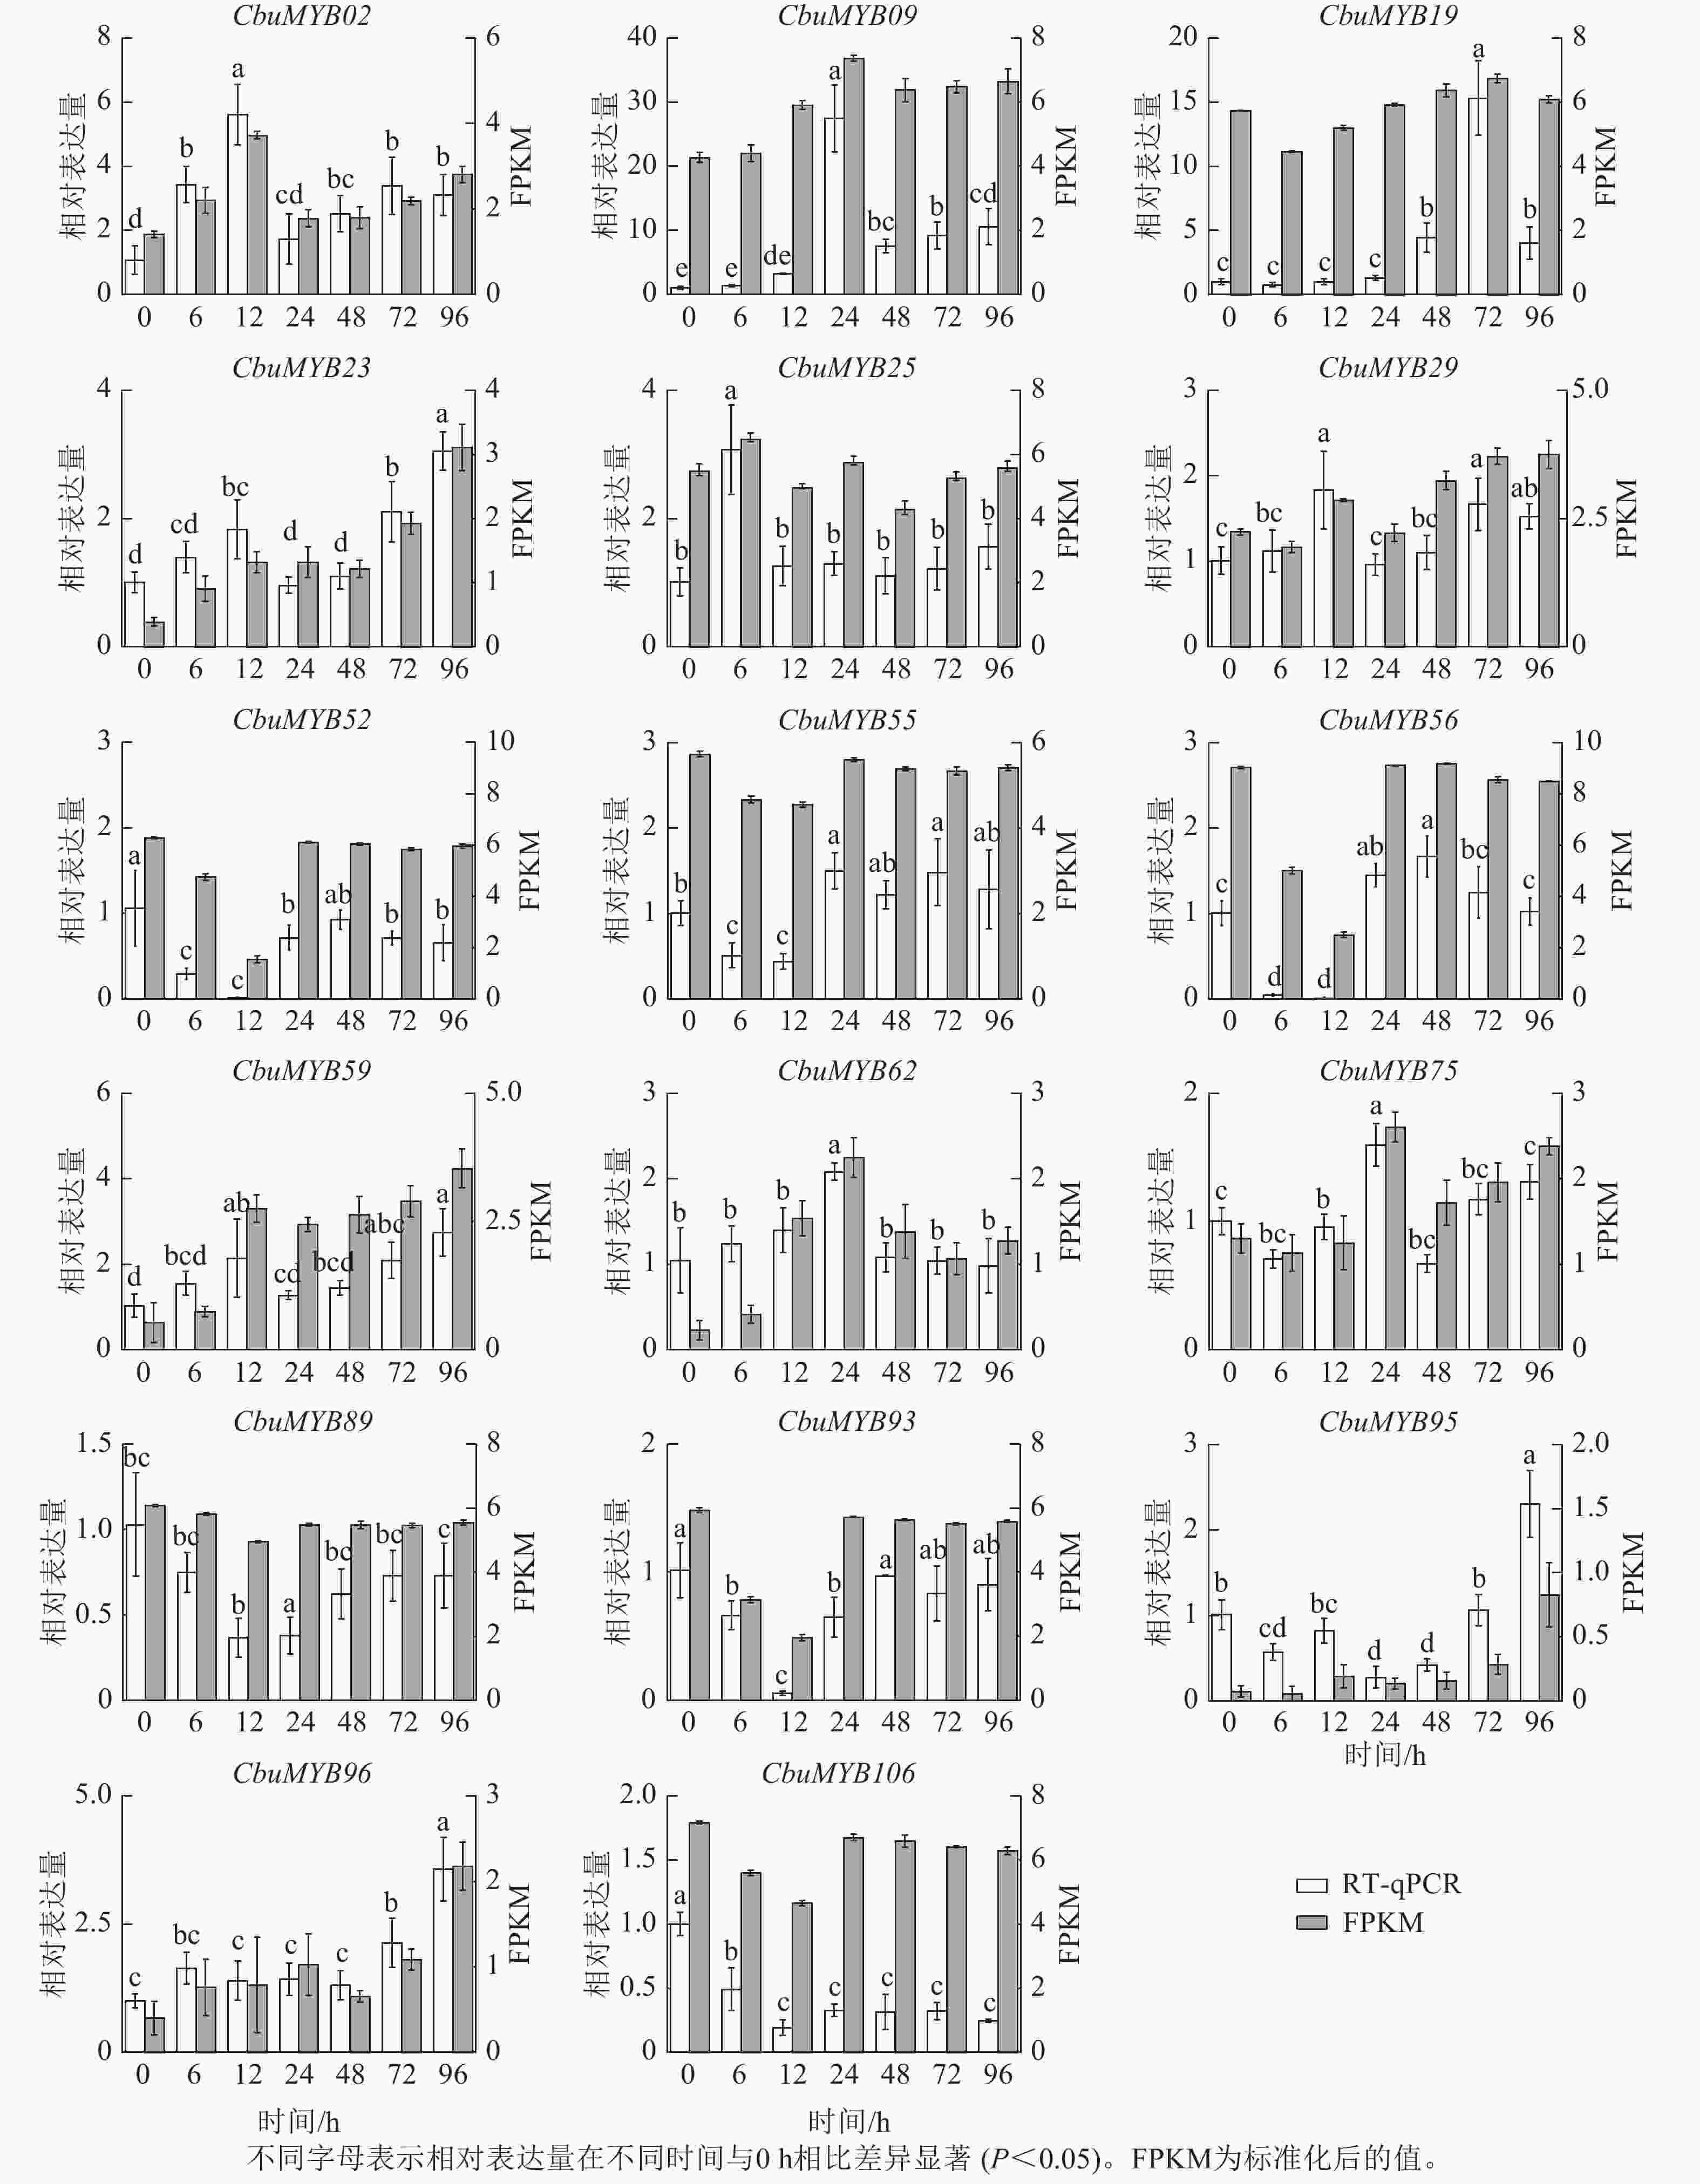
      图  5  CbuMYB基因家族成员的RT-qPCR验证

      Figure 5.  Experimental verification of CbuMYB gene family members by RT-qPCR

    • 本研究对楸树MYB基因家族进行了全基因组鉴定与盐胁迫应答分析,以拟南芥125个R2R3-MYB成员为参照,从楸树基因组中鉴定出107个家族成员,命名为CbuMYB01~CbuMYB107。与拟南芥(125个)、杨树Populus spp.(>200个)、水稻Oryza sativa (>100个)等物种相比,楸树的107个MYB成员数量相对较少,且全部属于R2R3-MYB亚家族[26−28]。保守基序分析显示:Motif  1存在于104个成员中,是家族中最保守的基序,而CbuMYB25、CbuMYB89、CbuMYB106仅含Motif  5,这种基序缺失现象在其他植物的MYB家族中亦有报道[29]。楸树CbuMYB共包含10个Motif和8个保守结构域,各成员外显子与内含子分布不均但结构高度保守,这一特征与三七Panax notoginseng和紫花槭Acer pseudosieboldianum的全基因组鉴定结果相似[30−31]。有研究发现:23个CbuMYB基因不含内含子,表明无内含子基因通常与快速应激响应相关,可在胁迫条件下实现快速表达[32]。因此,无内含子CbuMYB成员(如CbuMYB09、CbuMYB19)在盐胁迫后期显著上调表达,可能由于其简洁的基因结构,能够快速响应胁迫信号。系统进化树将CbuMYB分为12个亚族,其中第2亚族成员最多,第3亚族最少,而小麦Triticum durum和麻疯树Jatropha curcas中分别划分为10和19个亚族[33−34],表明不同植物中MYB家族的扩张模式和功能分化程度存在差异。同一亚族内CbuMYB与AtMYB成员相似度高达0.8,暗示它们可能执行相似的生物学功能。启动子区顺式作用元件预测显示:启动子区富含与逆境响应、生长发育、激素应答及光响应等相关的顺式作用元件。其中105个CbuMYB成员含有逆境响应元件,96个含有生长发育元件,85个含有光响应元件。这一结果强调了CbuMYB基因家族在楸树应对多种环境胁迫(干旱、低温、高盐)中发挥广泛作用[35],在逆境响应元件中,非生物胁迫响应元件尤为突出,表明楸树MYB基因可能通过“自身调控与激素信号交叉调控”的方式参与盐胁迫响应,这一结论与玉米Zea mays[36]、桉树Eucalyptus grandis[37]的研究结果相似。

      盐胁迫叶片表型与DAB染色结果清晰地揭示了楸树叶片损伤的时间进程。0~24  h仅出现分散的浅褐色斑点,活性氧积累尚不严重;48  h叶片开始萎蔫,DAB染色转为棕褐色;72~96  h损伤急剧加重,叶片几乎被黑褐色覆盖。这一时间节点与转录组中关键CbuMYB基因的表达变化高度吻合。目前已有研究表明:大多数MYB基因在植物盐胁迫早期做出响应,而后期响应的研究较少。这种“早期转录冲击”策略在拟南芥、杨树等多种植物中均有报道,被认为是植物界保守的应急响应模式[38−39]。在胁迫初期(6~12  h),CbuMYB52、CbuMYB56、CbuMYB93等成员表达量显著下调,这一现象表明它们可能作为负调控因子,盐胁迫早期迅速下调这些抑制因子,可快速“去抑制”下游正调控基因,从而启动耐盐反应[40−41]。与本研究结果不同的是,白桦Betula platyphylla BpMYB88在盐胁迫早期(6~24 h)启动下游基因表达[42],而楸树早期以下调为主,体现了物种间响应策略的差异。CbuMYB25在6  h、CbuMYB09在12  h显著上调,表明它们是盐胁迫的中期响应正调控因子。尤其是CbuMYB09在24  h时表达量较对照上调30倍,是本研究上调幅度最大的基因。胁迫后期(72~96  h),CbuMYB19、CbuMYB23、CbuMYB95、CbuMYB96表达量显著上调,其中CbuMYB19上调15倍。此时叶片已出现严重活性氧积累和组织损伤,这些后期上调基因可能参与胁迫损伤的修复过程及衰老诱导或程序性细胞死亡的调控[43]。而棉花Gossypium spp.在NaCl处理144  h后叶片才开始出现轻微卷曲脱水,且MYB基因表达较为显著[44]。本研究楸树在96  h内出现强烈响应,可能反映了楸树作为木本植物对盐胁迫更为敏感的特性。处理后期(72~96  h) CbuMYB基因显著上调,与棉花后期上调的研究结果一致[44]。推测其可能参与激活后期的适应性反应,如抗氧化防御或次生代谢途径(木质素、类黄酮合成),以此抵御累积的离子毒害与氧化损伤[45−46]。

    • 经全基因组鉴定,楸树含107个R2R3-MYB蛋白,包含10个Motif和8个保守结构域,分属12个系统发育亚族(第2亚族最大)。启动子区域富含逆境、激素等响应元件,105个成员含逆境响应元件。盐胁迫下叶片48  h开始萎蔫,96  h损伤严重。时序表达阶段性明显:胁迫早期(6~12 h) CbuMYB52、CbuMYB56、CbuMYB93受到抑制,胁迫中期(12~24 h) CbuMYB09骤升30倍,胁迫后期(72~96 h) CbuMYB19上调15倍,在72 h出现单一诱导峰。本研究发现CbuMYB家族成员之间具有较高的保守性,揭示了楸树R2R3-MYB“早期下调、后期上调”的盐胁迫响应模式,同时,筛选的关键候选基因可为楸树耐盐育种提供理论依据。

参考文献 (46)
补充材料:
2026-0188-附件材料.pdf

目录

    /

    返回文章
    返回