



 下载:

-
土壤盐渍化作为制约植物生长的关键非生物胁迫因子,通过离子毒性、渗透胁迫与氧化损伤等多重机制,显著抑制种子萌发及林木生长发育[1]。而中国盐碱地分布广泛,东北、西北、华北及沿海地区均有大量存在,总面积已超过1亿hm2[2]。楸树Catalpa bungei作为中国特有的珍贵用材及园林绿化树种,关于其响应盐胁迫分子机制的研究相对匮乏。土壤高盐致使离子不平衡,过高钠离子通过根尖分生区进入植物细胞,限制植物对养分和水分的吸收,进而导致其生长发育缓慢[3]。有研究表明:楸树的耐盐机制涉及生理适应[4]和分子调控[5] 2个层面,过表达CbWRKY27的楸树植株较野生型耐盐性降低,表明CbWRKY27在楸树体内呈现负调控机制[6]。楸树具有重要的经济价值和生态价值[7−8],但其对盐胁迫敏感,加之耐盐楸树品种或良种缺乏,严重制约了该树种在盐渍化地区的推广应用[9−12]。因此,从生物信息学水平系统筛选楸树耐盐基因,为选育耐盐楸树新品种提供理论基础,对提升盐碱地利用效率、维护国家木材安全与生态屏障功能具有重要战略意义。
MYB转录因子结构基序通过特异性识别并结合靶标基因启动子区段的特定顺式调控元件,实现对下游基因转录过程的调控[13−14]。MYB转录因子广泛参与植物生长发育、次生代谢以及生物与非生物胁迫响应过程[15−19],其中R2R3-MYB已被证实在干旱、低温、高盐等多种逆境信号通路中发挥关键调控作用。如XsMYB44基因沉默通过抑制抗氧化酶和脯氨酸积累,增加活性氧(ROS)水平,降低文冠果Xanthoceras sorbifolium耐旱及耐热性[20];MdMYB23过表达则通过激活MdANR启动子,促进原花青素生物合成及ROS清除,从而增强苹果Malus domestica和拟南芥Arabidopsis thaliana的抗寒性[21];过表达GmMYB069可通过增强抗氧化酶活性,抑制大豆Glycine max根部对Na+的吸收[22]。目前,木本植物中MYB转录因子参与耐盐调控的研究仍较为有限。已知毛白杨Populus tomentosa PtoMYB61通过调控次生壁发育增强耐盐性[23],银杏Ginkgo biloba GbR2R3-MYB1已被鉴定为盐胁迫响应的关键基因[24],而楸树MYB家族全基因组鉴定及盐胁迫响应模式尚不明确。鉴于此,本研究以楸树‘9-1’为材料,在0.1 mol·L−1 NaCl胁迫处理0~96 h后采集叶片,通过转录组联合分析筛选关键响应基因CbuMYB,并开展全基因组鉴定,解析MYB家族在盐胁迫相应下的表达模式,以期为楸树耐盐调控网络构建提供科学依据。
-
供试材料为东北林业大学林科楼培育的15 d楸树良种‘9-1’苗木,基质配比为珍珠岩∶蛭石∶泥炭土=1∶1∶2(质量比)。培养条件为16 h光照/8 h黑暗,光强为200 μmol·m−2·s−1,隔2 d浇水1次。选取21株长势一致的幼苗,以200 mL 0.1 mol·L−1 NaCl首次浇透土壤,后续每2 d浇灌等量0.1 mol·L−1 NaCl维持盐浓度。分别于胁迫后0、6、12、24、48、72、96 h采集第2轮叶片,液氮速冻后于−80 ℃保存,用于活性氧测定及转录组测序,每个时间点设3个生物学重复(单株独立样本)。
-
基于拟南芥数据库(TAIR)中125条R2R3-MYB蛋白序列,比对楸树全基因组,利用TBtools[25]鉴定CbuMYB家族成员,并根据染色体位置命名。使用MEGA11 (MUSCLE工具)进行多序列比对,利用MEME在线分析网站及美国国家生物技术信息中心(NCBI)数据库,分别对保守基序(Motif)和保守结构域进行鉴定,并通过TBtools进行基因结构可视化。基于最大似然法构建楸树与拟南芥MYB蛋白系统发育树,利用TBtools完成染色体定位及启动子上游2 kb序列提取。通过Plant CARE数据库预测顺式作用元件,并借助TBtools Heat Map插件对盐胁迫下CbuMYB家族每百万映射读数中每千碱基转录本的片段数(FPKM)进行表达量热图可视化。
-
委托蓝景科信河北生物科技有限公司完成测序。使用试剂盒提取总RNA,经质量浓度为1%的琼脂糖凝胶电泳质检合格后,以1 μg总RNA建库,于Illumina Novaseq平台测序,原始数据以R包分析。盐胁迫各时间点叶片同时用于表型观测及二氨基联苯胺(DAB)染色,检测活性氧积累。基于转录组数据,结合差异表达WGCNA共表达网络筛选关键候选基因,对CbuMYB2、CbuMYB23、CbuMYB29等显著差异表达基因进行实时荧光定量PCR (RT-qPCR)验证。使用在线工具设计引物,以Actin和MADH为内参,采用TB Green Ex TaqTM Ⅱ酶进行20.0 μL体系扩增(含cDNA 2.0 μL、Premix 10.0 μL、DAB染料0.4 μL、引物0.8 μL及灭菌水6.0 μL)。相对表达量以2−ΔΔCt法计算,每个样本3次生物学重复,将FPKM值(FPKM)经log2(1+FPKM)转换均一化后,与RT-qPCR检测结果进行联合可视化分析。
-
通过楸树基因保守基序分析发现:107个CbuMYB基因家族成员共鉴定出10个Motif基序,且每个成员至少含有一个保守基序,除CbuMYB25、CbuMYB89、CbuMYB106仅包含1个Motif 5基序外,其余104个CbuMYB成员都包含Motif 1基序,表明Motif 1在楸树CbuMYB基因家族中相对较为保守(附图1)。保守结构域分析表明:楸树CbuMYB基因家族包含8个保守结构域,其中105个基因家族成员包含1个保守结构域,95个成员仅包含PLN03212 superfamily和PLN03091 superfamily保守结构域。楸树CbuMYB基因结构分析发现:所有CbuMYB基因均含有编码序列(CDS),而家族内部基因结构发生明显变异,其中34个CbuMYB基因成员不含有非翻译区(UTR)区域,23个家族成员不含内含子区域。
-
构建楸树与拟南芥MYB基因家族(AtMYB)系统进化树发现:CbuMYB基因家族成员分为12个亚族(附图2),其中第2亚族成员最多,为18个 (16.8%),第3亚族成员最少,为3个 (2.8%),其他亚家族成员4~13个不等。楸树与拟南芥同一亚族中的CbuMYB成员相似度较高(0.8),表明它们可能具有相似的生物学关系,行使相同的生物学功能。
-
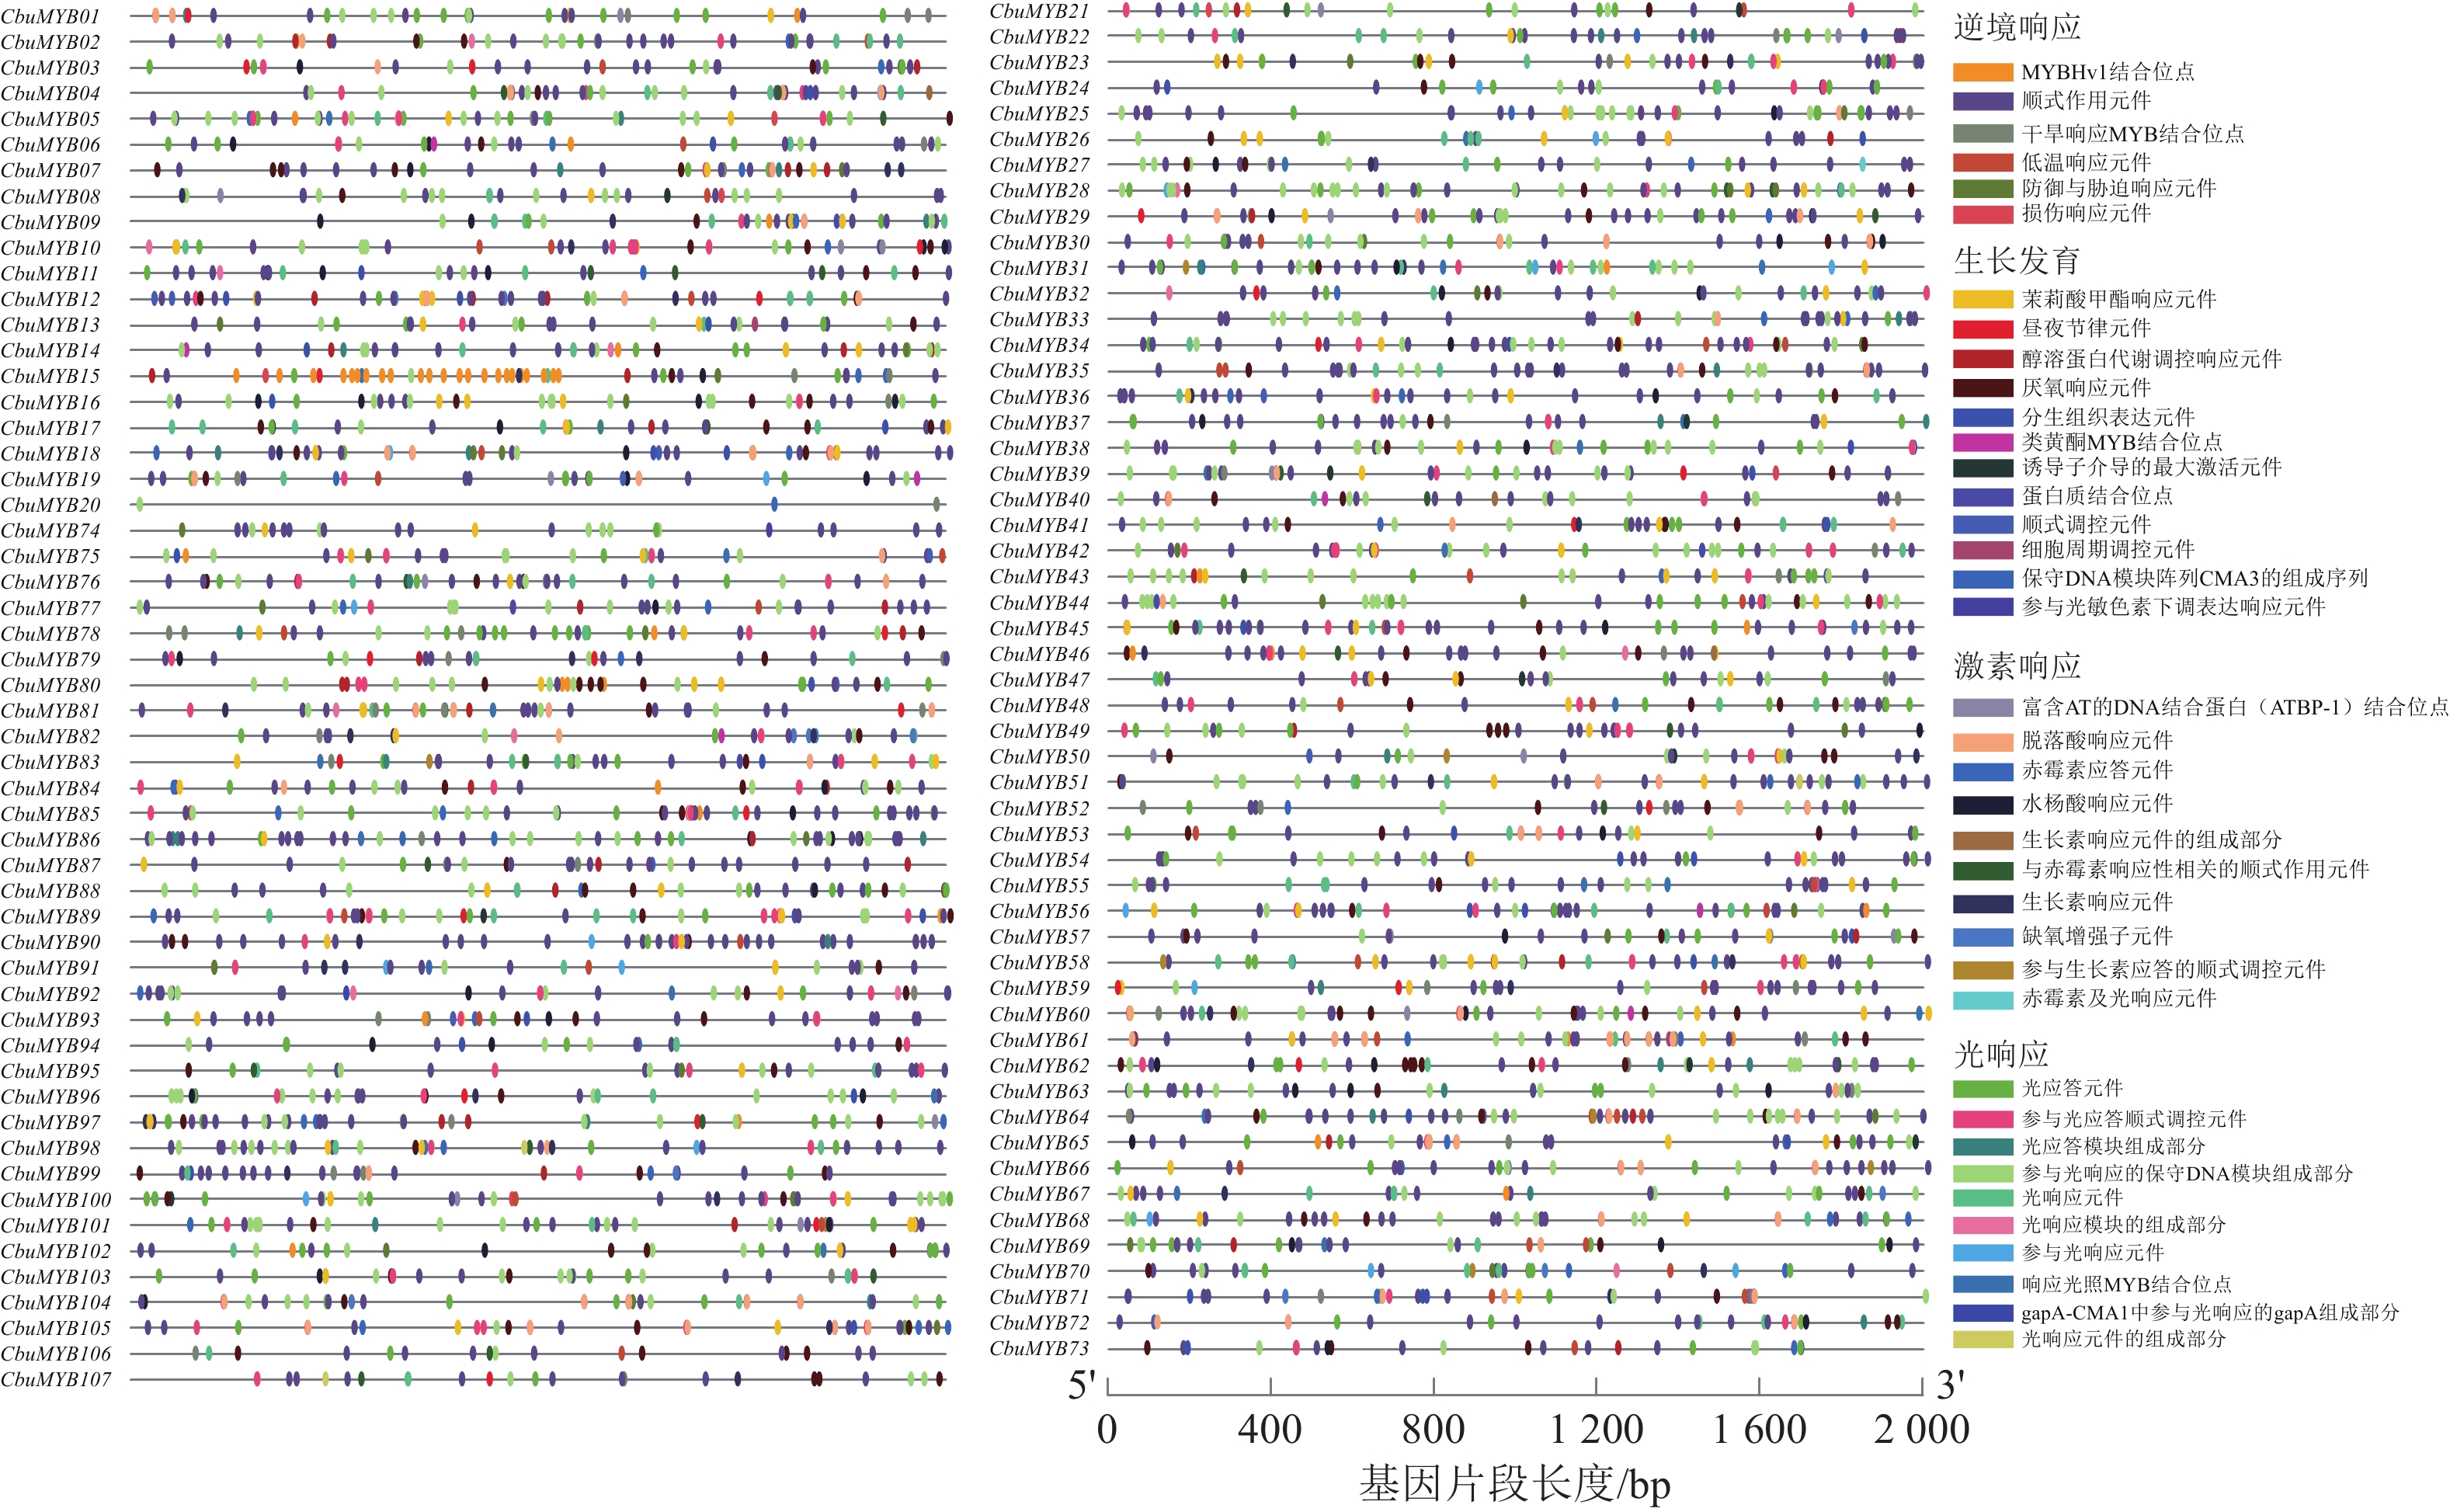
由图1表明:CbuMYB基因家族成员的顺式作用元件功能集中在逆境响应、生长发育、激素响应和光响应4个主要方面,其中105个楸树CbuMYB成员在逆境响应方面有调控基因表达元件,揭示MYB成员可能是楸树逆境胁迫过程中的关键调控基因。96个CbuMYB家族成员含有生长和发育元件,59个CbuMYB家族成员含有激素响应元件,85个CbuMYB家族成员含有参与光响应元件。
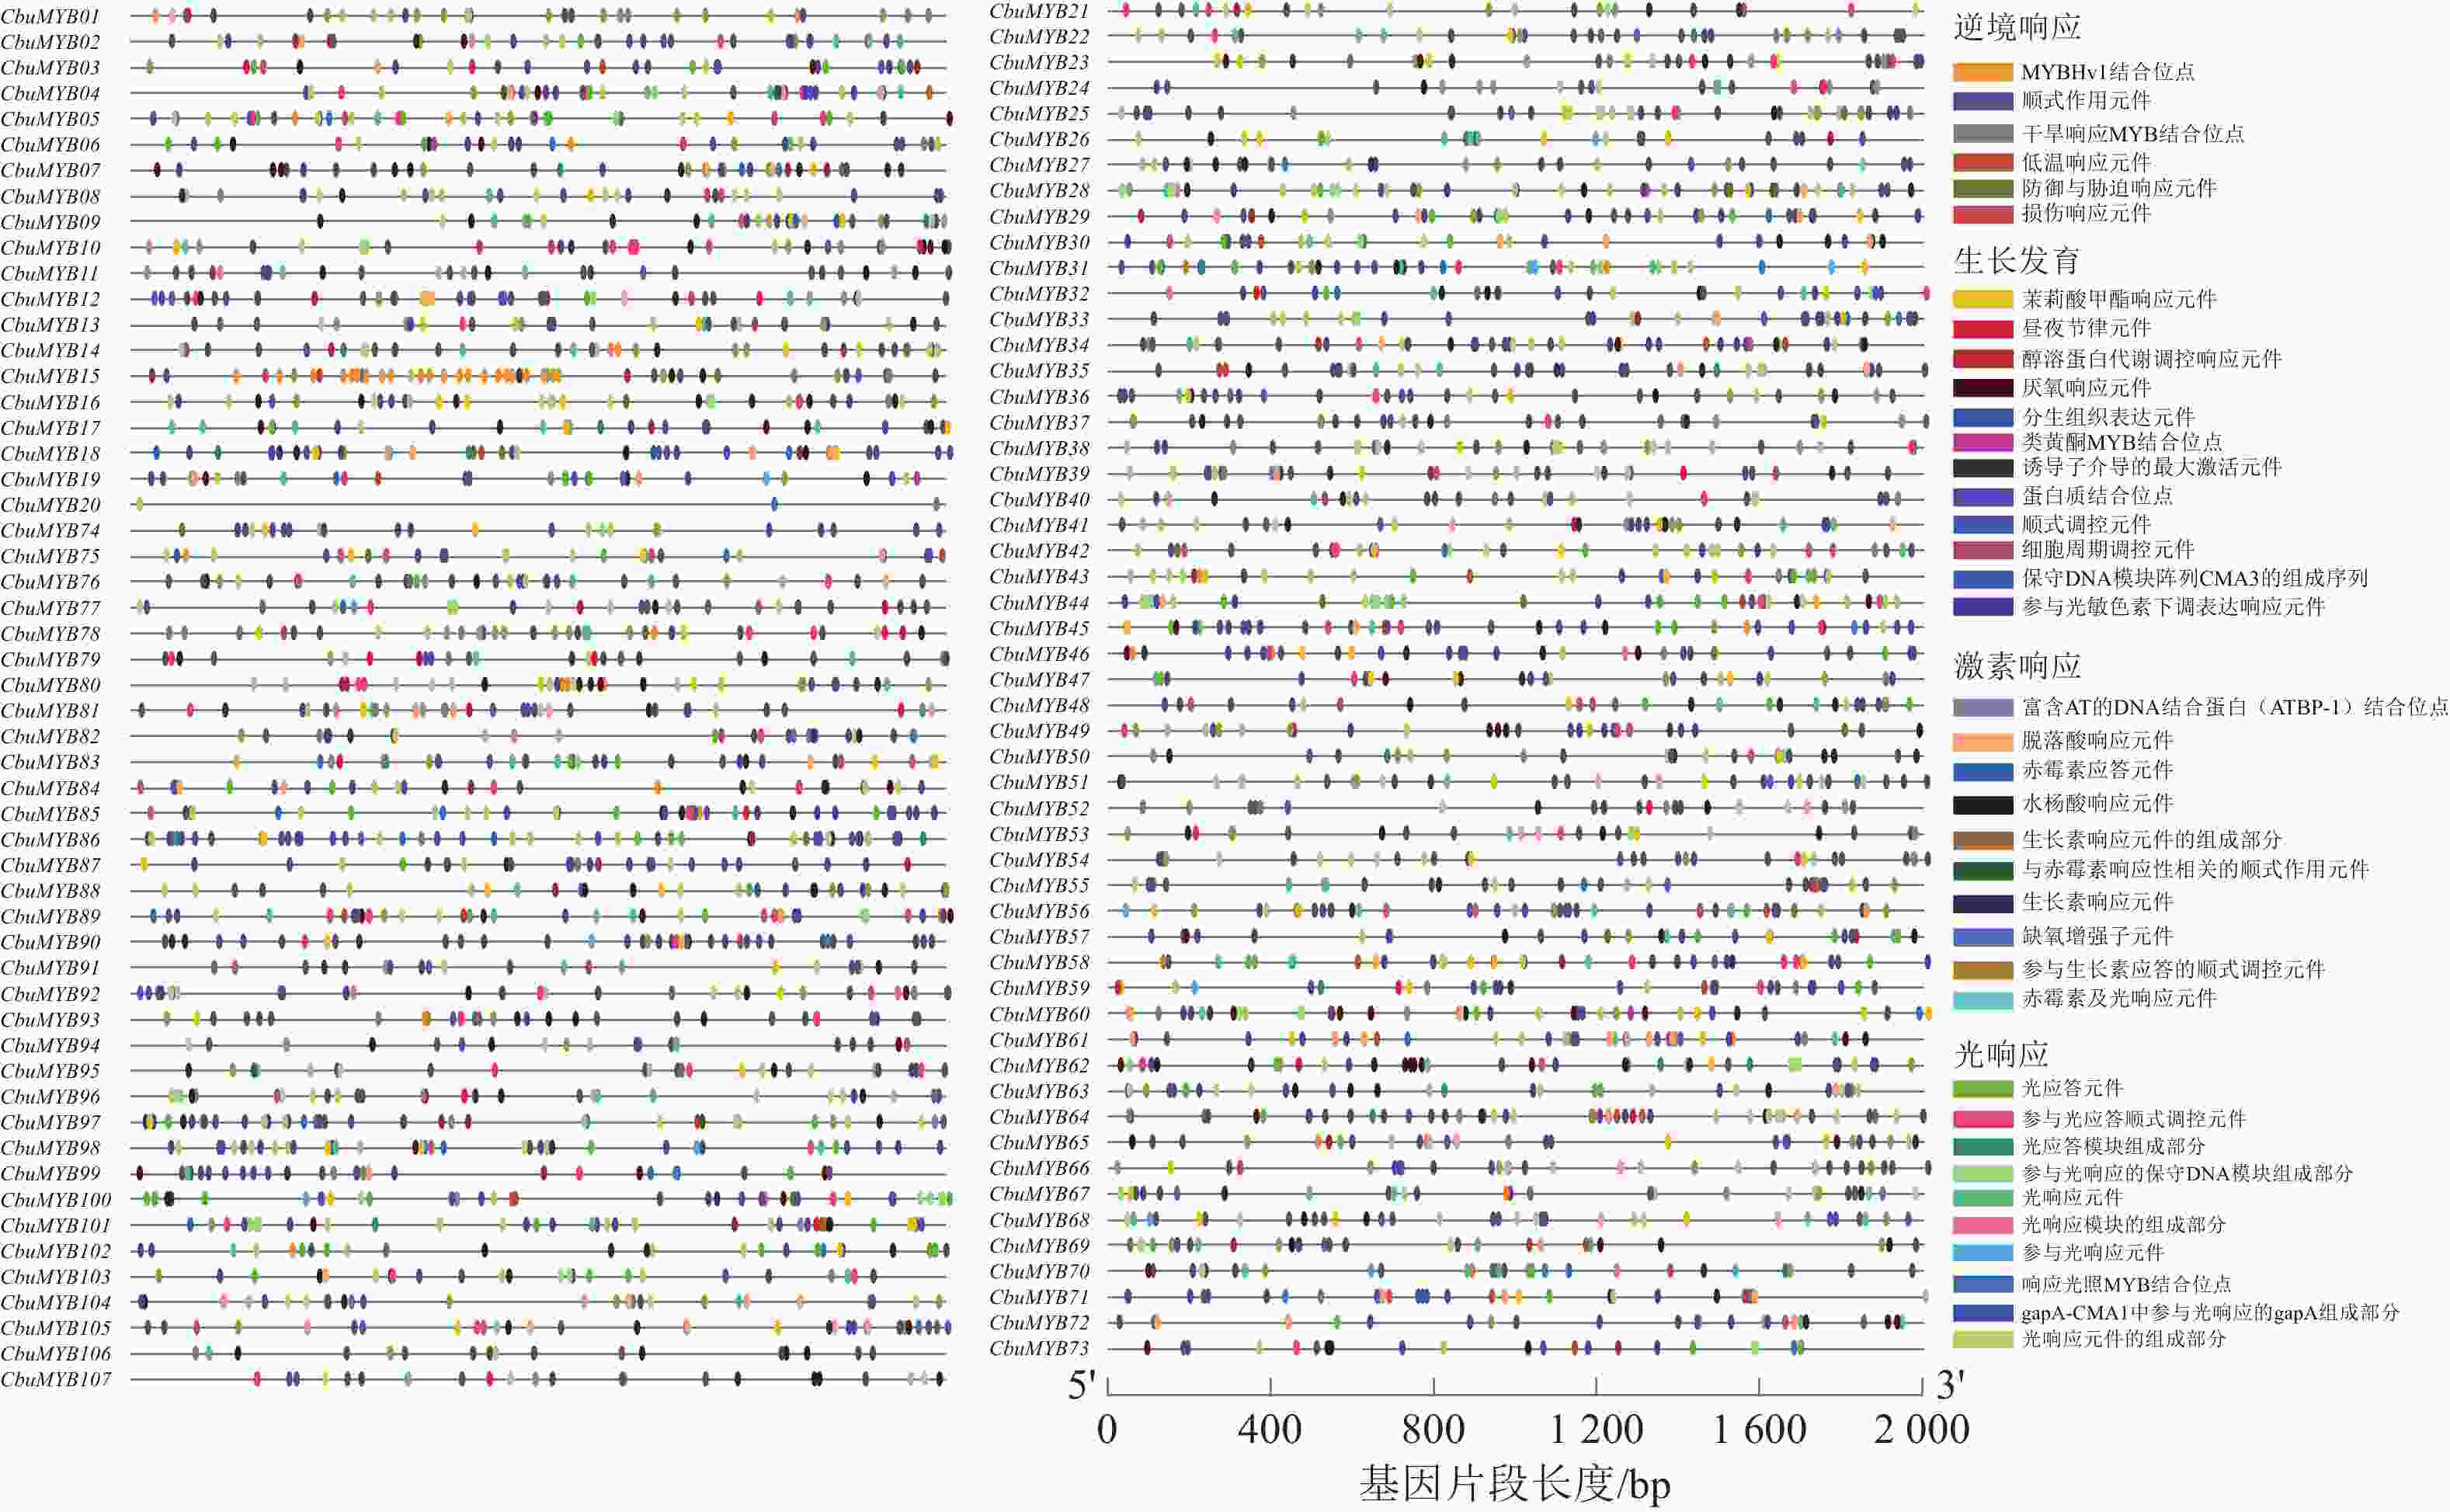
图 1 CbuMYB基因家族成员顺式作用元件预测分析
Figure 1. Prediction of cis-acting elements in the promoter regions of CbuMYB gene family members
-
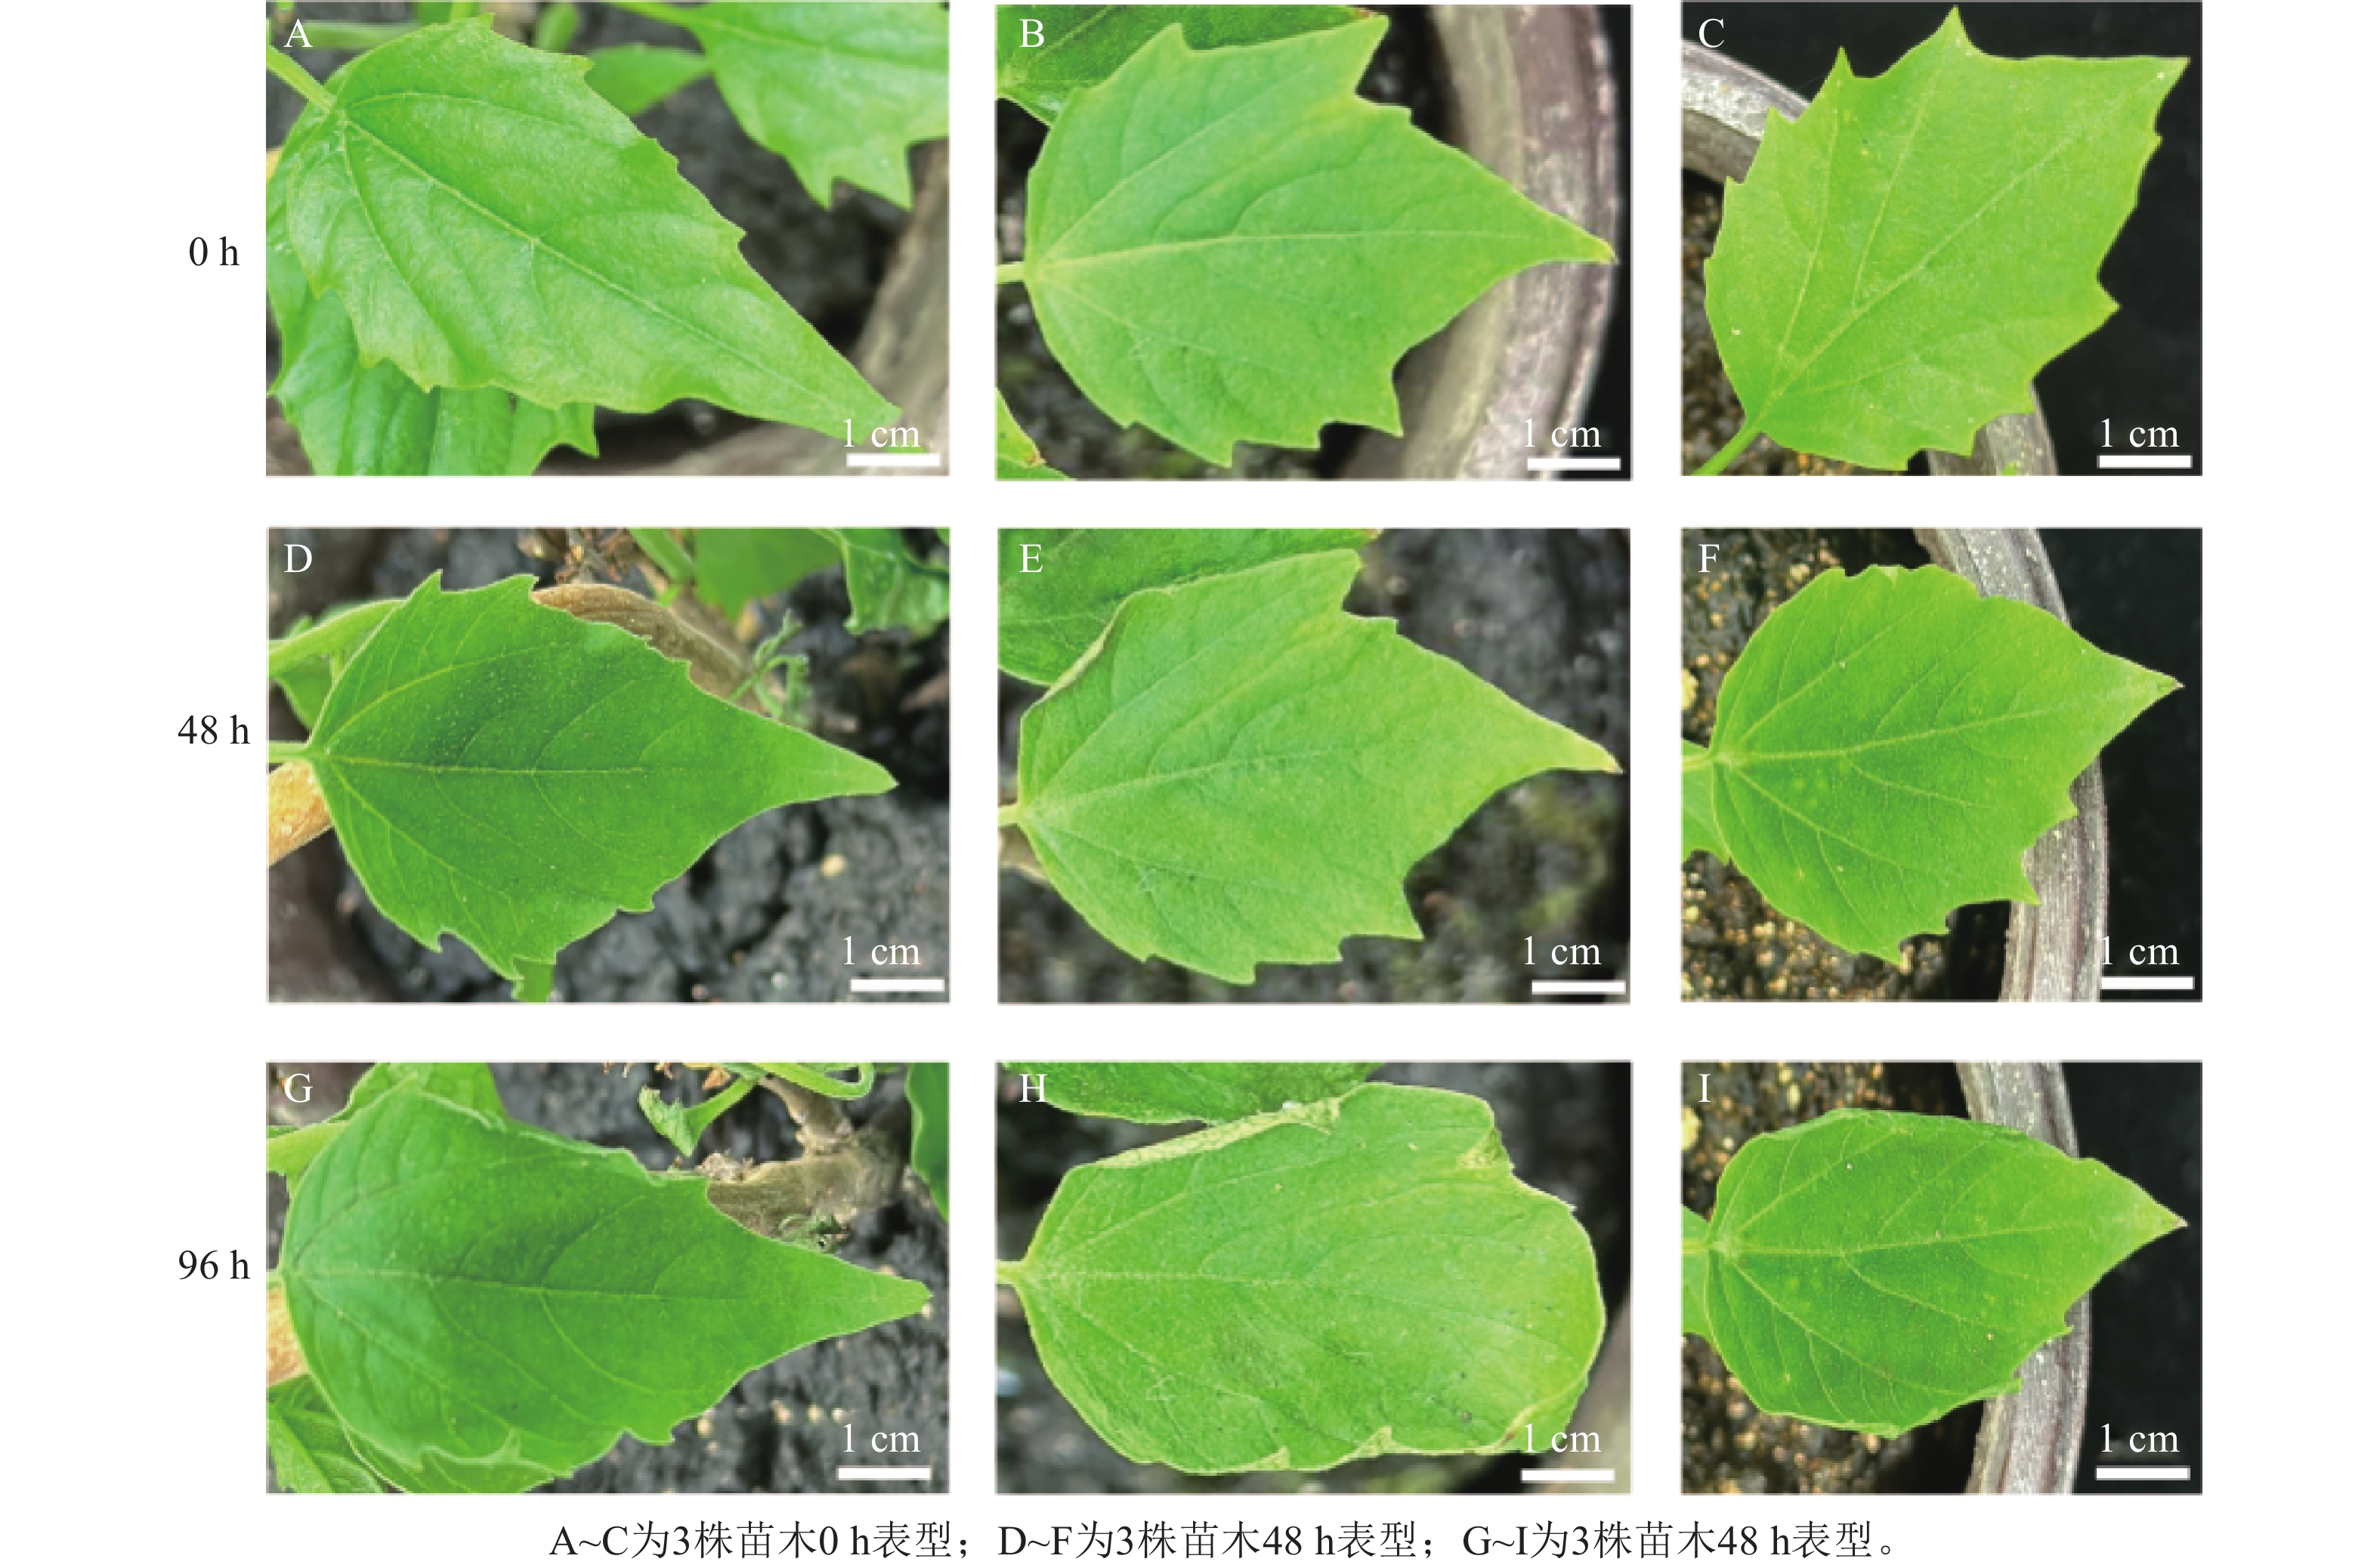
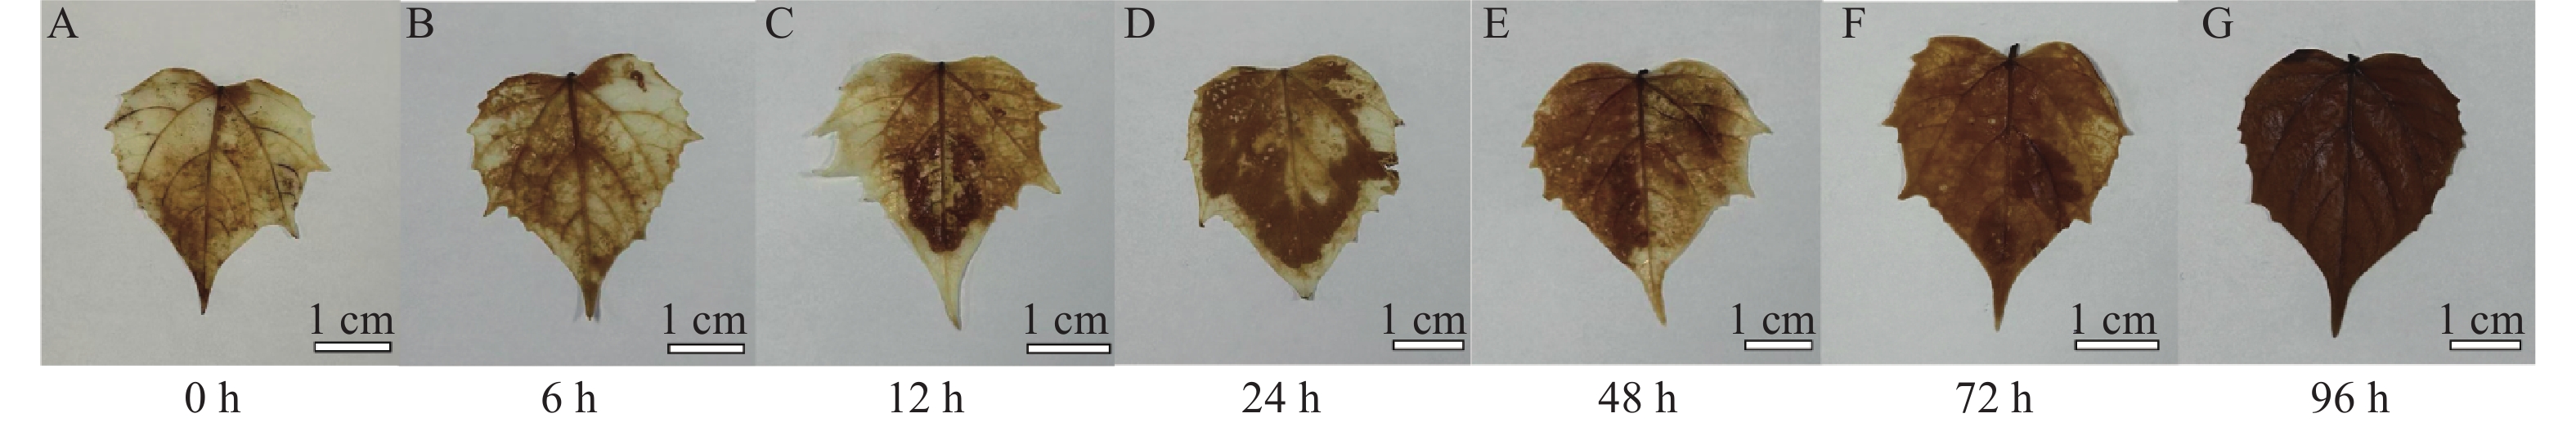
对盐胁迫处理后不同时期楸树叶片的表型变化(图2)及DAB染色结果(图3)观测发现:与盐胁迫0 h相比,盐胁迫48 h后叶片开始萎蔫、边缘开始出现卷曲,96 h后叶片卷曲现象更加严重。
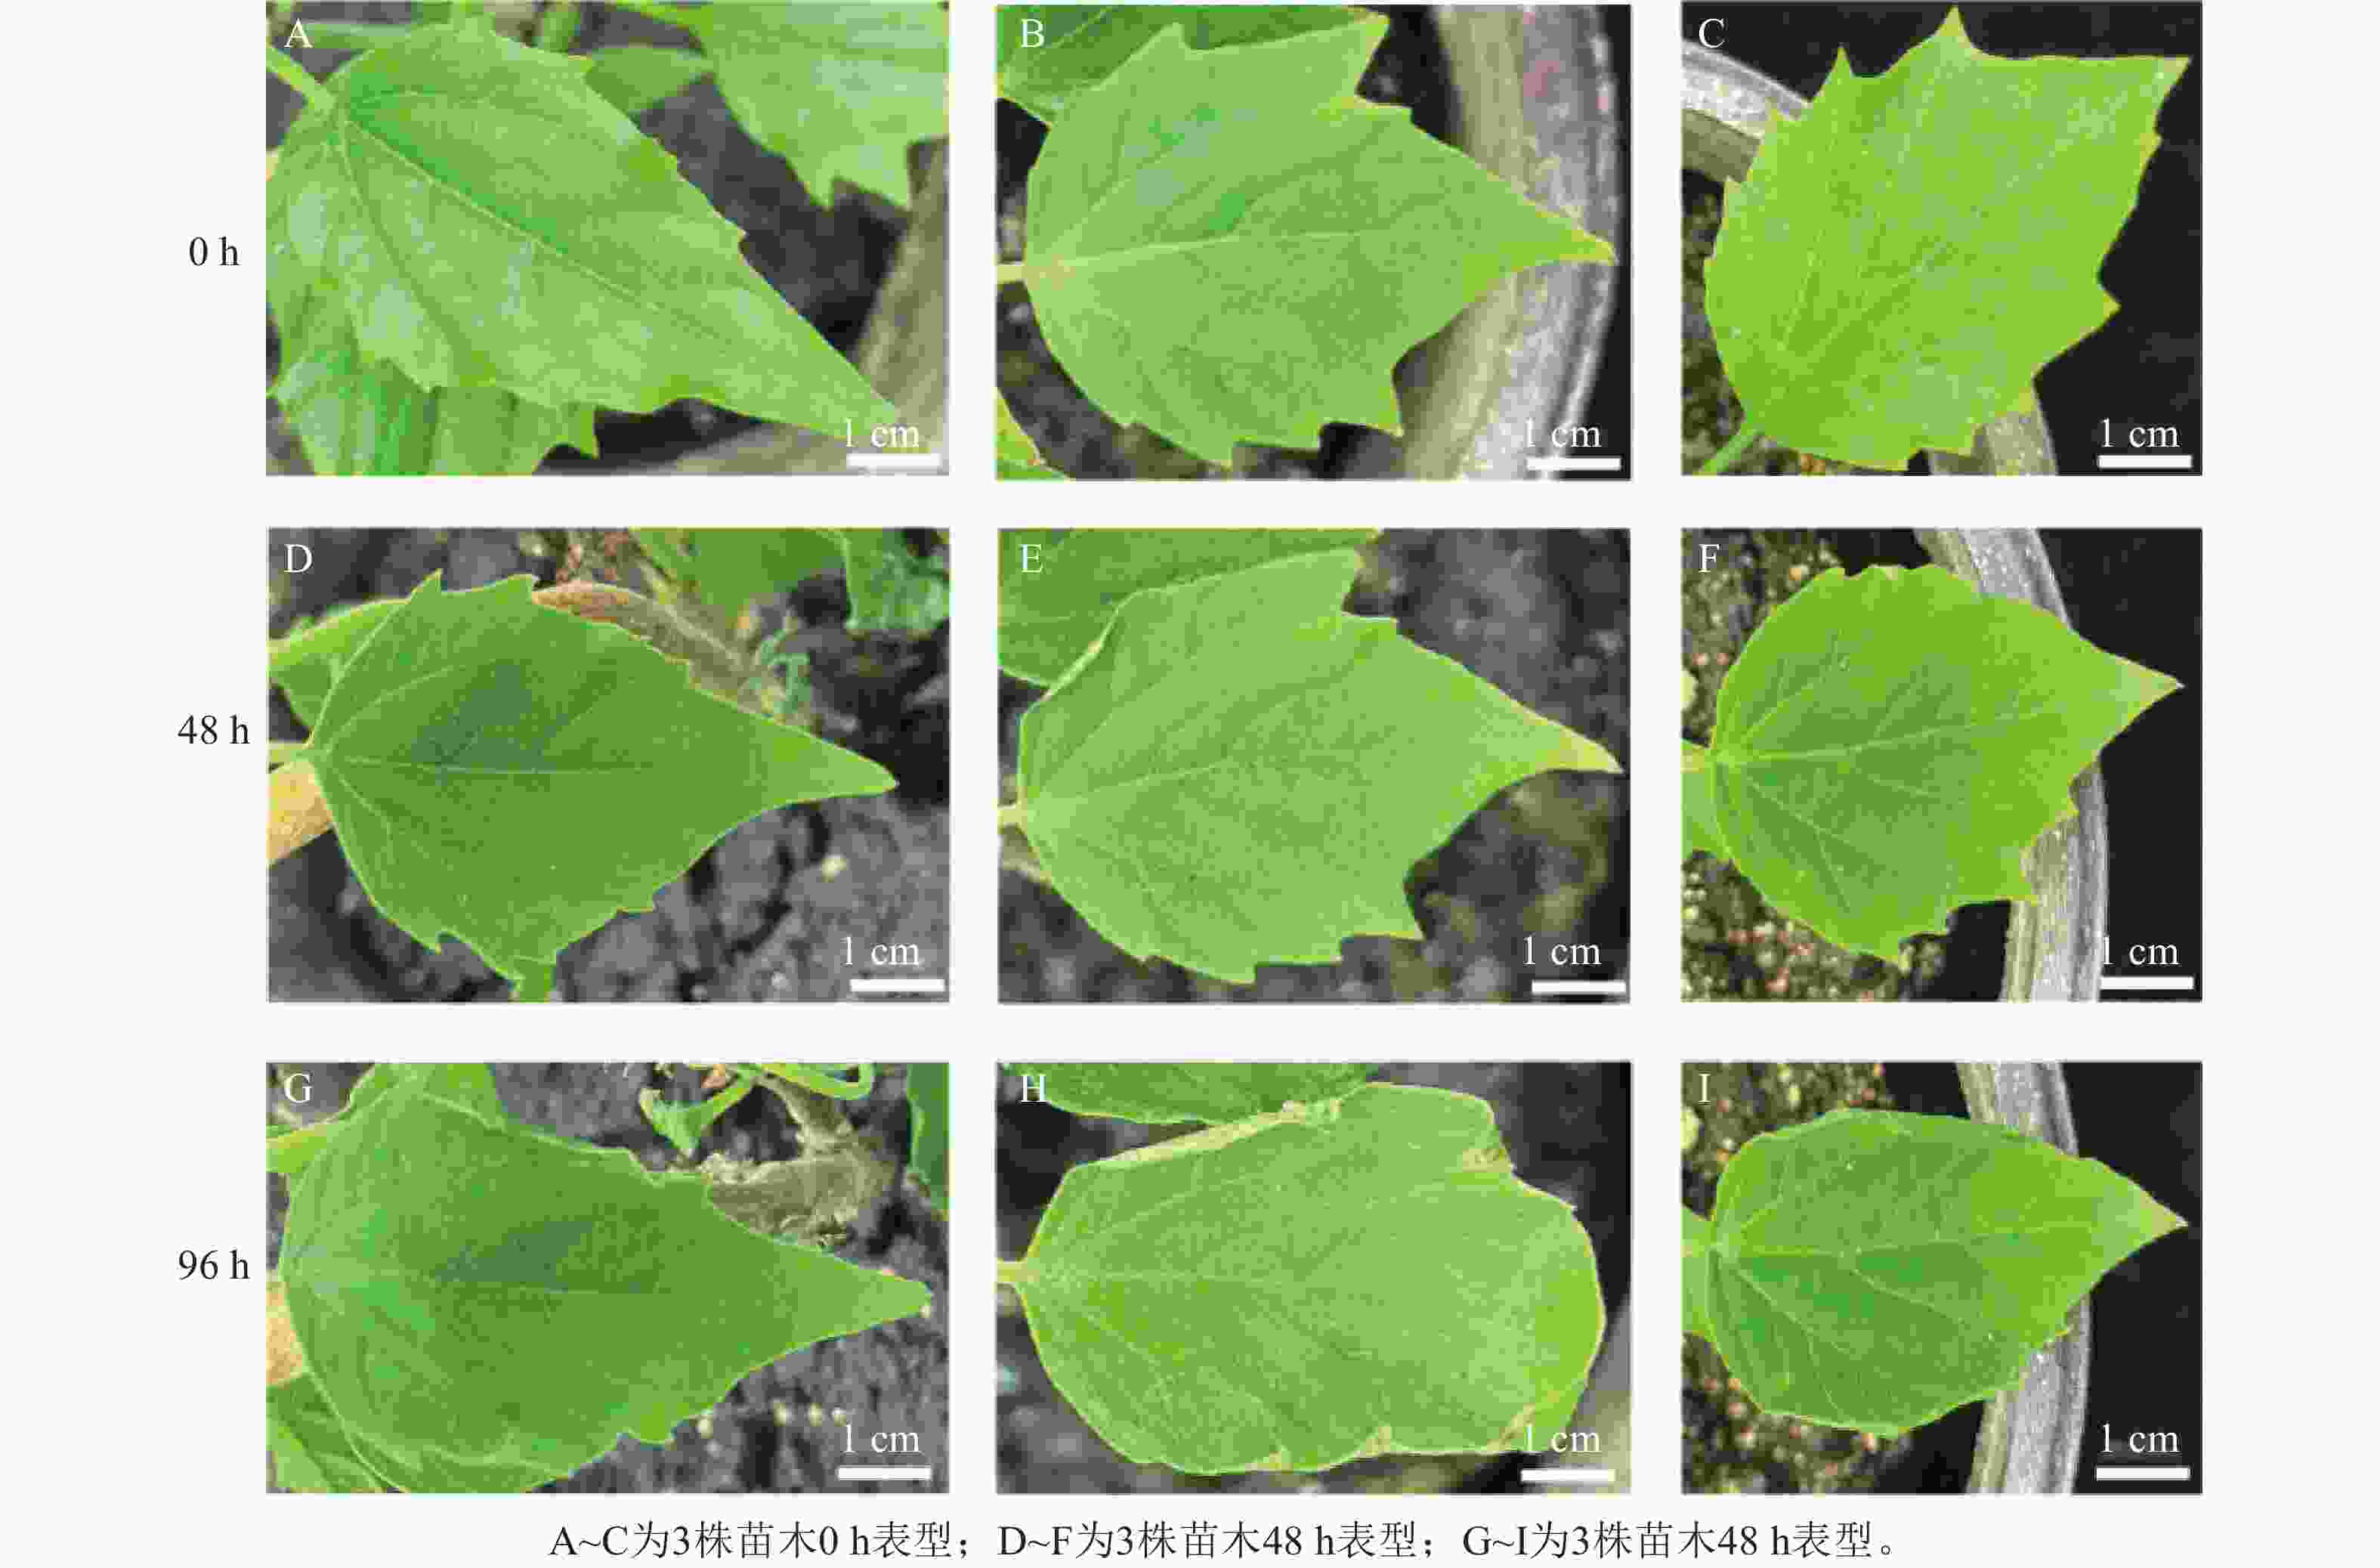
图 2 楸树良种‘9-1’盐胁迫不同时期的表型观测
Figure 2. Phenotypic observation of C. bungei superior variety ‘9-1’ under salt stress at different time periods
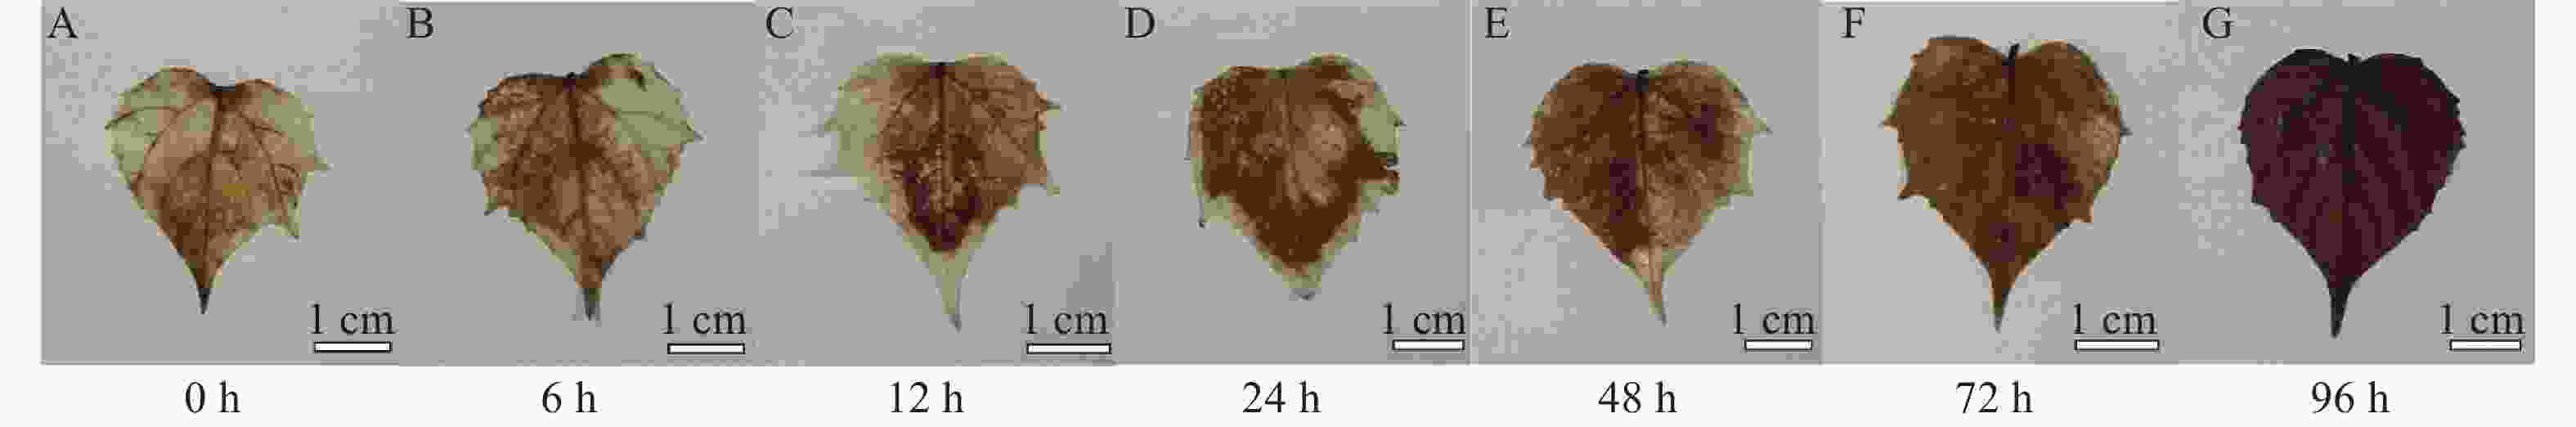
图 3 盐胁迫下楸树良种‘9-1’叶片活性氧积累的DAB染色检测
Figure 3. DAB staining detection of reactive oxygen species accumulation in leaves of C. bungei superior variety ‘9-1’ under salt stress
DAB染色结果显示:盐胁迫处理6~12 h后,叶片局部开始出现分散的浅褐色点状沉积,但整体着色程度较轻;处理至24 h时,叶片褐色染色区域显著扩大,呈现不规则斑块状分布,颜色深度明显加深,由浅褐色转为棕褐色;盐胁迫48 h后,褐色沉积面积急剧扩展,且褐色深度进一步加深至黑褐色;处理至72 h时,褐色区域已覆盖叶片大部分面积,仅叶片边缘残留少量黄绿色组织;至96 h时,整个叶片被深褐色至黑褐色均匀覆盖,几乎观察不到正常组织。表型与活性氧结果均表明:楸树在盐胁迫48 h开始受到损伤,并随时间延长而程度加深。
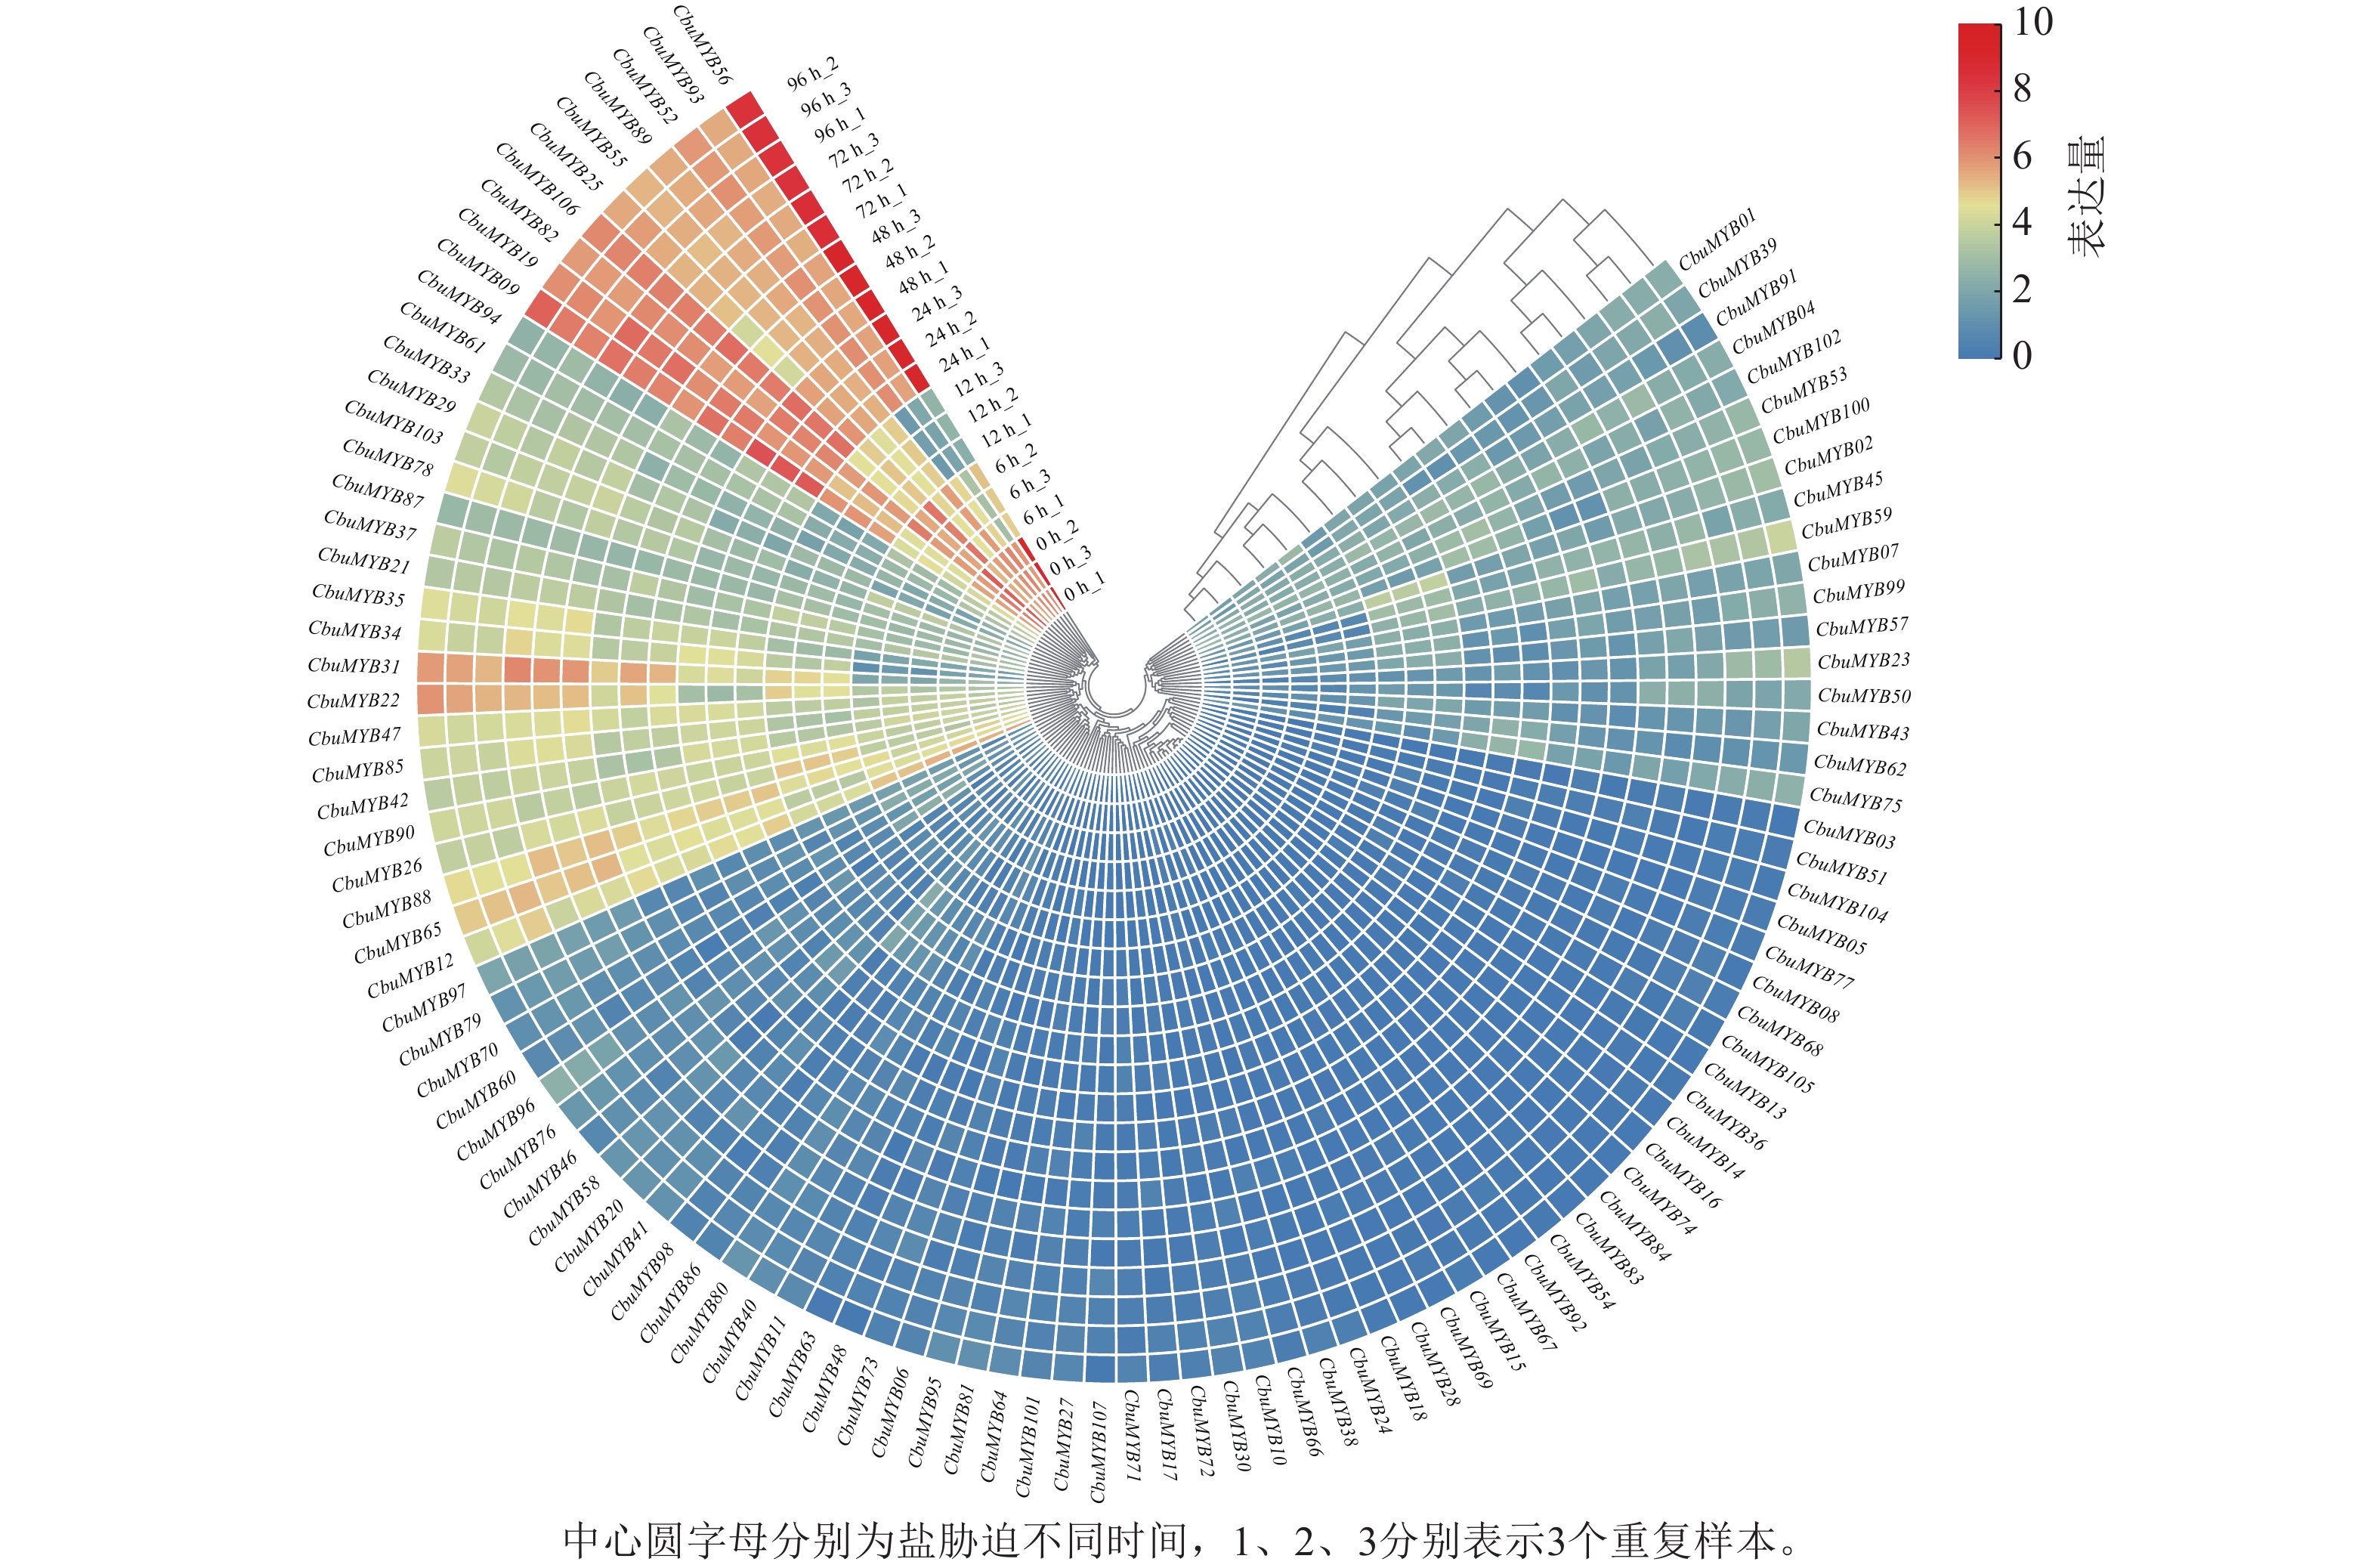
基于楸树盐胁迫处理(0、6、12、24、48、72、96 h)转录组数据,利用TBtools对MYB家族基因成员进行聚类分析。由图4表明:楸树31个MYB基因成员参与盐胁迫反应,其中CbuMYB9、CbuMYB19等10个成员是楸树盐胁迫响应的主要调控基因;而CbuMYB12、CbuMYB21、CbuMYB22等21个成员在盐胁迫下表达量虽上调,但差异程度不及CbuMYB9、CbuMYB19等10个成员。
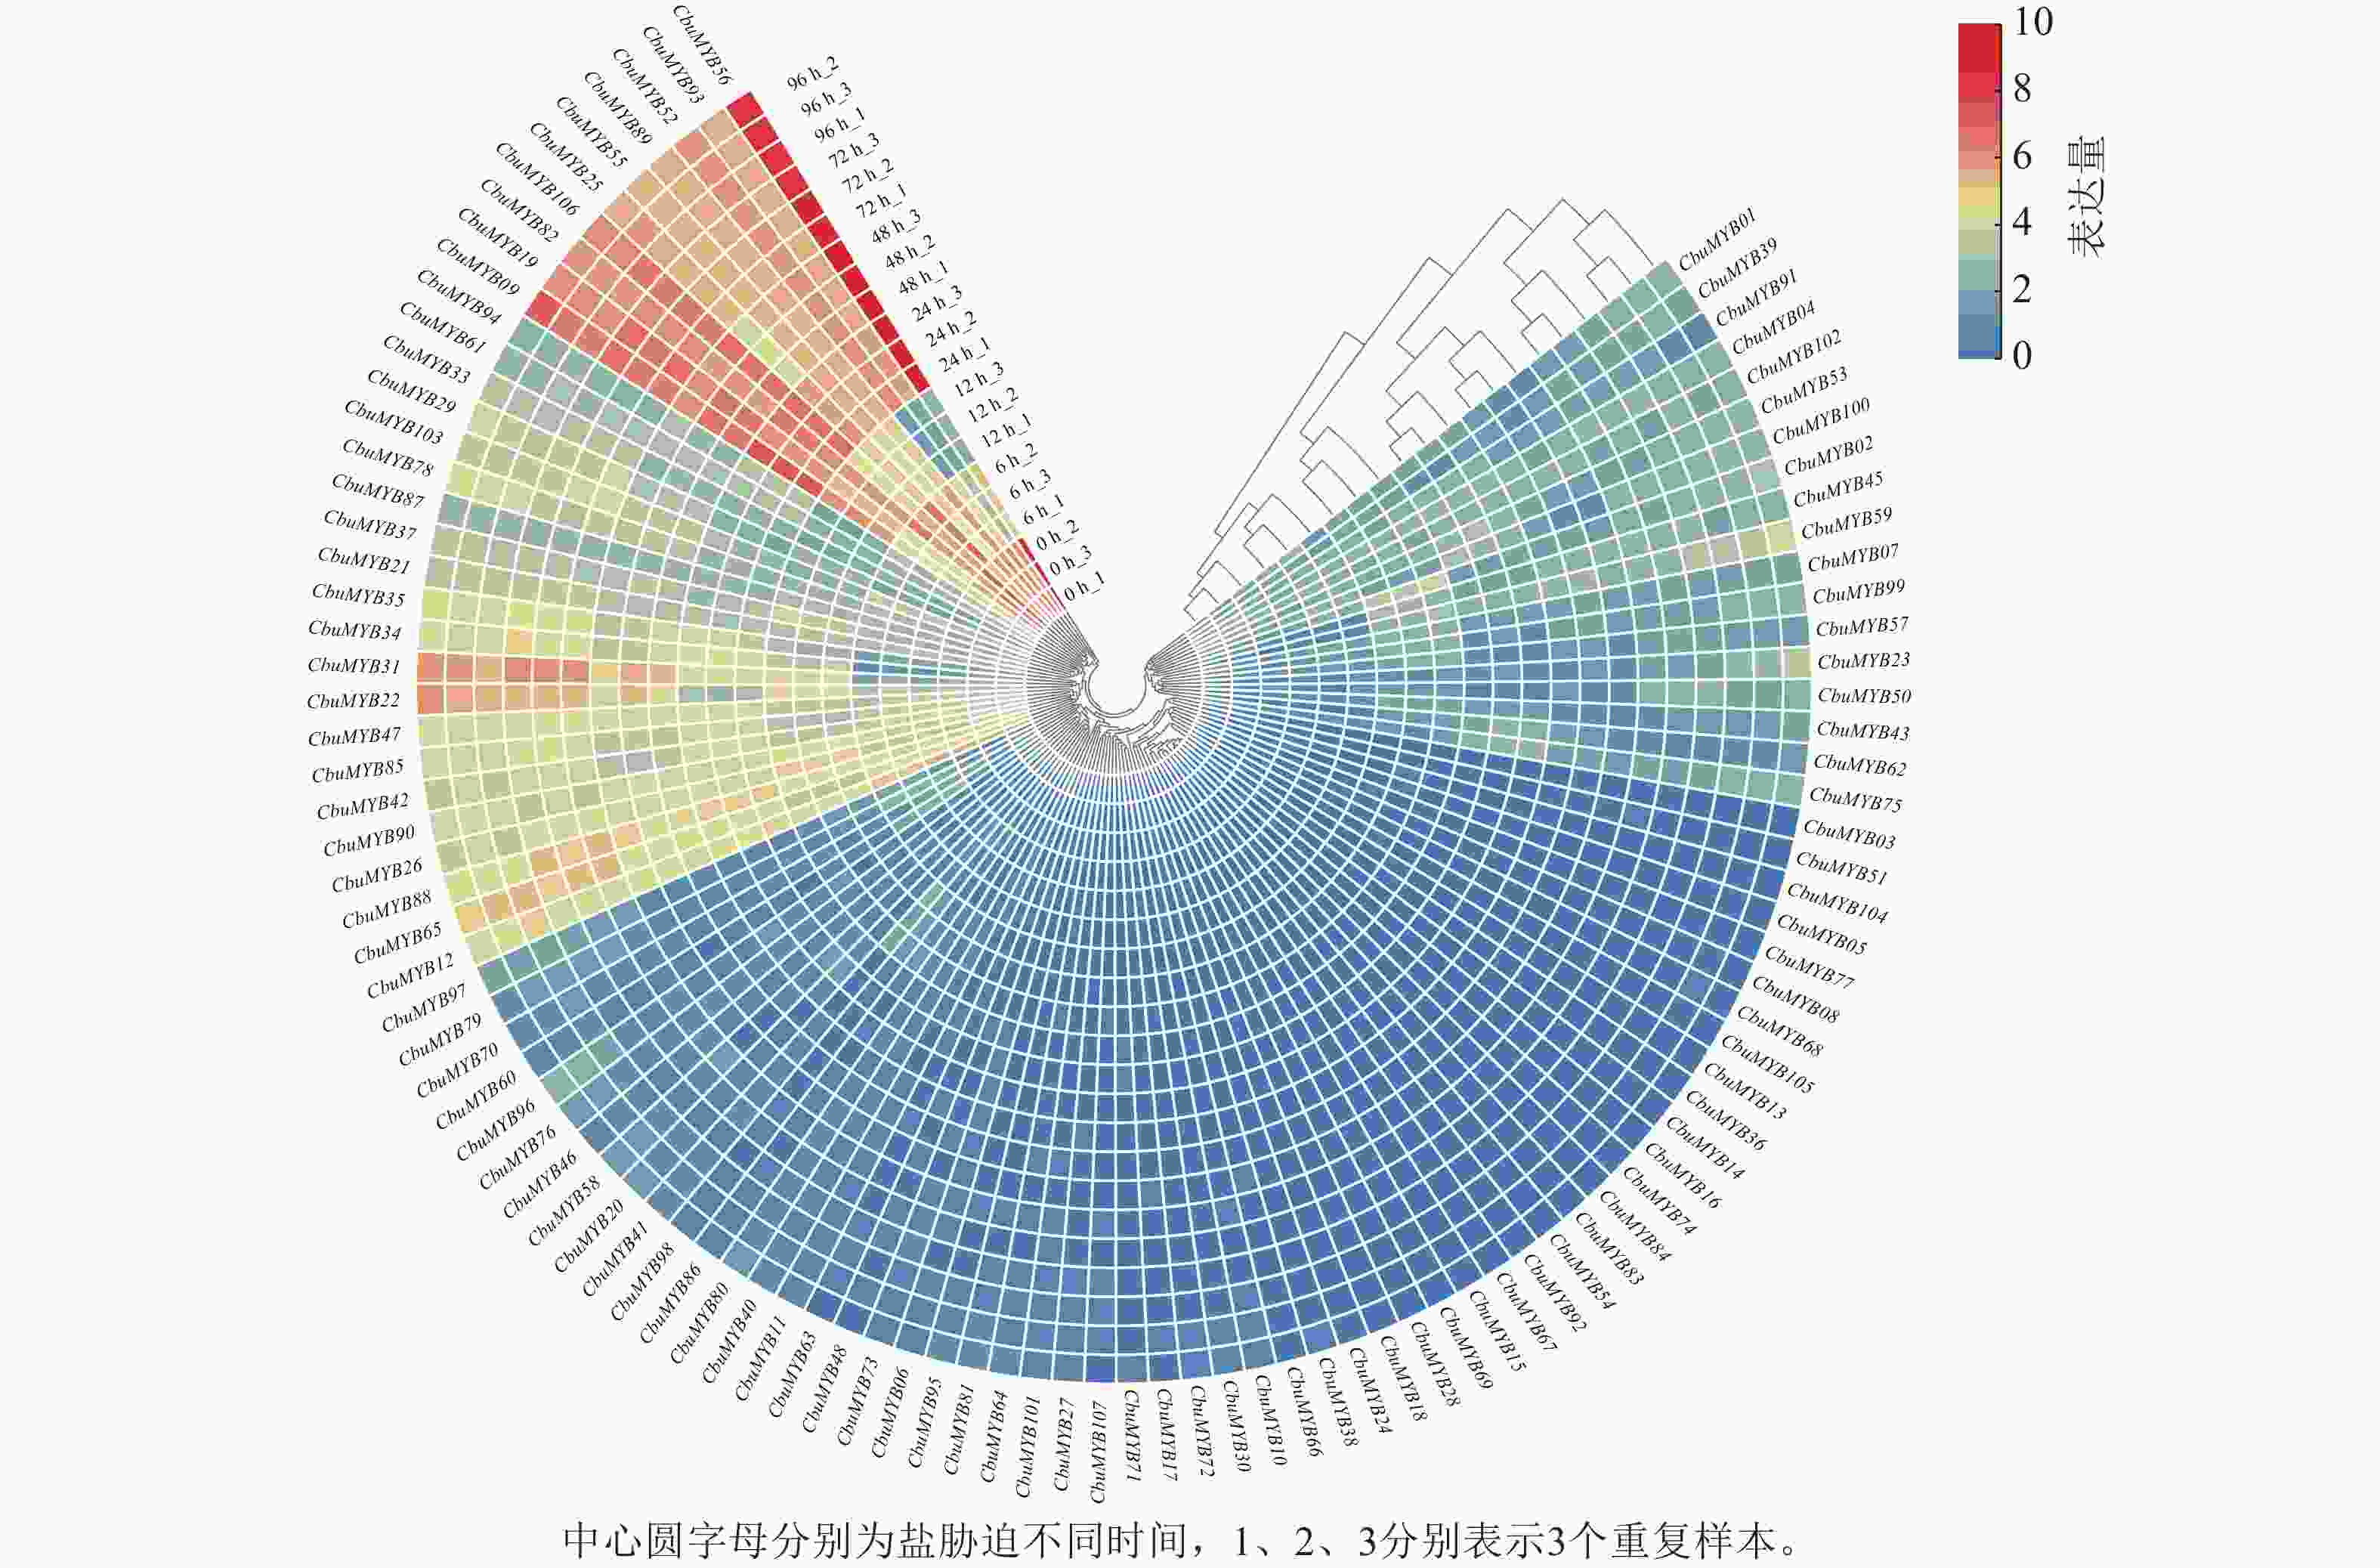
图 4 盐胁迫下CbuMYB基因家族的表达量热图分析
Figure 4. Heat map analysis of the expression levels of CbuMYB gene family under salt stress
进一步时序表达分析显示:CbuMYB52、CbuMYB56与CbuMYB93在盐胁迫6、12 h后表达量下调,至24 h恢复至胁迫初期水平,其可能通过抑制下游靶基因表达,负向调控楸树对盐胁迫的响应。而CbuMYB25在盐胁迫后6 h表达量上调,CbuMYB9在盐胁迫12 h后表达量上调,CbuMYB19在盐胁迫72 h表达量上调,可能通过激活下游抗逆相关基因,对楸树盐胁迫应答进行正向调控。
-
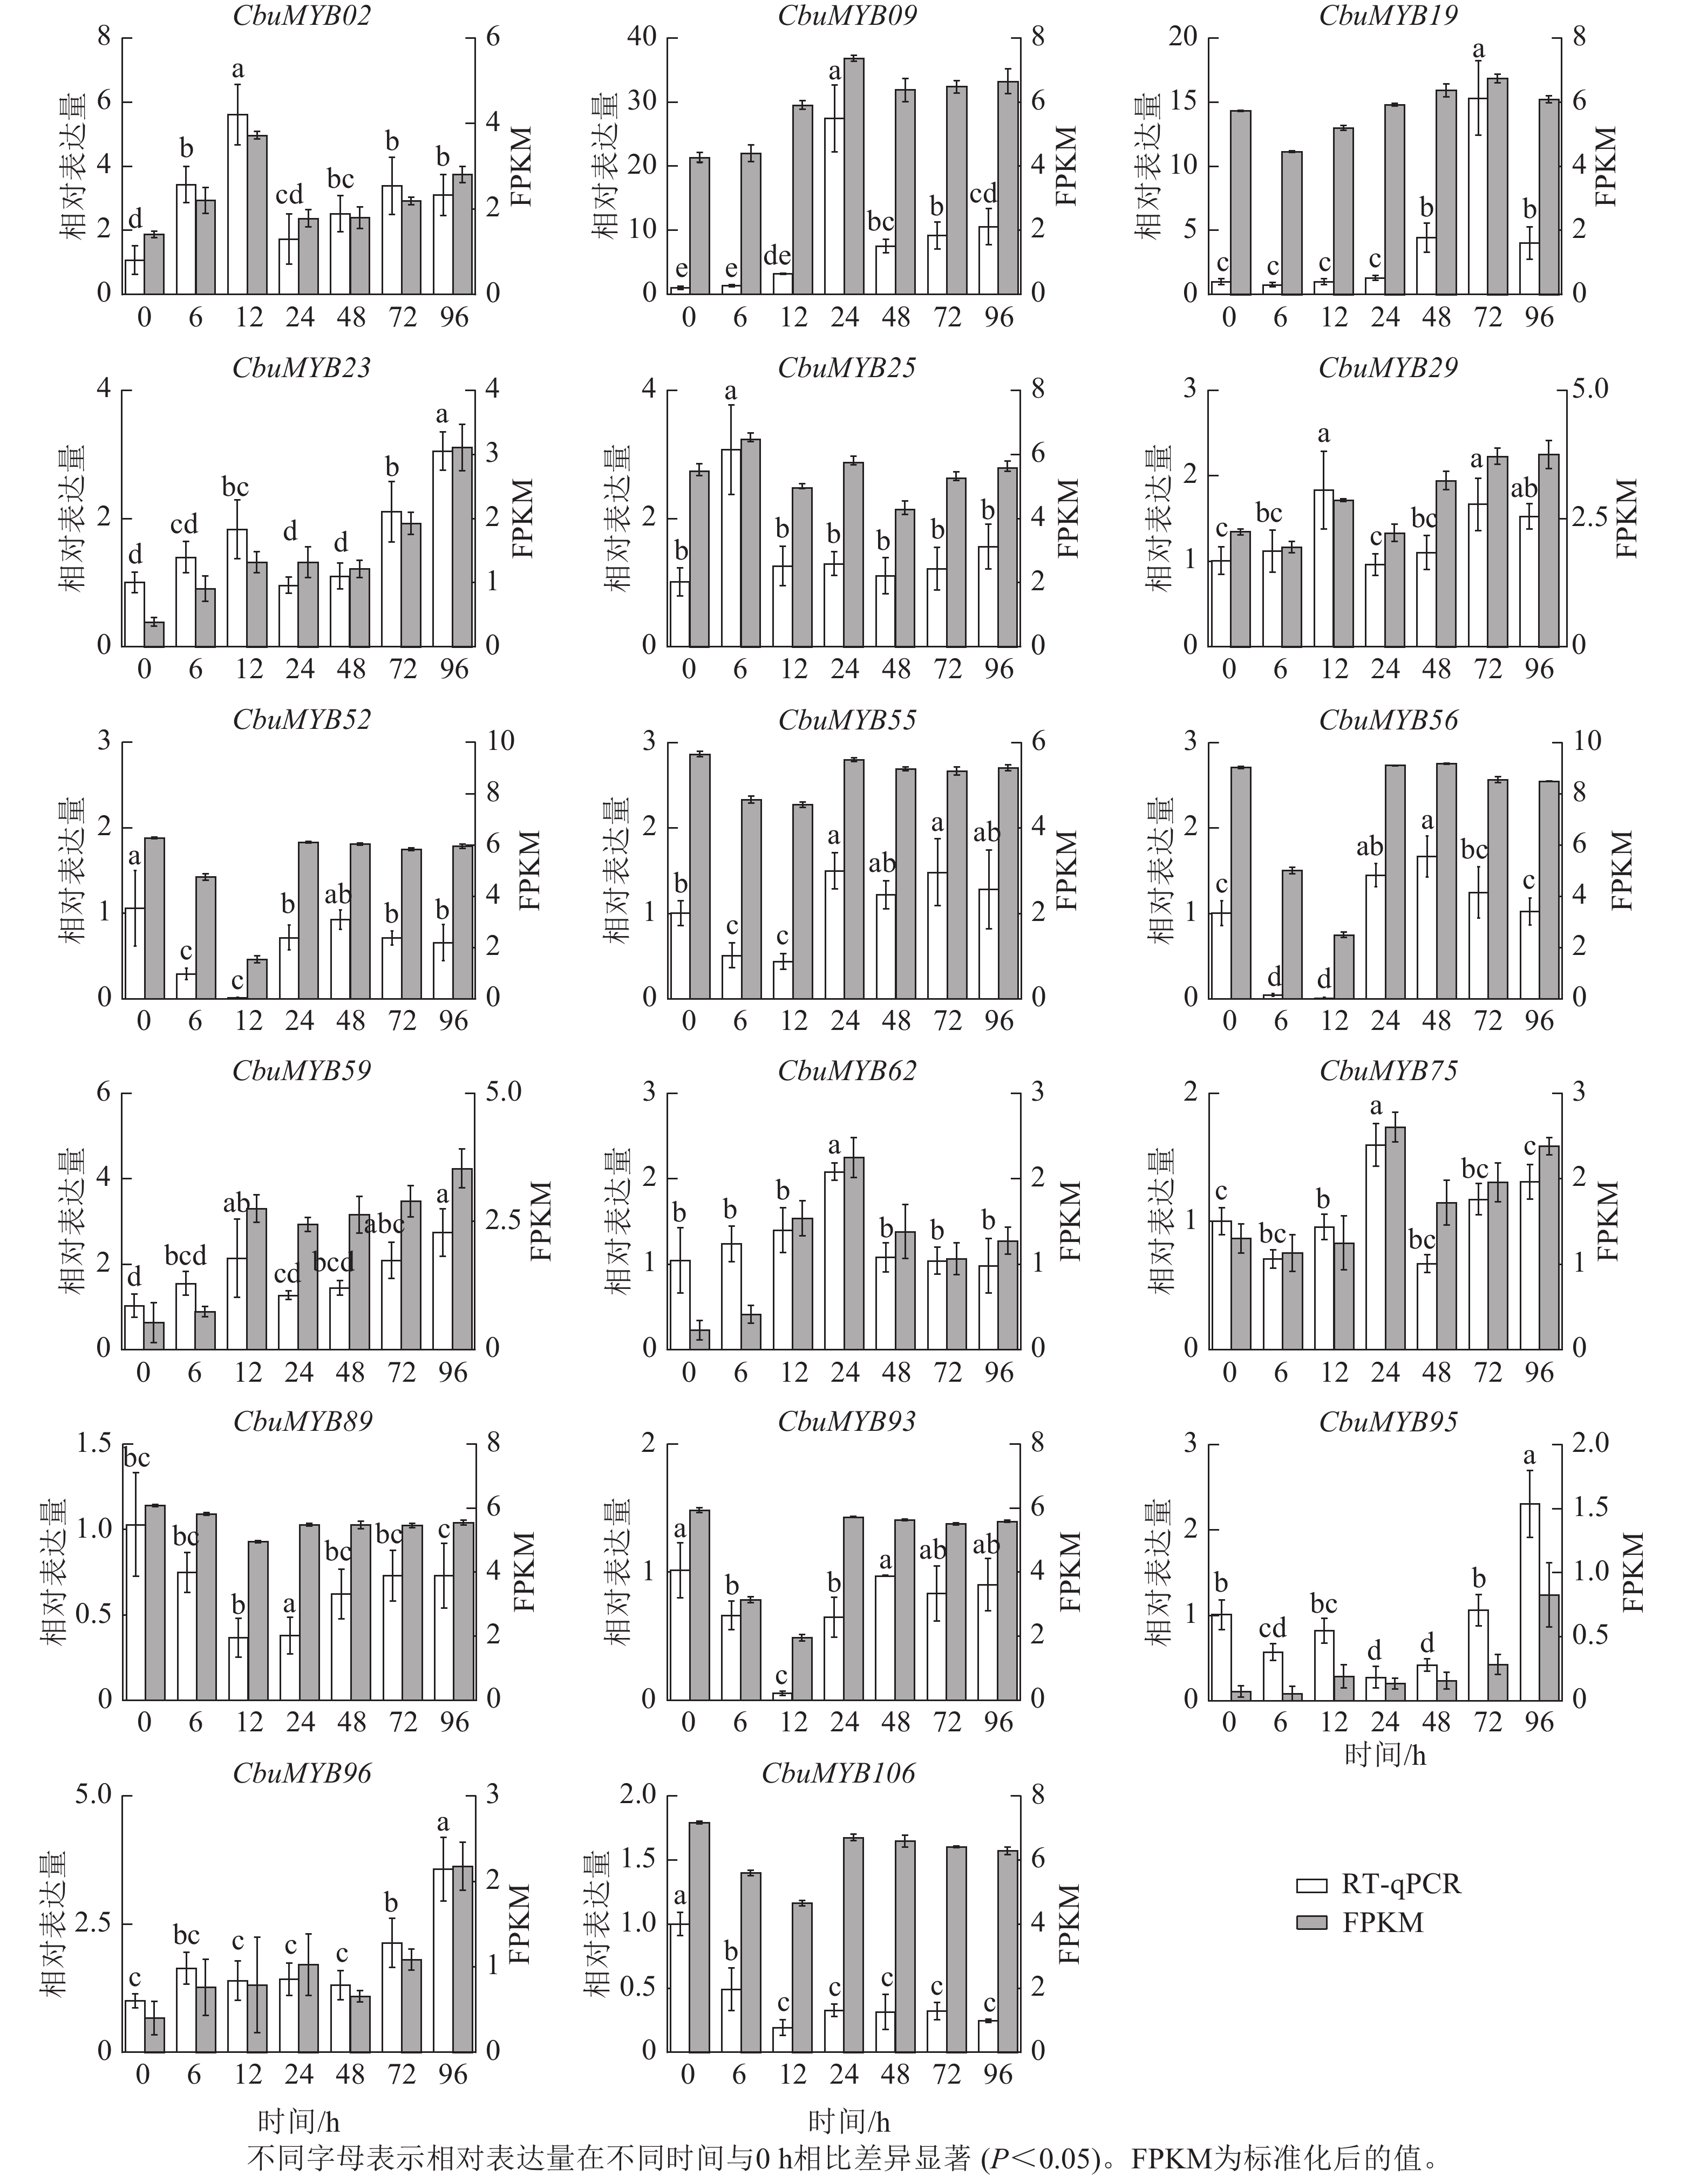
为验证转录组数据可靠性,对17个CbuMYB家族成员进行RT-qPCR分析。结果显示基因荧光定量表达变化趋势与转录组测序(RNA-Seq)结果基本一致(图5)。通过RT-qPCR分析发现:在胁迫初期(6~12 h),CbuMYB52、CbuMYB55、CbuMYB56、CbuMYB93、CbuMYB106表达量与0 h相比显著下调(P<0.05),仅CbuMYB02、CbuMYB25表达量呈现上调表达;在胁迫后期(72~96 h),CbuMYB19、CbuMYB23、CbuMYB95、CbuMYB96表达量与0 h相比上调表达。表明在盐胁迫早期楸树MYB基因可能以下调表达为主,而后期以上调表达为主。不同CbuMYB家族成员在盐胁迫过程中表达量变化存在差异,CbuMYB09、CbuMYB19和CbuMYB56在盐胁迫下差异表达较为明显,其中CbuMYB09在24 h表达量与0 h相比上调30倍,CbuMYB19在72 h表达量上调15倍;而CbuMYB56在6、12 h表达量下调,分别下调为0 h的26、28倍。
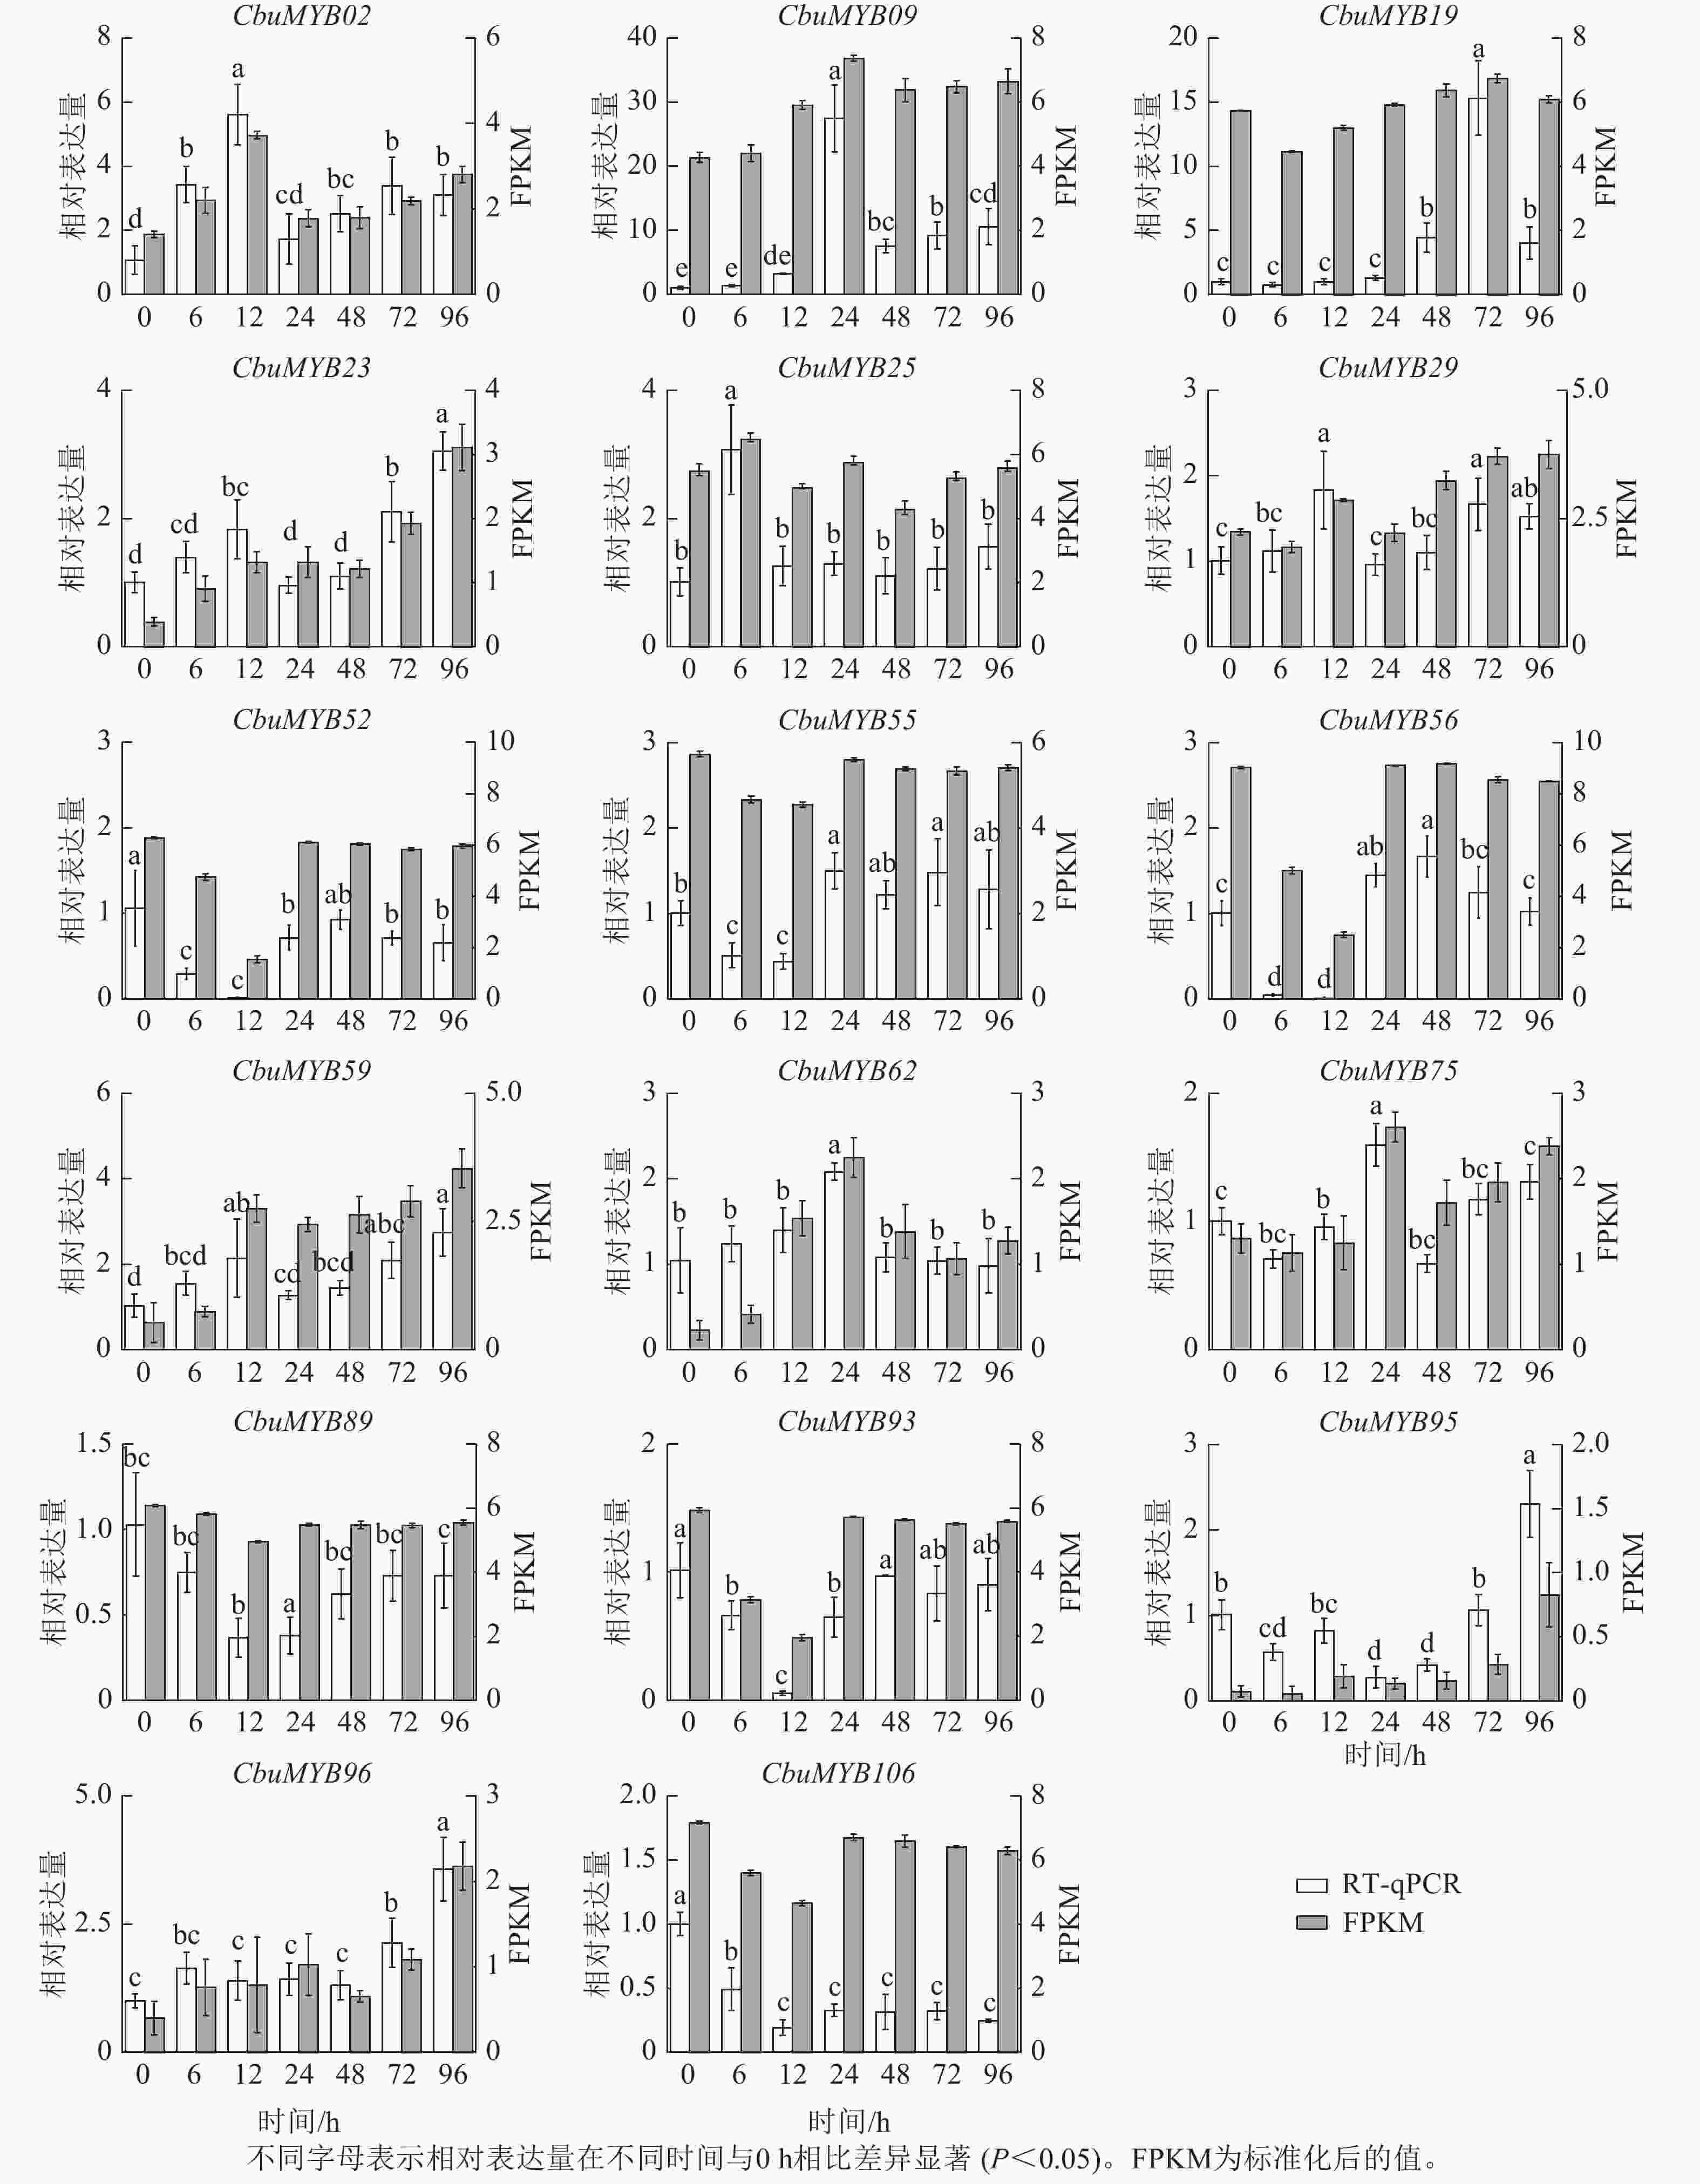
图 5 CbuMYB基因家族成员的RT-qPCR验证
Figure 5. Experimental verification of CbuMYB gene family members by RT-qPCR
-
本研究对楸树MYB基因家族进行了全基因组鉴定与盐胁迫应答分析,以拟南芥125个R2R3-MYB成员为参照,从楸树基因组中鉴定出107个家族成员,命名为CbuMYB01~CbuMYB107。与拟南芥(125个)、杨树Populus spp.(>200个)、水稻Oryza sativa (>100个)等物种相比,楸树的107个MYB成员数量相对较少,且全部属于R2R3-MYB亚家族[26−28]。保守基序分析显示:Motif 1存在于104个成员中,是家族中最保守的基序,而CbuMYB25、CbuMYB89、CbuMYB106仅含Motif 5,这种基序缺失现象在其他植物的MYB家族中亦有报道[29]。楸树CbuMYB共包含10个Motif和8个保守结构域,各成员外显子与内含子分布不均但结构高度保守,这一特征与三七Panax notoginseng和紫花槭Acer pseudosieboldianum的全基因组鉴定结果相似[30−31]。有研究发现:23个CbuMYB基因不含内含子,表明无内含子基因通常与快速应激响应相关,可在胁迫条件下实现快速表达[32]。因此,无内含子CbuMYB成员(如CbuMYB09、CbuMYB19)在盐胁迫后期显著上调表达,可能由于其简洁的基因结构,能够快速响应胁迫信号。系统进化树将CbuMYB分为12个亚族,其中第2亚族成员最多,第3亚族最少,而小麦Triticum durum和麻疯树Jatropha curcas中分别划分为10和19个亚族[33−34],表明不同植物中MYB家族的扩张模式和功能分化程度存在差异。同一亚族内CbuMYB与AtMYB成员相似度高达0.8,暗示它们可能执行相似的生物学功能。启动子区顺式作用元件预测显示:启动子区富含与逆境响应、生长发育、激素应答及光响应等相关的顺式作用元件。其中105个CbuMYB成员含有逆境响应元件,96个含有生长发育元件,85个含有光响应元件。这一结果强调了CbuMYB基因家族在楸树应对多种环境胁迫(干旱、低温、高盐)中发挥广泛作用[35],在逆境响应元件中,非生物胁迫响应元件尤为突出,表明楸树MYB基因可能通过“自身调控与激素信号交叉调控”的方式参与盐胁迫响应,这一结论与玉米Zea mays[36]、桉树Eucalyptus grandis[37]的研究结果相似。
盐胁迫叶片表型与DAB染色结果清晰地揭示了楸树叶片损伤的时间进程。0~24 h仅出现分散的浅褐色斑点,活性氧积累尚不严重;48 h叶片开始萎蔫,DAB染色转为棕褐色;72~96 h损伤急剧加重,叶片几乎被黑褐色覆盖。这一时间节点与转录组中关键CbuMYB基因的表达变化高度吻合。目前已有研究表明:大多数MYB基因在植物盐胁迫早期做出响应,而后期响应的研究较少。这种“早期转录冲击”策略在拟南芥、杨树等多种植物中均有报道,被认为是植物界保守的应急响应模式[38−39]。在胁迫初期(6~12 h),CbuMYB52、CbuMYB56、CbuMYB93等成员表达量显著下调,这一现象表明它们可能作为负调控因子,盐胁迫早期迅速下调这些抑制因子,可快速“去抑制”下游正调控基因,从而启动耐盐反应[40−41]。与本研究结果不同的是,白桦Betula platyphylla BpMYB88在盐胁迫早期(6~24 h)启动下游基因表达[42],而楸树早期以下调为主,体现了物种间响应策略的差异。CbuMYB25在6 h、CbuMYB09在12 h显著上调,表明它们是盐胁迫的中期响应正调控因子。尤其是CbuMYB09在24 h时表达量较对照上调30倍,是本研究上调幅度最大的基因。胁迫后期(72~96 h),CbuMYB19、CbuMYB23、CbuMYB95、CbuMYB96表达量显著上调,其中CbuMYB19上调15倍。此时叶片已出现严重活性氧积累和组织损伤,这些后期上调基因可能参与胁迫损伤的修复过程及衰老诱导或程序性细胞死亡的调控[43]。而棉花Gossypium spp.在NaCl处理144 h后叶片才开始出现轻微卷曲脱水,且MYB基因表达较为显著[44]。本研究楸树在96 h内出现强烈响应,可能反映了楸树作为木本植物对盐胁迫更为敏感的特性。处理后期(72~96 h) CbuMYB基因显著上调,与棉花后期上调的研究结果一致[44]。推测其可能参与激活后期的适应性反应,如抗氧化防御或次生代谢途径(木质素、类黄酮合成),以此抵御累积的离子毒害与氧化损伤[45−46]。
-
经全基因组鉴定,楸树含107个R2R3-MYB蛋白,包含10个Motif和8个保守结构域,分属12个系统发育亚族(第2亚族最大)。启动子区域富含逆境、激素等响应元件,105个成员含逆境响应元件。盐胁迫下叶片48 h开始萎蔫,96 h损伤严重。时序表达阶段性明显:胁迫早期(6~12 h) CbuMYB52、CbuMYB56、CbuMYB93受到抑制,胁迫中期(12~24 h) CbuMYB09骤升30倍,胁迫后期(72~96 h) CbuMYB19上调15倍,在72 h出现单一诱导峰。本研究发现CbuMYB家族成员之间具有较高的保守性,揭示了楸树R2R3-MYB“早期下调、后期上调”的盐胁迫响应模式,同时,筛选的关键候选基因可为楸树耐盐育种提供理论依据。
全文HTML
1.1. 供试材料与盐胁迫处理
1.2. CbuMYB基因家族全基因组鉴定及生物信息学分析
1.3. 转录组测序及表达验证
2.1. CbuMYB基因家族结构与保守结构域分析
2.2. CbuMYB基因家族系统发育分析
2.3. CbuMYB基因家族启动子顺式作用元件预测分析
2.4. CbuMYB基因家族盐胁迫下表型观测与表达热图
2.5. RT-qPCR验证
 2026-0188-附件材料.pdf |

|
