



 下载:
-
镉(Cd)是一种高毒性、易迁移的非必需重金属污染物,可通过工业排放、矿产开采和农业活动进入土壤和水体系统,并经食物链威胁生态安全和人体健康[1−3]。木本植物因根系发达、生物量大和环境适应性强,被认为是镉污染土壤长期治理的重要候选材料[4−5]。解析木本植物对镉胁迫的响应和转运机制,是筛选耐镉树种及理解其修复适用性的基础。镉胁迫通常通过诱导氧化损伤、破坏细胞结构和抑制光合作用限制植物生长[6−7]。根系是镉进入植物体的首要通道,也是决定镉滞留、跨膜运输和向地上部转运的关键组织[8]。植物可通过细胞壁加厚、木质素沉积、金属螯合和液泡区隔化降低镉毒性[9−11];同时,ABC转运体、金属硫蛋白及木质素生物合成相关基因参与镉解毒和分配[10,12]。代谢组和转录组联合分析进一步表明:氨基酸、糖类、有机酸、类黄酮及苯丙烷等代谢过程与重金属胁迫适应密切相关[13−16]。
娜塔栎Quercus texana是抗逆性较强的北美栎属Quercus树种[17−18],在中国长江三角洲地区具有较好的生态适应性和景观应用价值[19−21],并在重金属污染环境中表现出一定耐受潜力[4,22]。前期土培试验和LI等[4]的田间研究均显示,娜塔栎Cd转移系数(transfer factor,TF)可大于1,提示其具有较强的Cd向地上部分配能力。但这一转运特征是否与根系结构防御、代谢调节和转运相关基因表达协同有关仍不清楚。本研究以娜塔栎1年生幼苗为材料,设置梯度Cd胁迫处理,分析其生物量分配、根系超微结构、Cd积累转运及根系转录组-代谢组响应,以揭示娜塔栎苗期根系Cd响应与转运机制。
-
娜塔栎种子采购自美国,沙藏后于2023年3月播种于浙江省杭州市富阳区实验大棚内(30°03'N,119°57'E)。挑选生长一致的2个月龄幼苗固定于45 cm×35 cm×15 cm(长×宽×高)容器内的泡沫板上,加入Hoagland营养液预培养2周,连续充气,自然光照,温度为30~38 ℃,相对湿度为60%~80%,并用HCl或NaOH将pH维持在5~6。参照栎属及木本植物水培Cd胁迫研究中常用的10~50 μmol·L−1 Cd处理范围[23−24],并结合预试验设置3个Cd(NO3)2处理:0(Cd0)、10(Cd10)和50(Cd50) μmol·L−1。其中Cd10用于表征低/中度暴露响应,Cd50用于诱导明显胁迫和Cd转运分配转变。每个处理设置3个重复(每个容器为1个重复,每容器栽植20株苗),每周更换2次Hoagland营养液,处理21 d后收获植株。
-
参照木本植物Cd胁迫生物量测定方法[23],每处理随机选取4株植株,分离叶片、茎和根系。根系用20 mmol·L−1 EDTA-Na2溶液浸泡15 min以去除表面吸附Cd,再用去离子水冲洗并吸干表面水分。各组织经105 ℃杀青30 min后,于75 ℃烘干至恒量并称量。
-
元素测定参照CHEN等[28]的方法并略作调整。将烘干组织研磨后称取0.2 g样品,加入HNO3-H2O2(体积比为5∶1)混合酸,于200 ℃消解至溶液澄清,赶酸后转移至50 mL比色管,用体积分数为1%的 HNO3定容至25 mL。Cd0样品同步测定作为对照,Cd含量采用电感耦合等离子体质谱仪(ICP-MS,Agilent 7700x)测定。转移系数=地上部Cd质量分数/地下部Cd质量分数。
-
本研究的超微结构、转录组和代谢组分析重点聚焦于出现显著生长抑制和Cd转运分配转变的高浓度处理,因此选取Cd0和Cd50进行机制解析;Cd10用于生长和Cd积累梯度比较。选取新生根系样品置于体积分数为2.5%的戊二醛固定2~4 h,磷酸缓冲液漂洗后经体积分数为1%的锇酸4 ℃固定2 h,随后进行乙醇梯度脱水、环氧丙烷过渡、812树脂渗透包埋和60 ℃聚合。样品经Leica UC7超薄切片机切片、醋酸双氧铀和柠檬酸铅双染色后,用透射电镜观察根系超微结构。
-
选取Cd0(对照,ck)和Cd50(处理,T)根系各3个生物学重复进行广靶代谢组分析,代谢组测定委托武汉迈维代谢生物科技股份有限公司完成。样品经真空冷冻干燥后,用研磨机(MM400,Retsch)研磨成粉末;称取50 mg粉末,加入1 200 μL预冷体积分数为70%的甲醇水溶液提取。样品经涡旋、离心和0.22 μm微孔膜过滤后用于超高效液相色谱串联质谱仪(UPLC-MS/MS)分析。代谢物谱采用主成分分析(principal components analysis,PCA)和正交偏最小二乘判别分析(OPLS-DA)评估组间分离;在OPLS-DA基础上计算VIP(variable importance in projection),并结合差异倍数和t检验筛选差异积累代谢物(DAMs),筛选阈值为VIP≥1、差异倍数(FC)≥2.0或≤0.5且P<0.05。DAMs通过KEGG(Kyoto Encyclopedia of Genes and Genomes)数据库进行通路注释和富集分析。
-
转录组测序选取Cd0和Cd50处理根系样品,每处理3个生物学重复;每个重复以独立容器为单位,采集生长一致植株的新生根系,用去离子水冲洗、吸干后立即液氮速冻并于−80 ℃保存。RNA提取、建库和测序委托武汉迈维生物科技有限公司完成。总RNA采用乙醇沉淀法和CTAB-pBIOZOL法[23]提取,经NanoDrop和Agilent 2100生物分析仪和无核糖核酸酶(RNase-free)琼脂糖凝胶电泳质检。原始数据用fastp过滤后获得高质量序列(clean reads);使用HISAT2比对至娜塔栎参考基因组(https://www.ncbi.nlm.nih.gov/datasets/genome/GCF_932294415.1/),并用StringTie进行新转录本预测。基因表达量通过featureCounts统计reads数并以FPKM标准化。差异表达分析采用DESeq2,以Benjamini-Hochberg校正后的Padj<0.05且|log2FC|≥1作为DEGs筛选阈值,其中,Padj是校正后的P,FC是差异倍数(fold change);DEGs功能富集基于超几何检验进行GO和KEGG分析。
-
采用Excel 2021整理数据,使用SPSS 26.0进行统计分析。多处理比较采用单因素方差分析(one-way ANOVA),差异显著时进行Duncan多重比较;Cd0和Cd50处理间的细胞壁厚度比较采用独立样本t检验。显著性水平设定为P<0.05。图形整理使用Origin 2021和R语言相关程序完成。
-
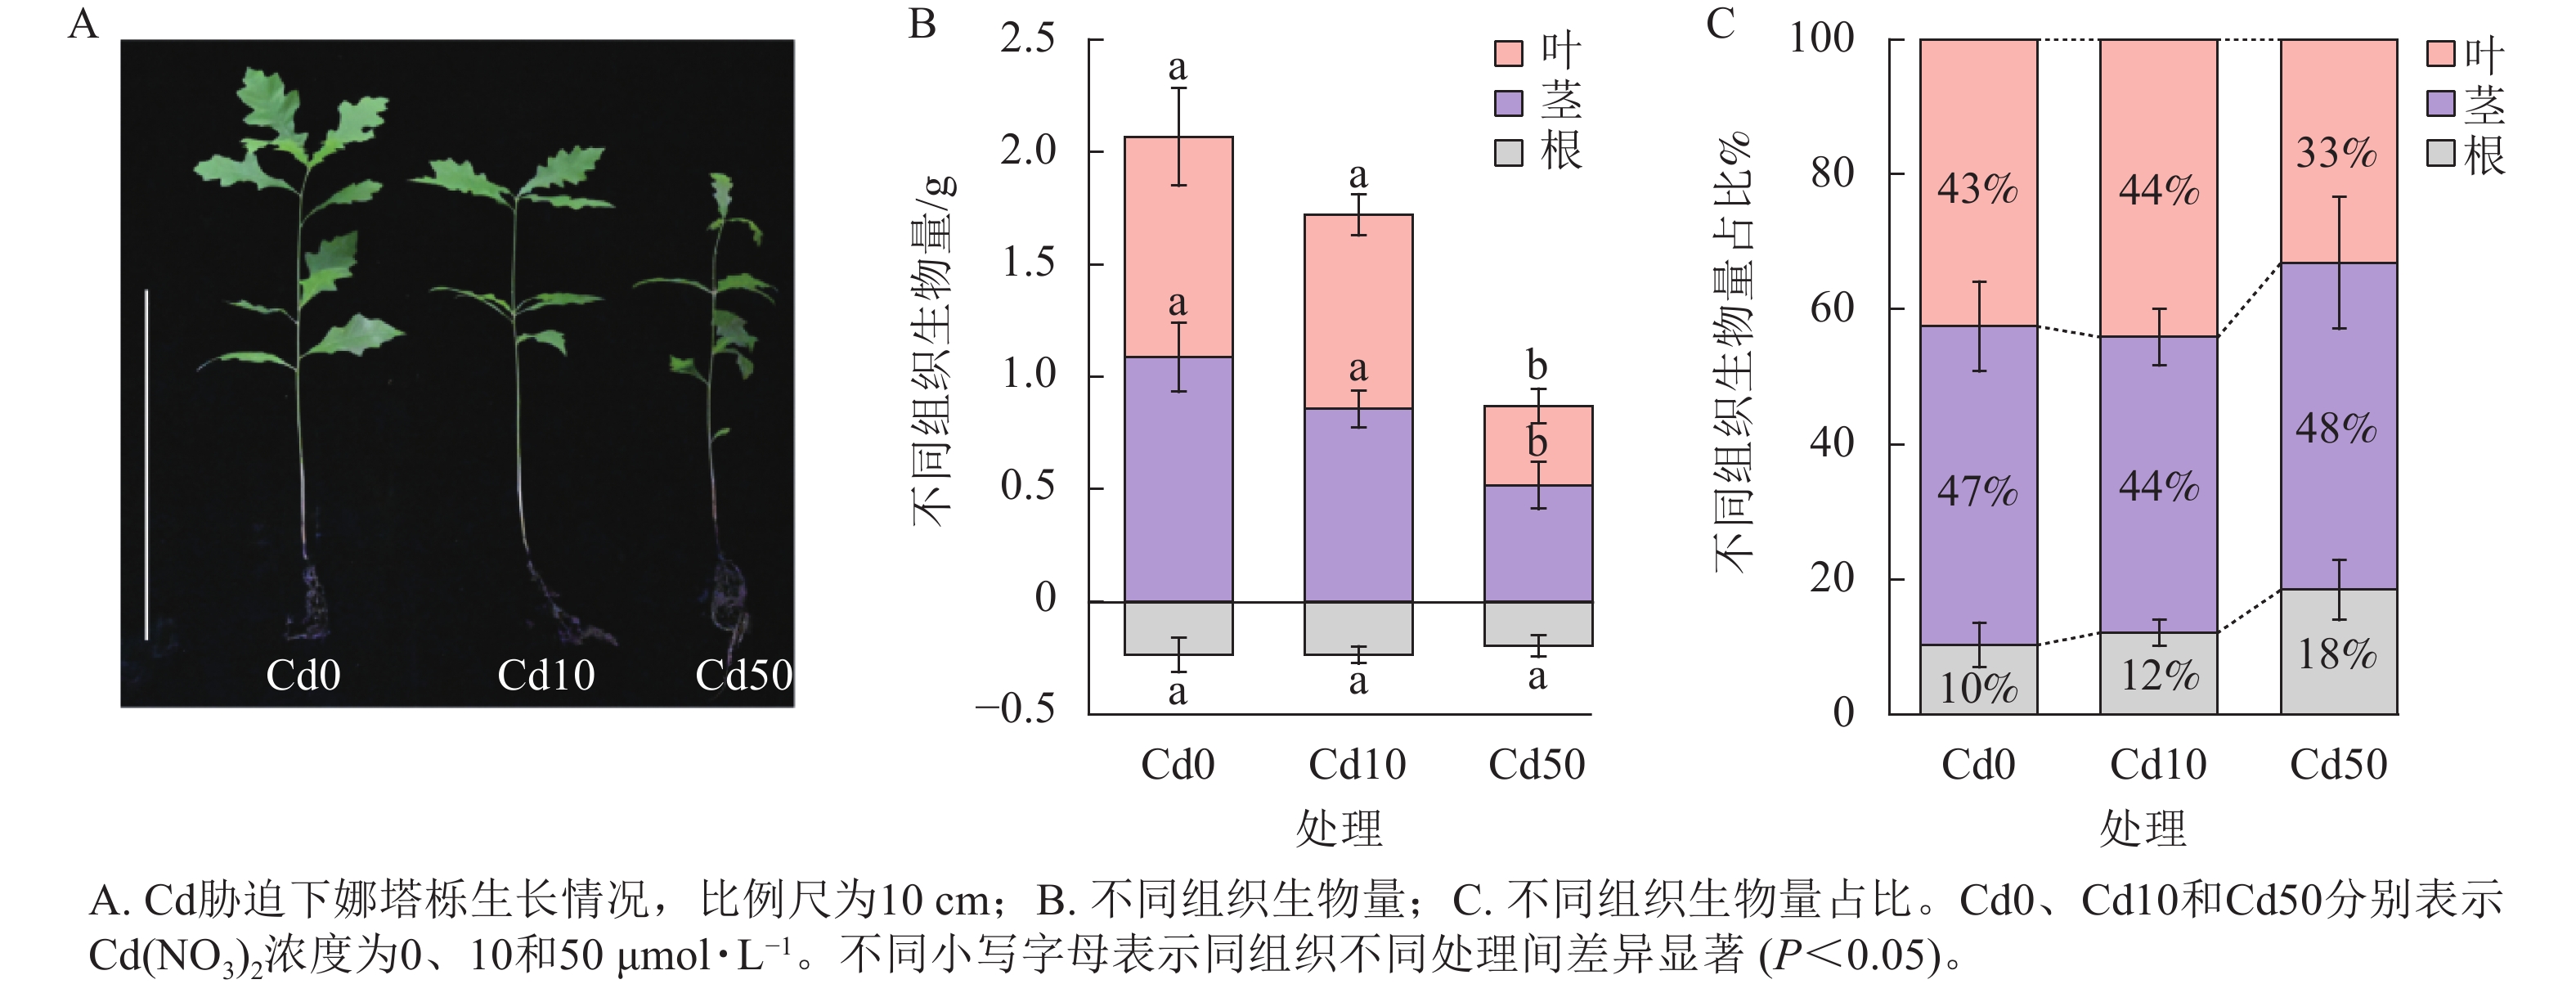
本研究中娜塔栎生长对Cd胁迫表现出浓度依赖性响应(图1)。Cd10处理下,地上部生物量较Cd0有所降低但差异不显著;Cd50处理显著抑制地上部生物量积累(P<0.05),叶片和茎生物量分别较Cd0降低63.9%和52.4%(图1B)。相比之下,根系生物量未受到Cd胁迫显著抑制,且根系生物量占比随Cd浓度升高而增加(图1C)。以上结果表明,高浓度Cd主要抑制娜塔栎地上部生长,而根系维持相对稳定的生物量分配。
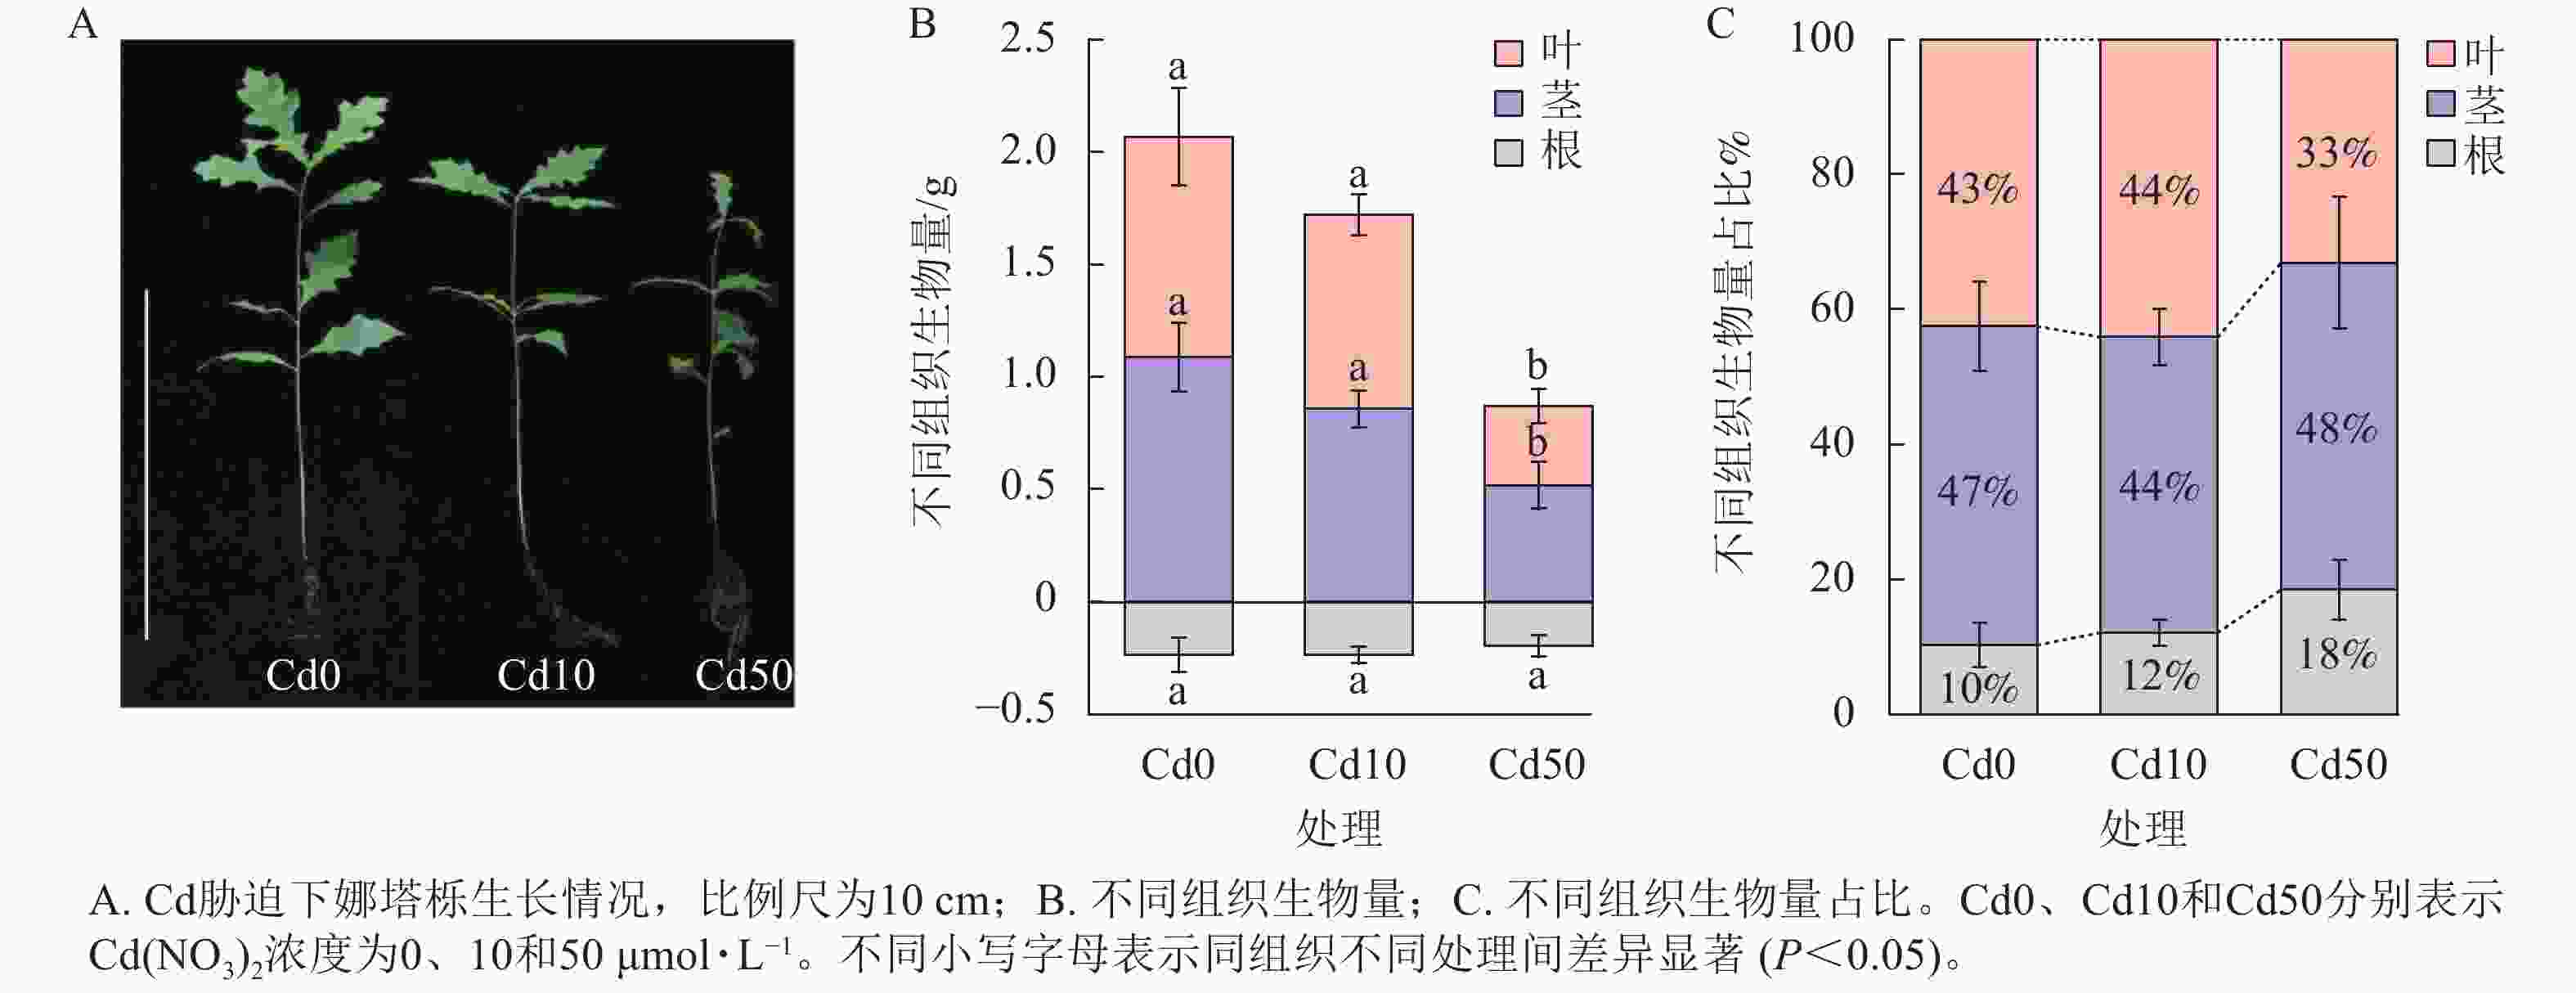
图 1 3种镉胁迫下娜塔栎不同组织生物量
Figure 1. Biomass of different tissues of Q.texana under 3 cadmium stresses
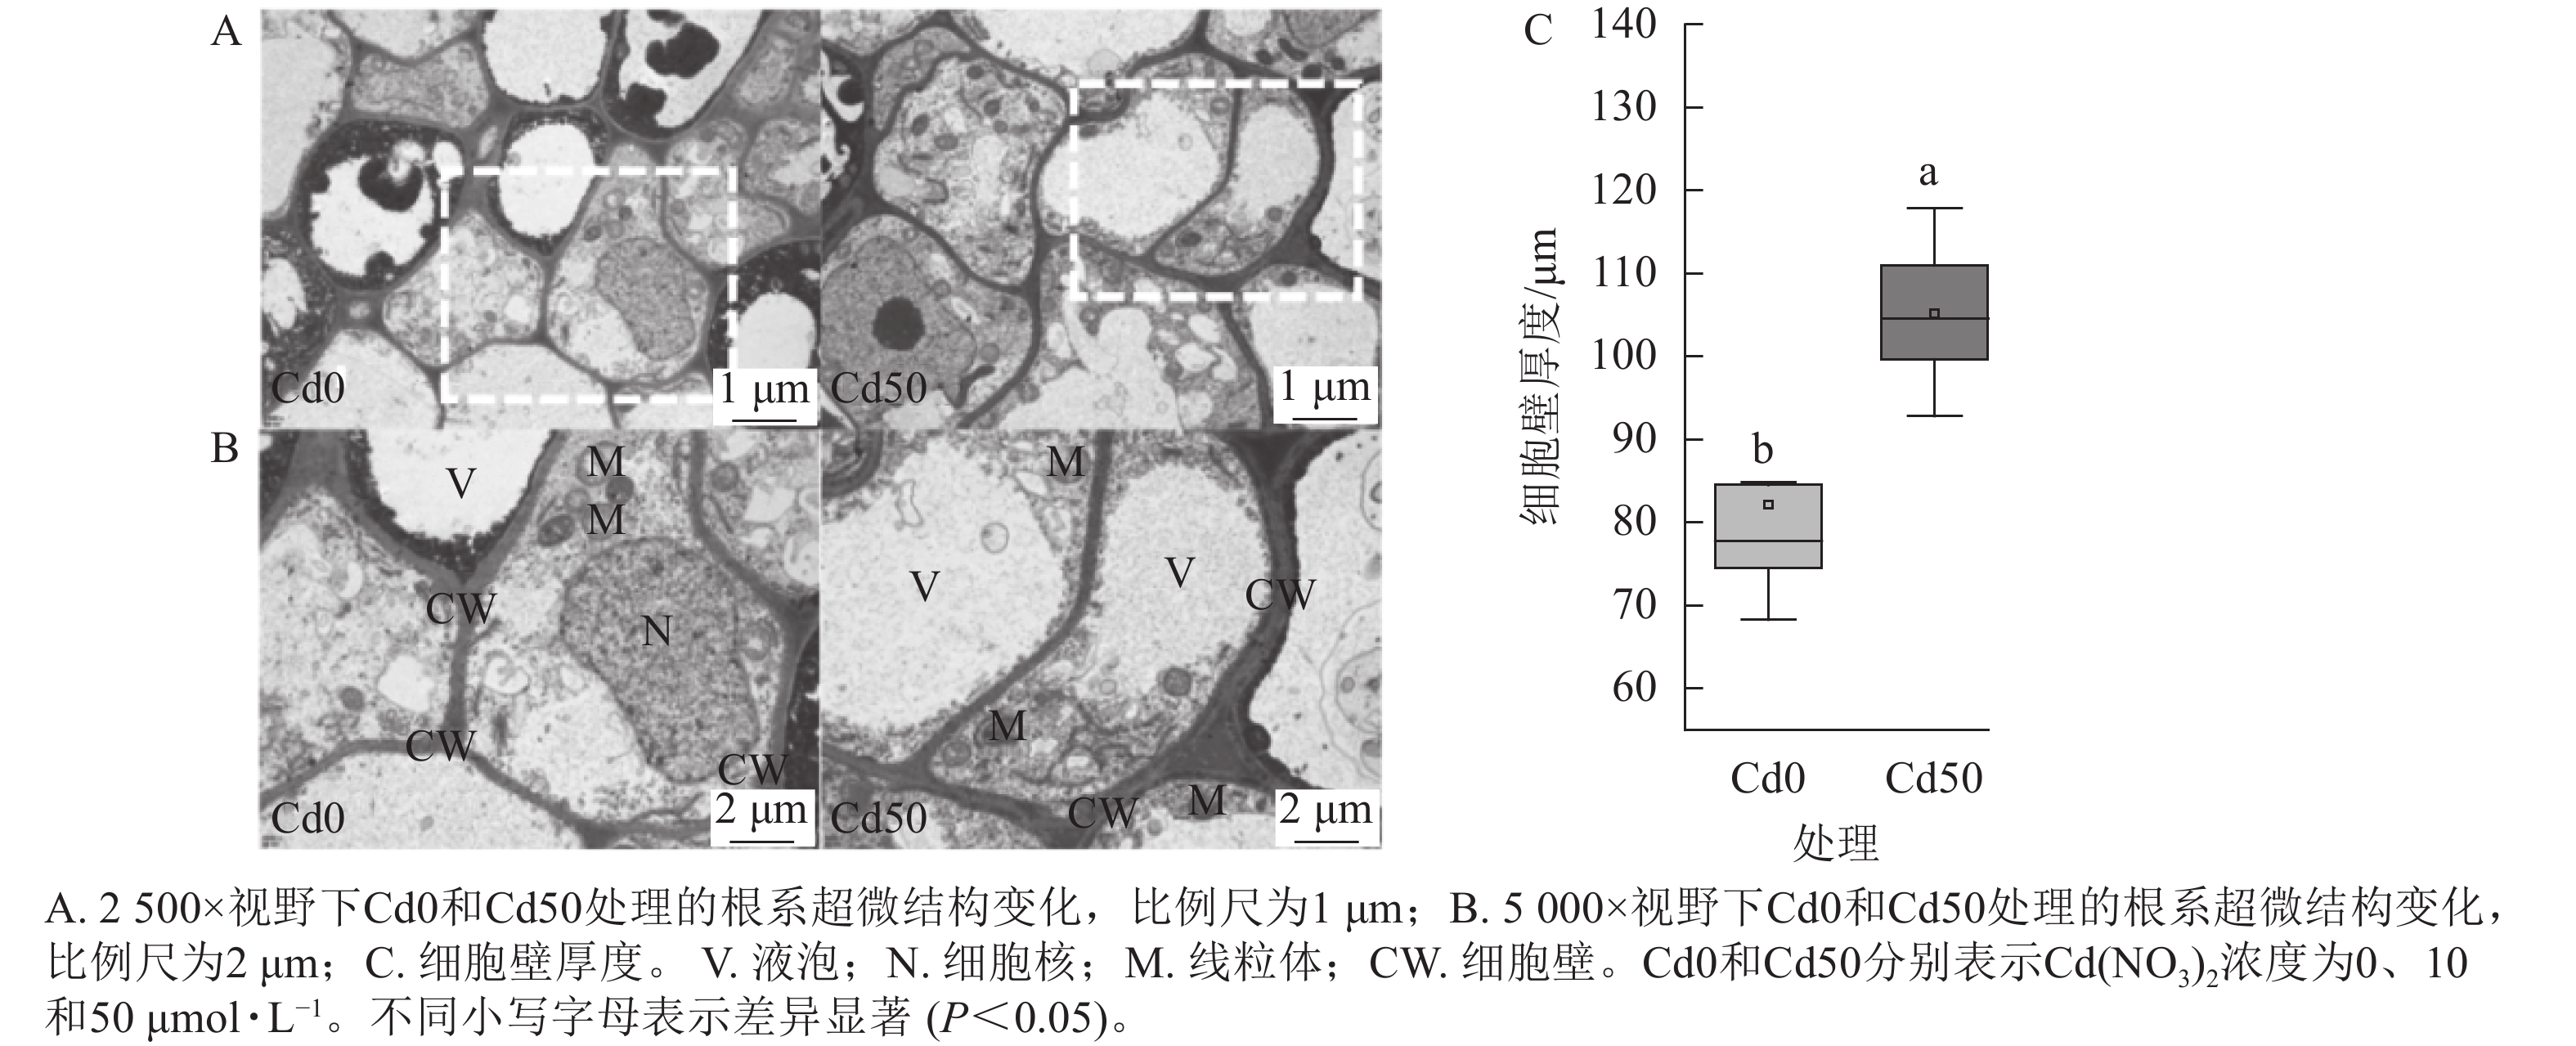
为明确高浓度Cd胁迫对娜塔栎根系超微结构的影响,通过透射电镜观察Cd0与Cd50处理根系。图2A和图2B显示:细胞壁加厚并非在所有细胞中均匀发生,而是在部分细胞和局部壁区更为明显;基于多视野测量的定量结果表明,Cd50处理组根系细胞壁平均厚度较Cd0增加28%(P<0.05,图2C)。同时,Cd50处理还导致液泡数量增多和细胞空泡化程度增强,提示细胞壁沉积与液泡区隔化可能共同参与根系Cd防御。
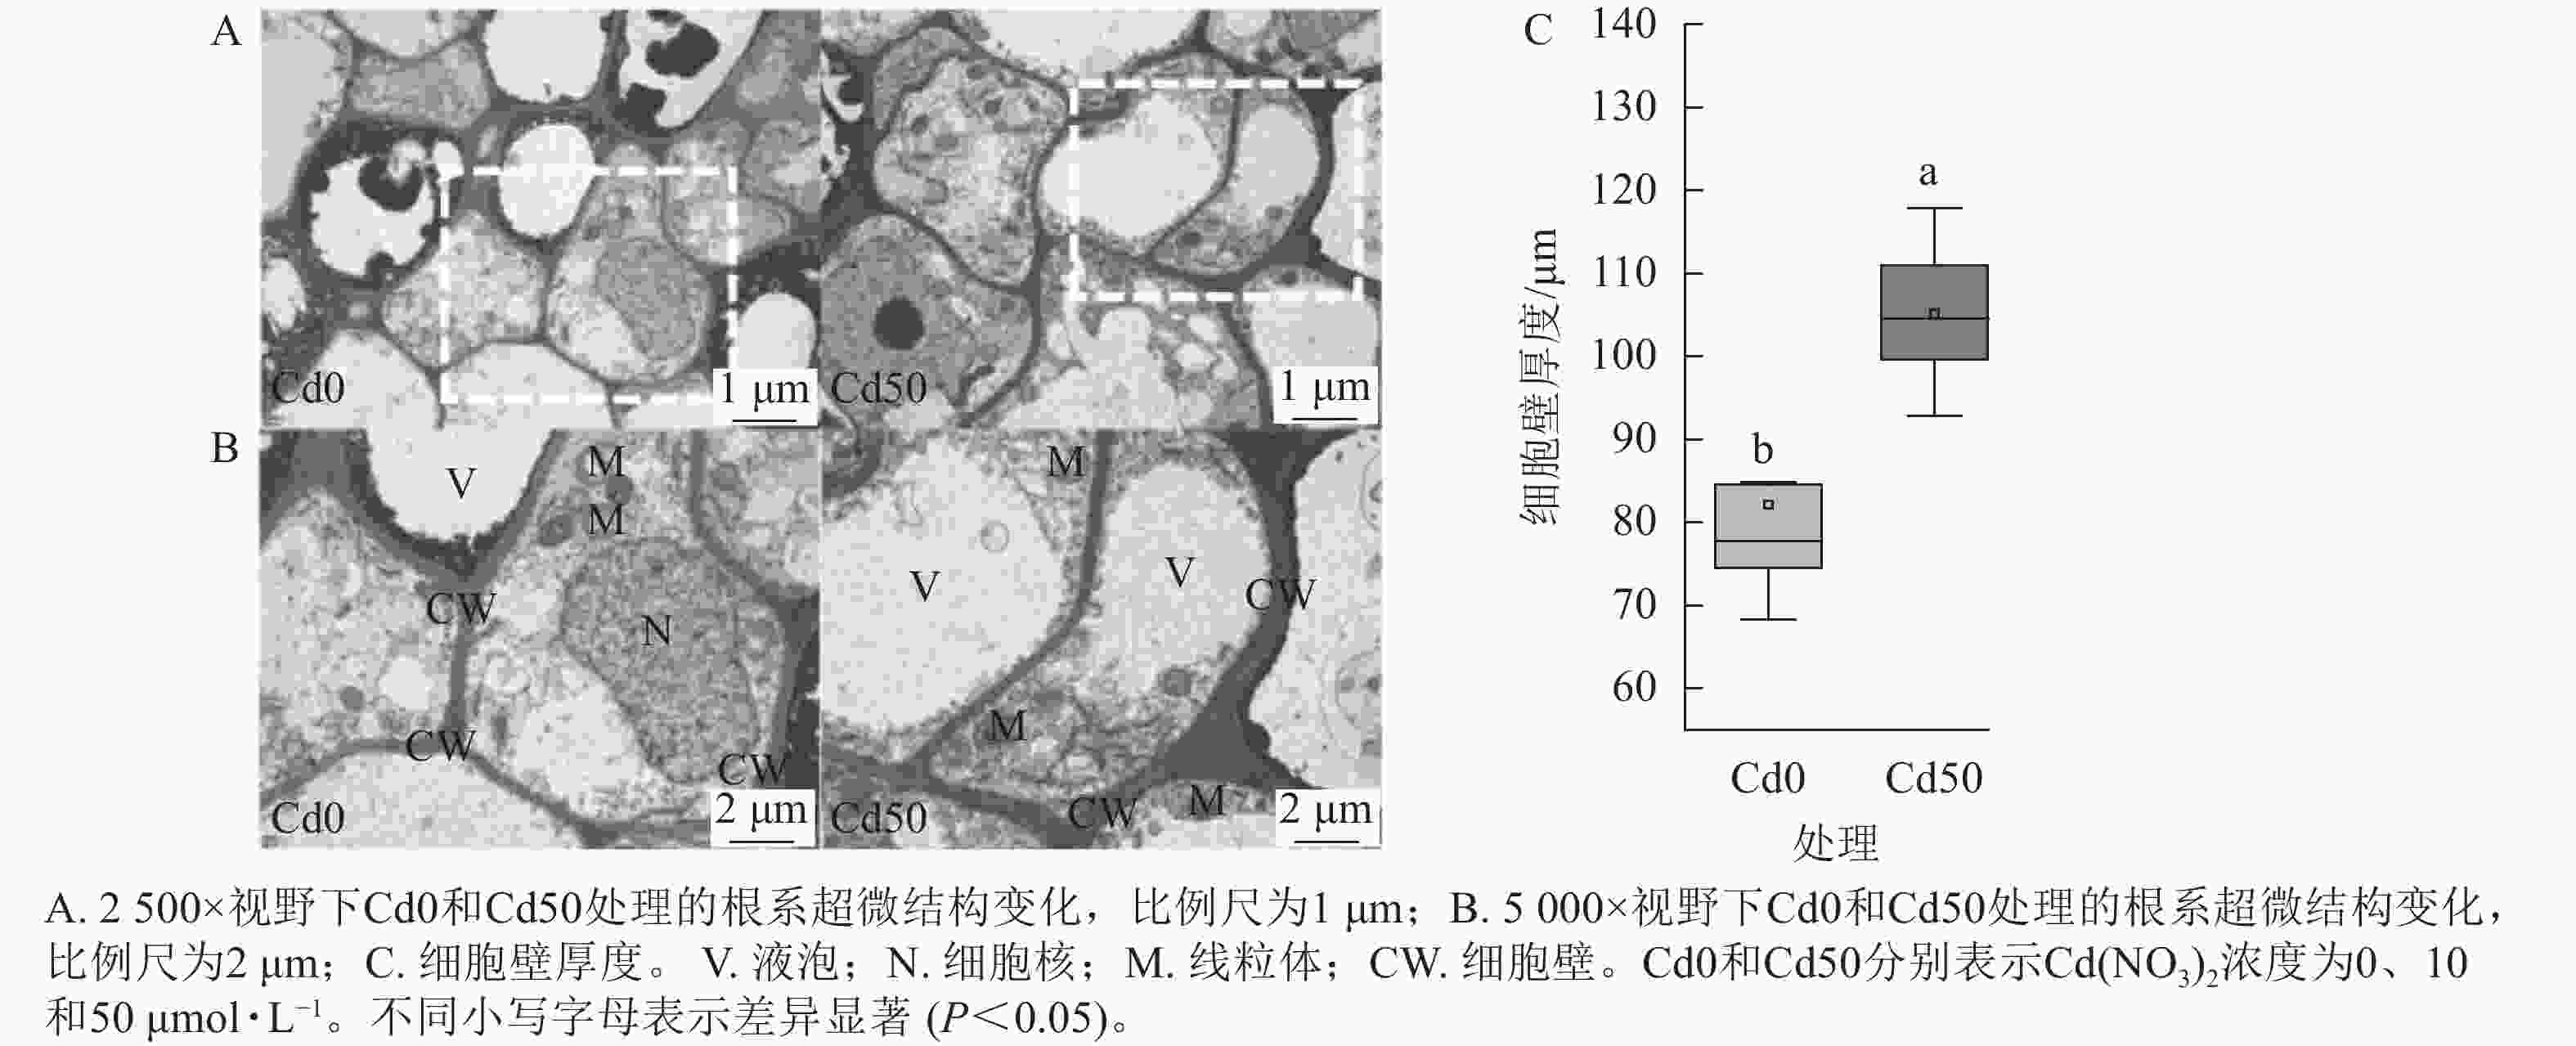
图 2 镉胁迫下娜塔栎根系细胞壁厚度
Figure 2. Cell wall thickness of Q.texana roots under cadmium stress
-
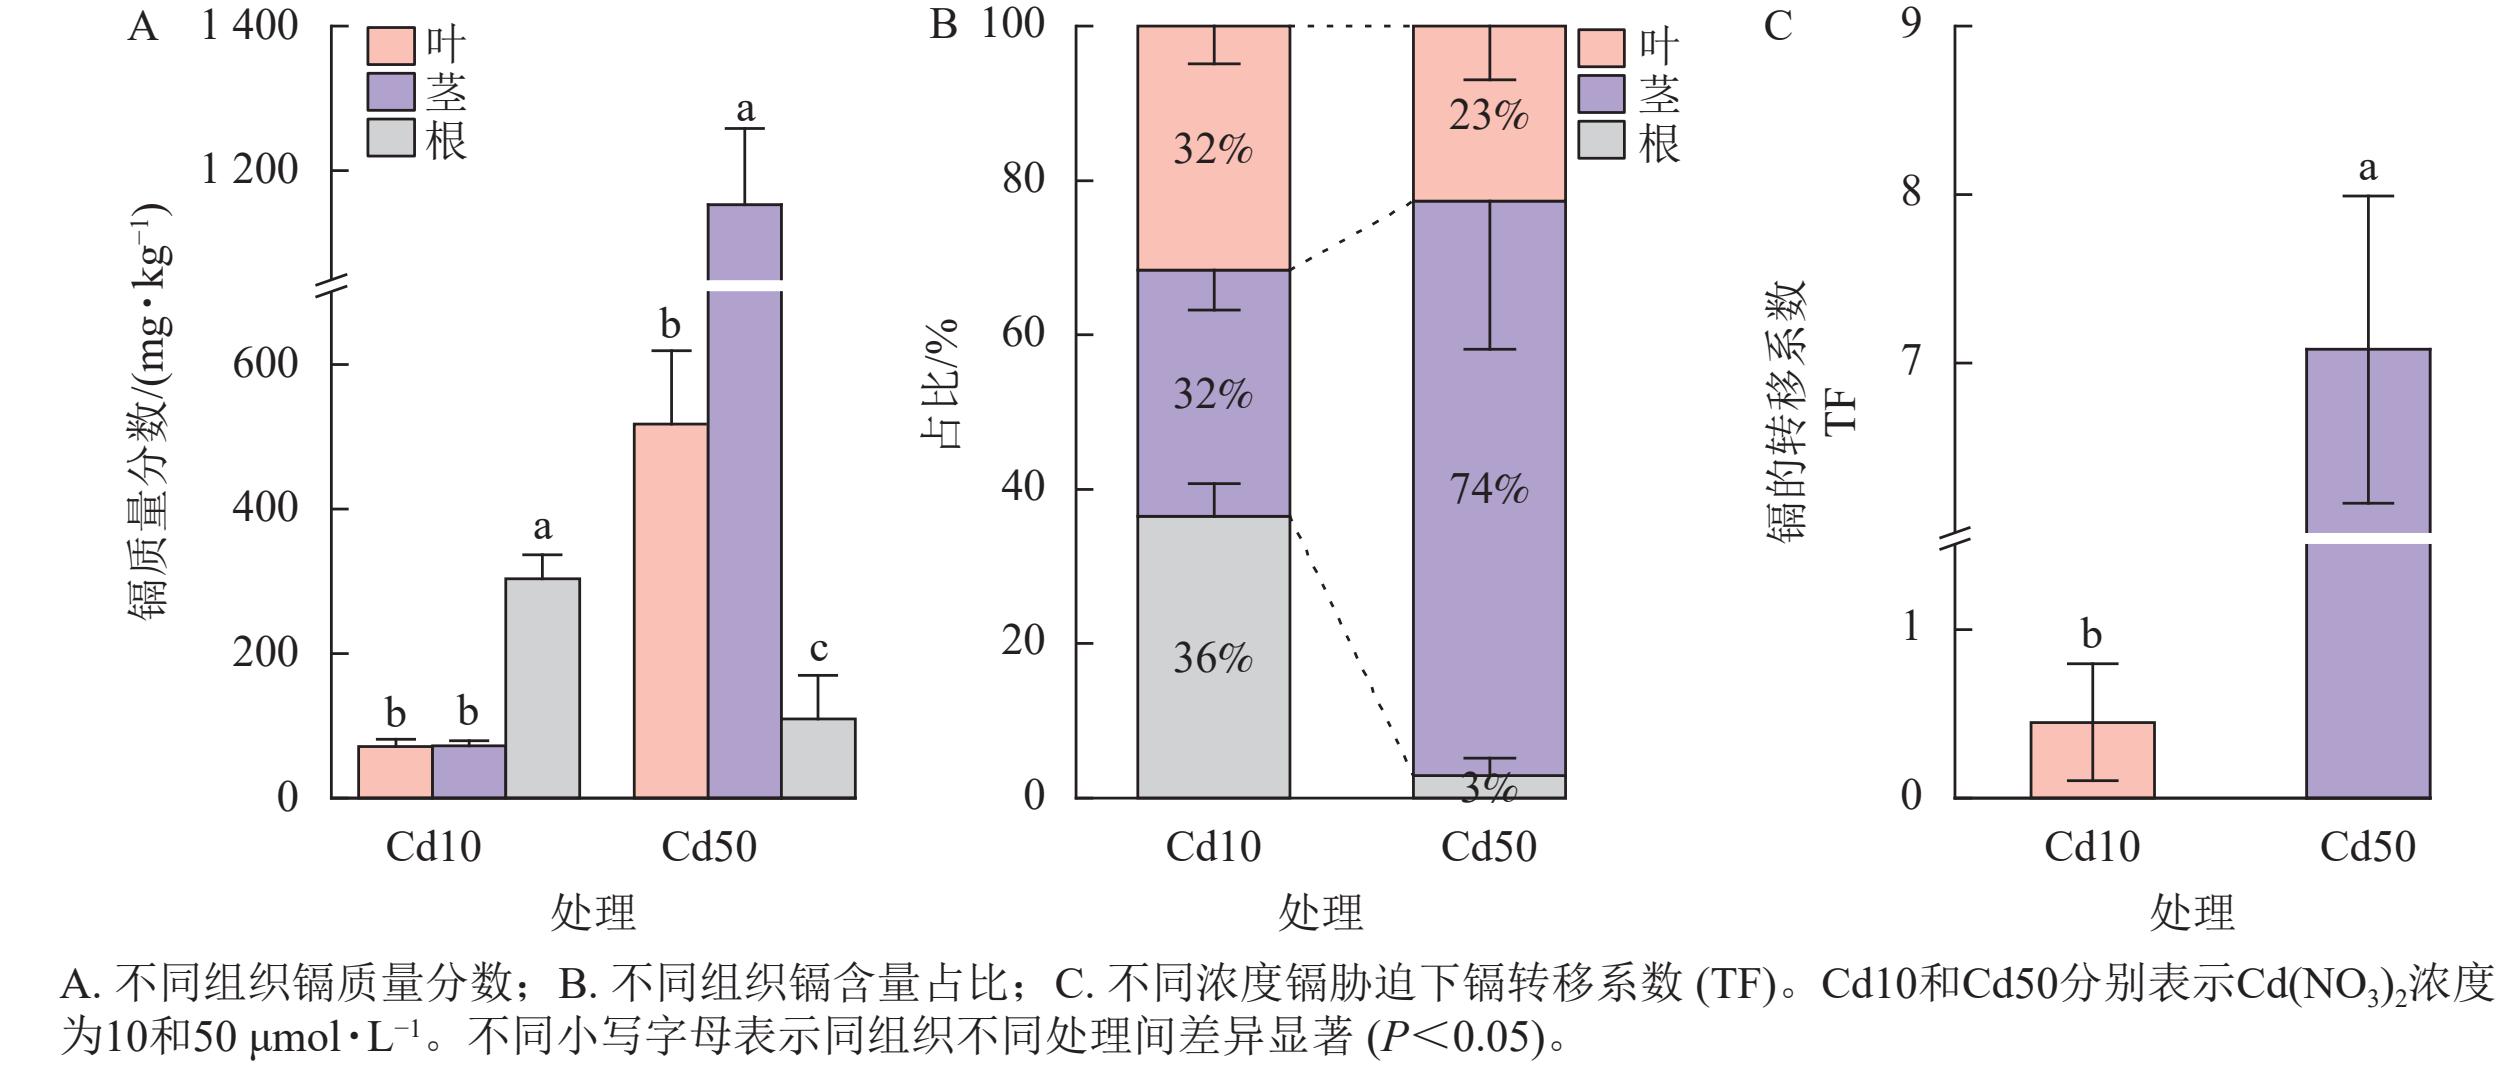
Cd0各组织Cd质量分数显著低于Cd处理组。Cd10处理时,Cd主要富集在根系中(303.67 mg·kg−1) (图3A),TF为0.25,表明低浓度Cd下娜塔栎以根系滞留为主。Cd50处理下,Cd分配模式发生明显转变:根系Cd较Cd10下降33%,茎中Cd占植株Cd总量的74%(图3B),TF升至7.08(图3C)。上述结果表明,高浓度Cd胁迫下娜塔栎由根系滞留转向地上部高效分配。
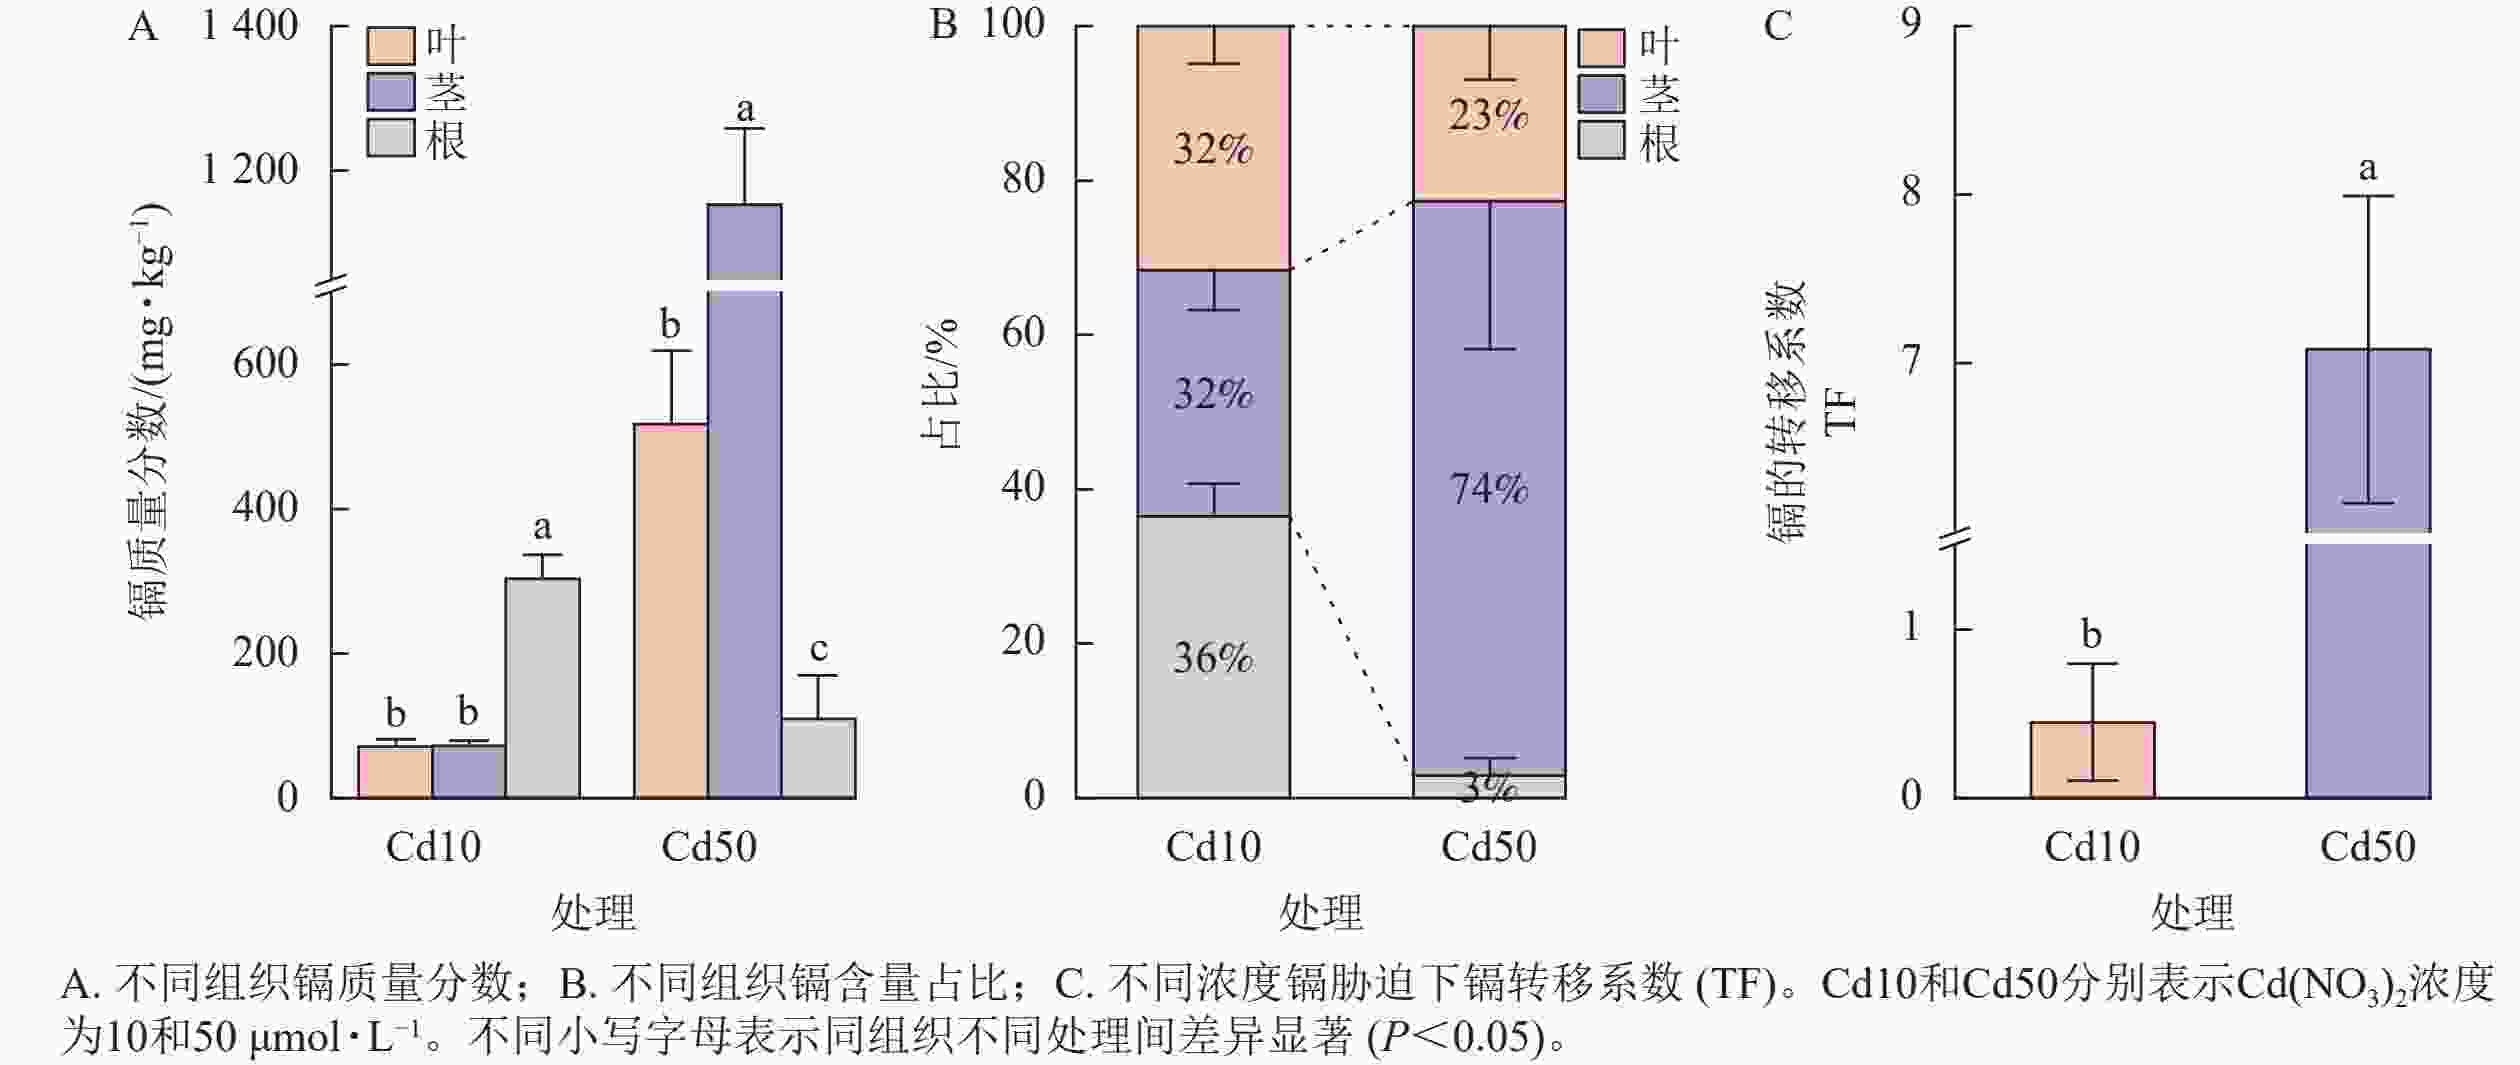
图 3 镉胁迫下不同组织镉累积及转运
Figure 3. Cd accumulation and transport in different tissues under Cd stress
-
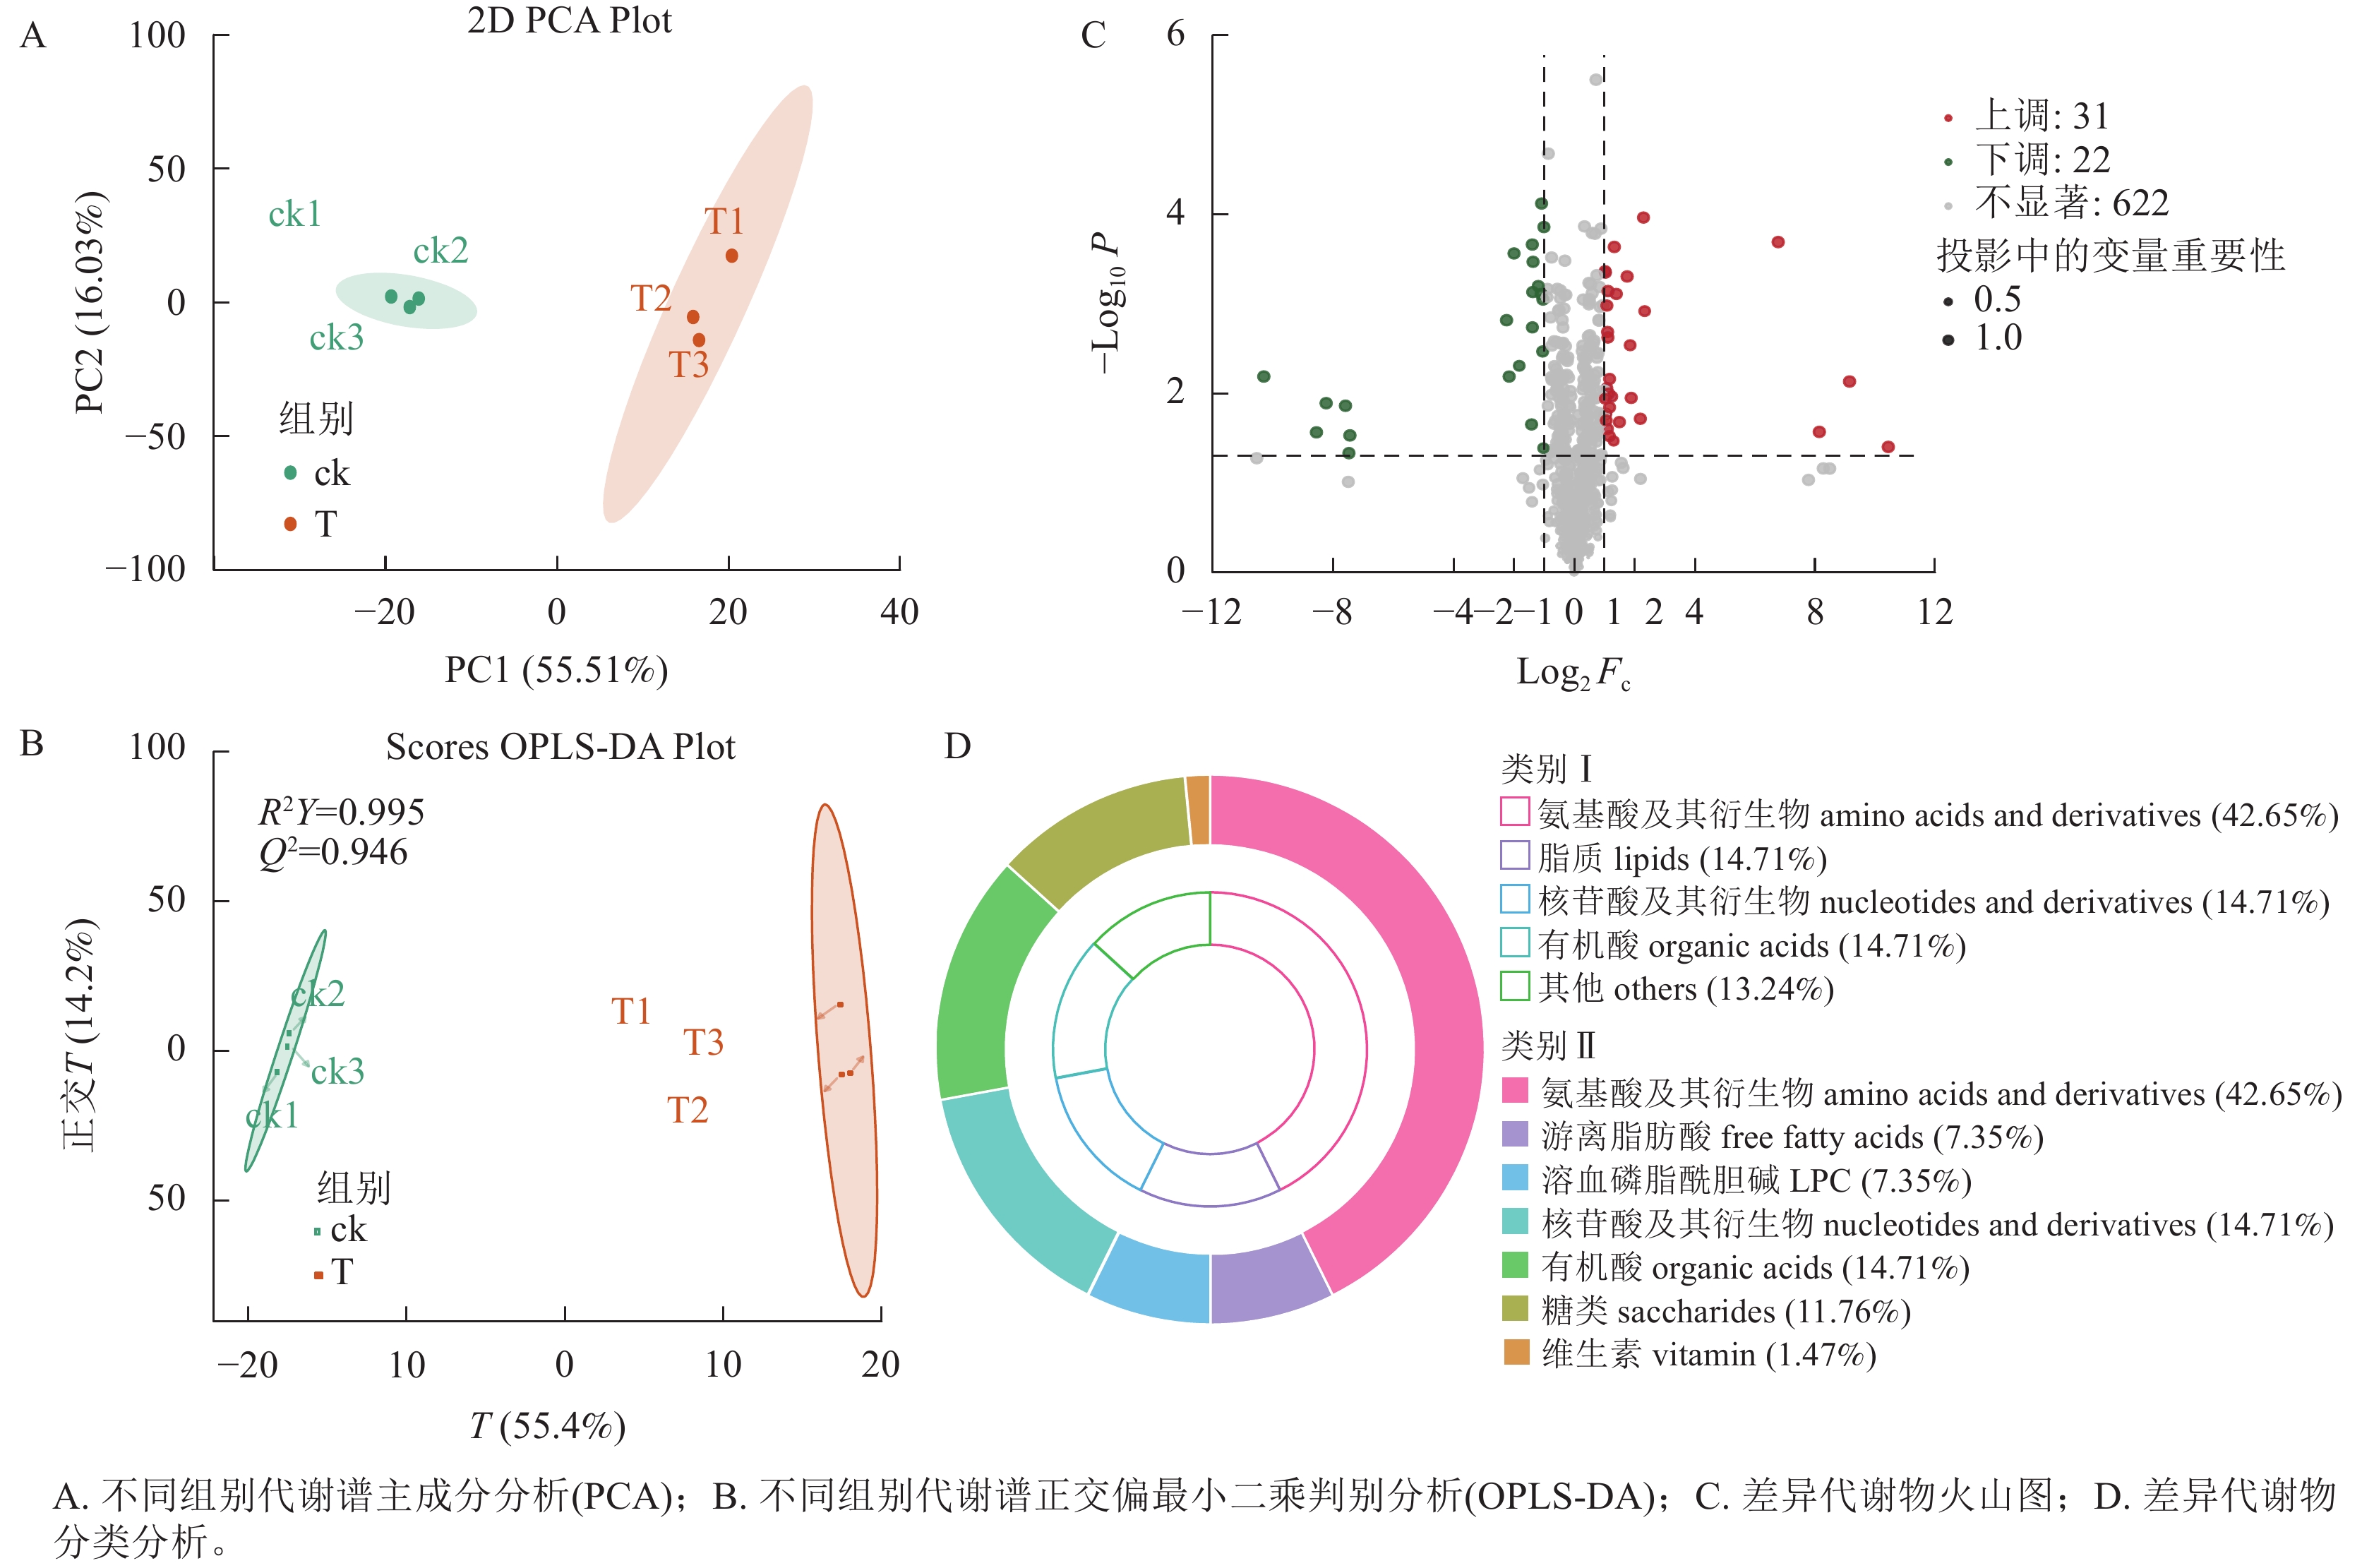
为阐明Cd50处理下娜塔栎根系代谢响应,本研究采用基于UPLC-MS/MS的广靶代谢组学比较Cd0和Cd50根系代谢物谱。PCA结果显示:2个处理明显分离,PC1和PC2合计解释71.54%的变异(图4A);OPLS-DA模型中R2Y=0.995、Q2=0.946,说明模型具有较好的解释和预测能力(图4B)。共检测到675种代谢物,其中氨基酸及其衍生物、脂质、有机酸、核苷酸及其衍生物和其他化合物分别占31.56%、27.85%、15.70%、10.37%和14.52%。进一步以VIP≥1、FC≥2或≤0.5且P<0.05为阈值筛选出53种DAMs(31种上调、22种下调,图4C),包括21种氨基酸及其衍生物、9种核苷酸及其衍生物、7种糖类、8种有机酸、5种溶血磷脂酰胆碱、2种游离脂肪酸和1种维生素(图4D)。
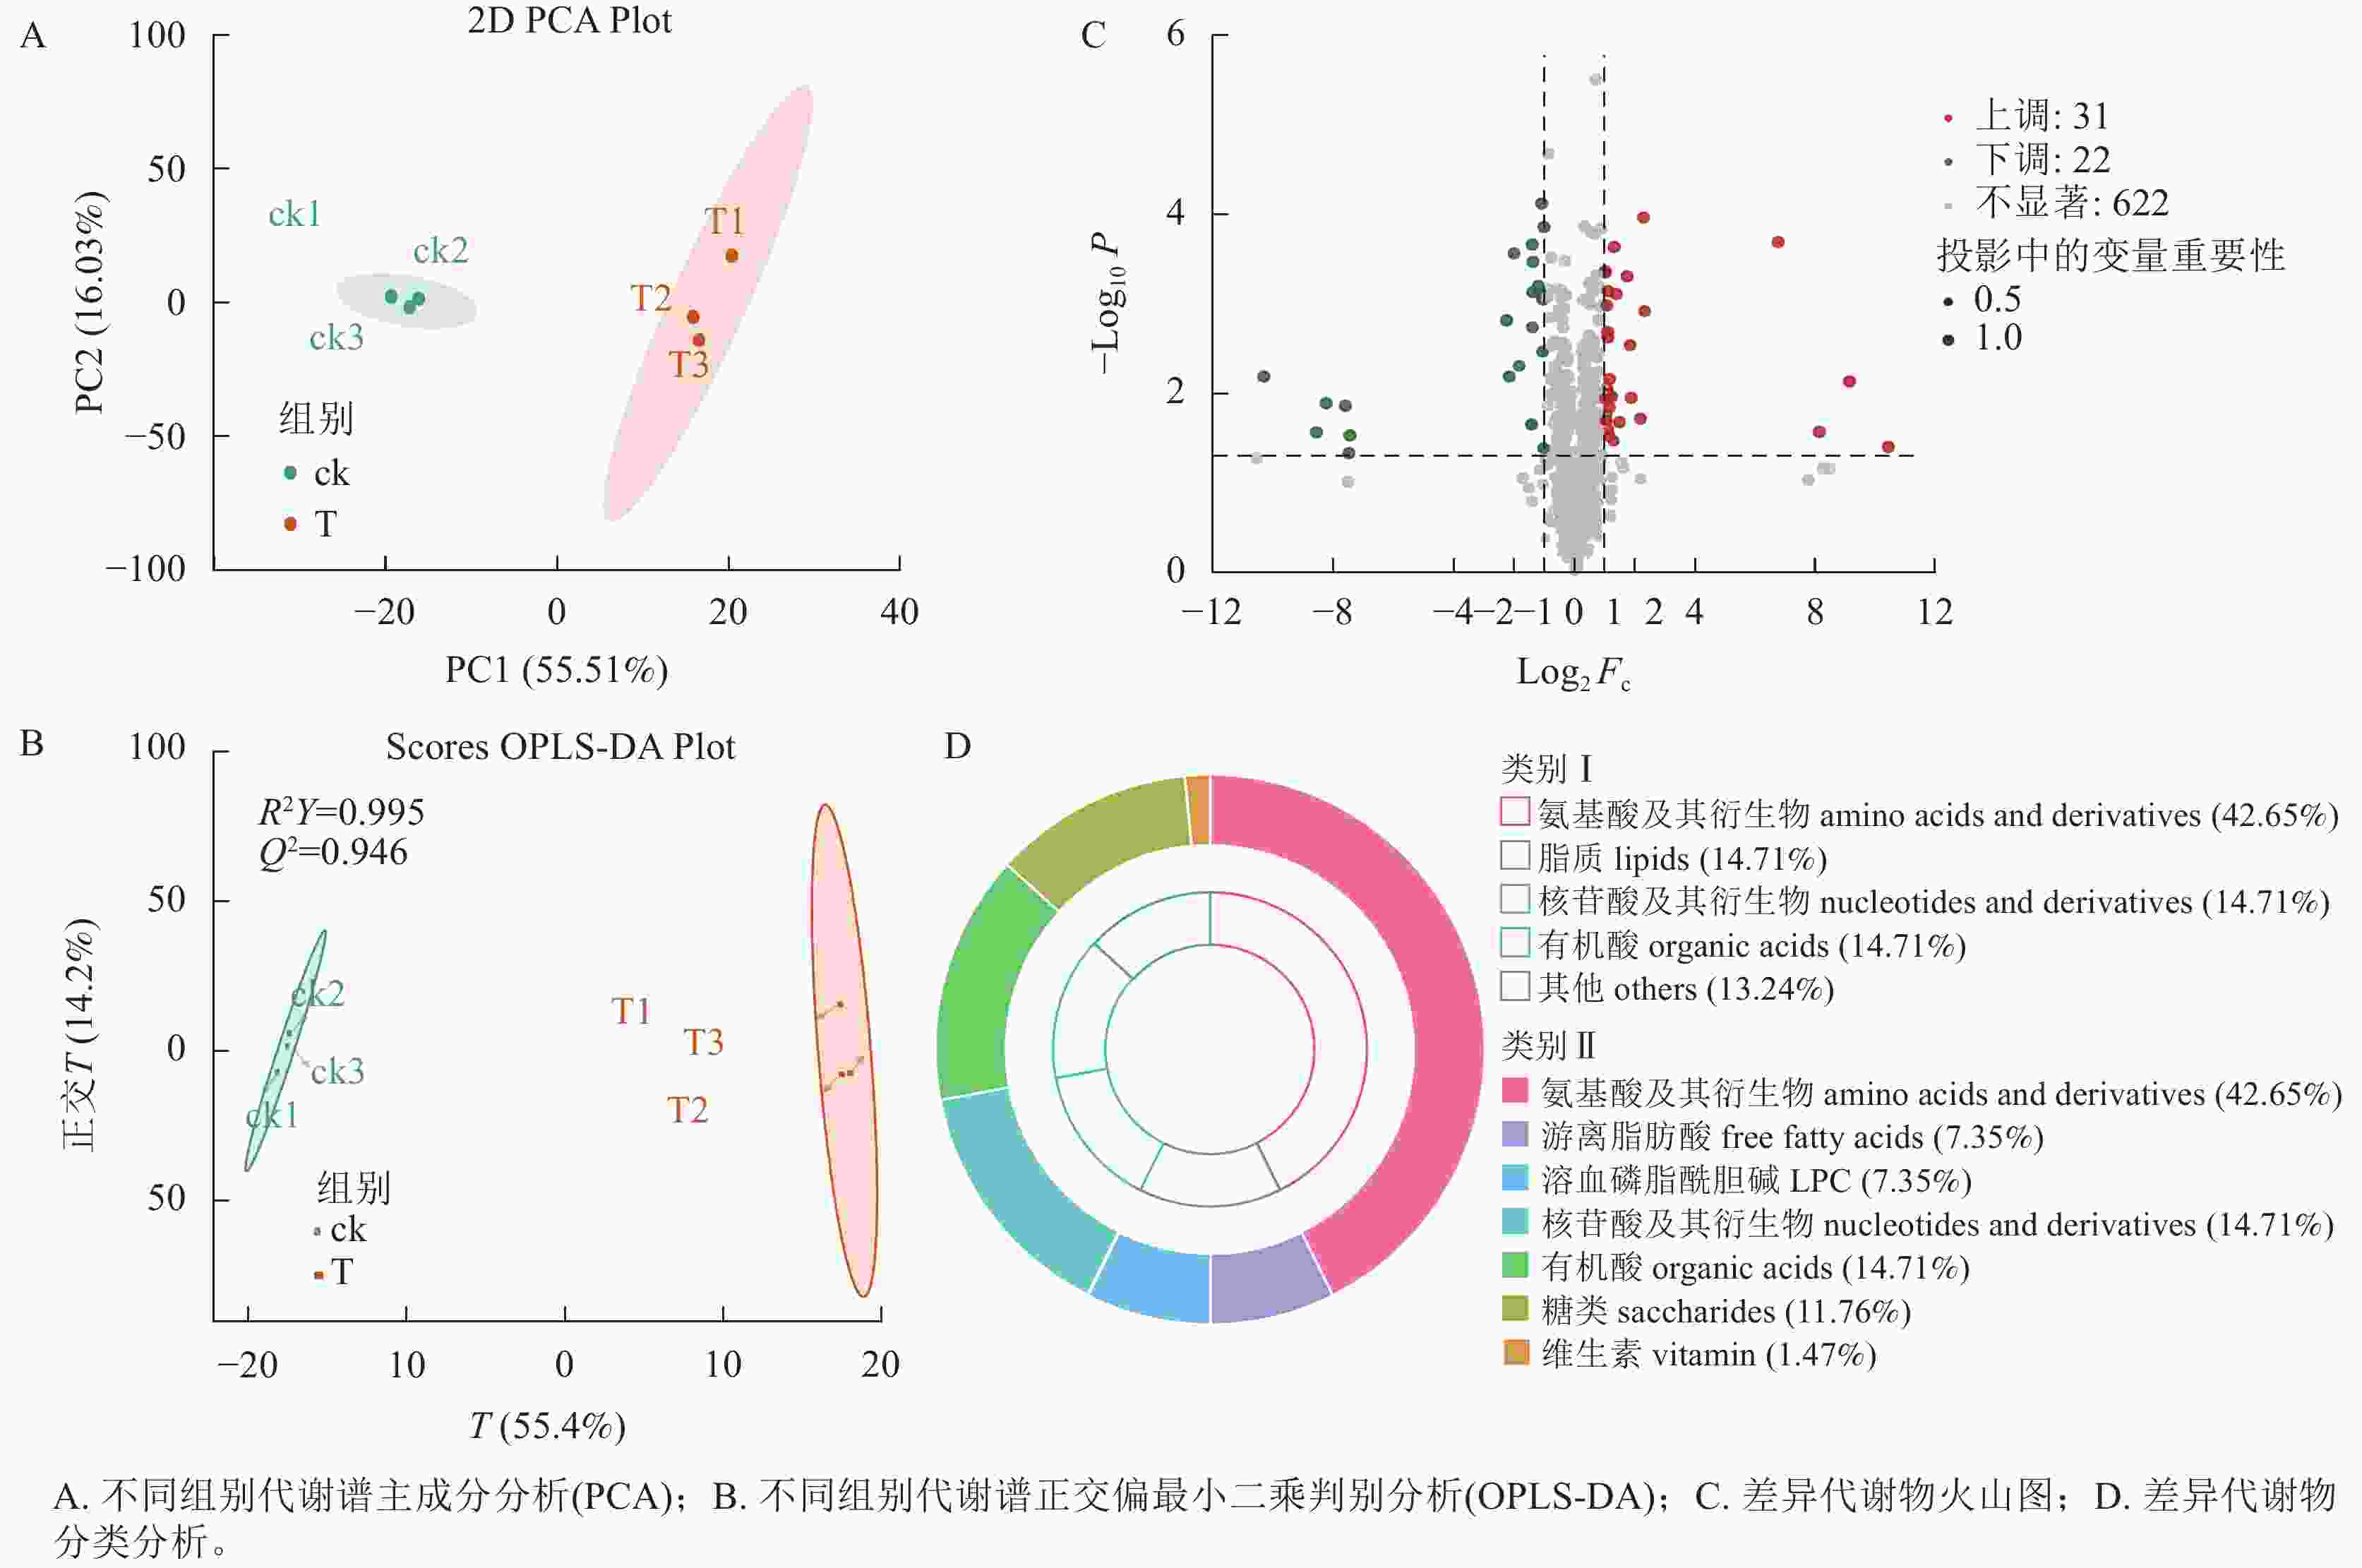
图 4 差异代谢物筛选与功能解析
Figure 4. Screening and functional analysis of differential metabolites
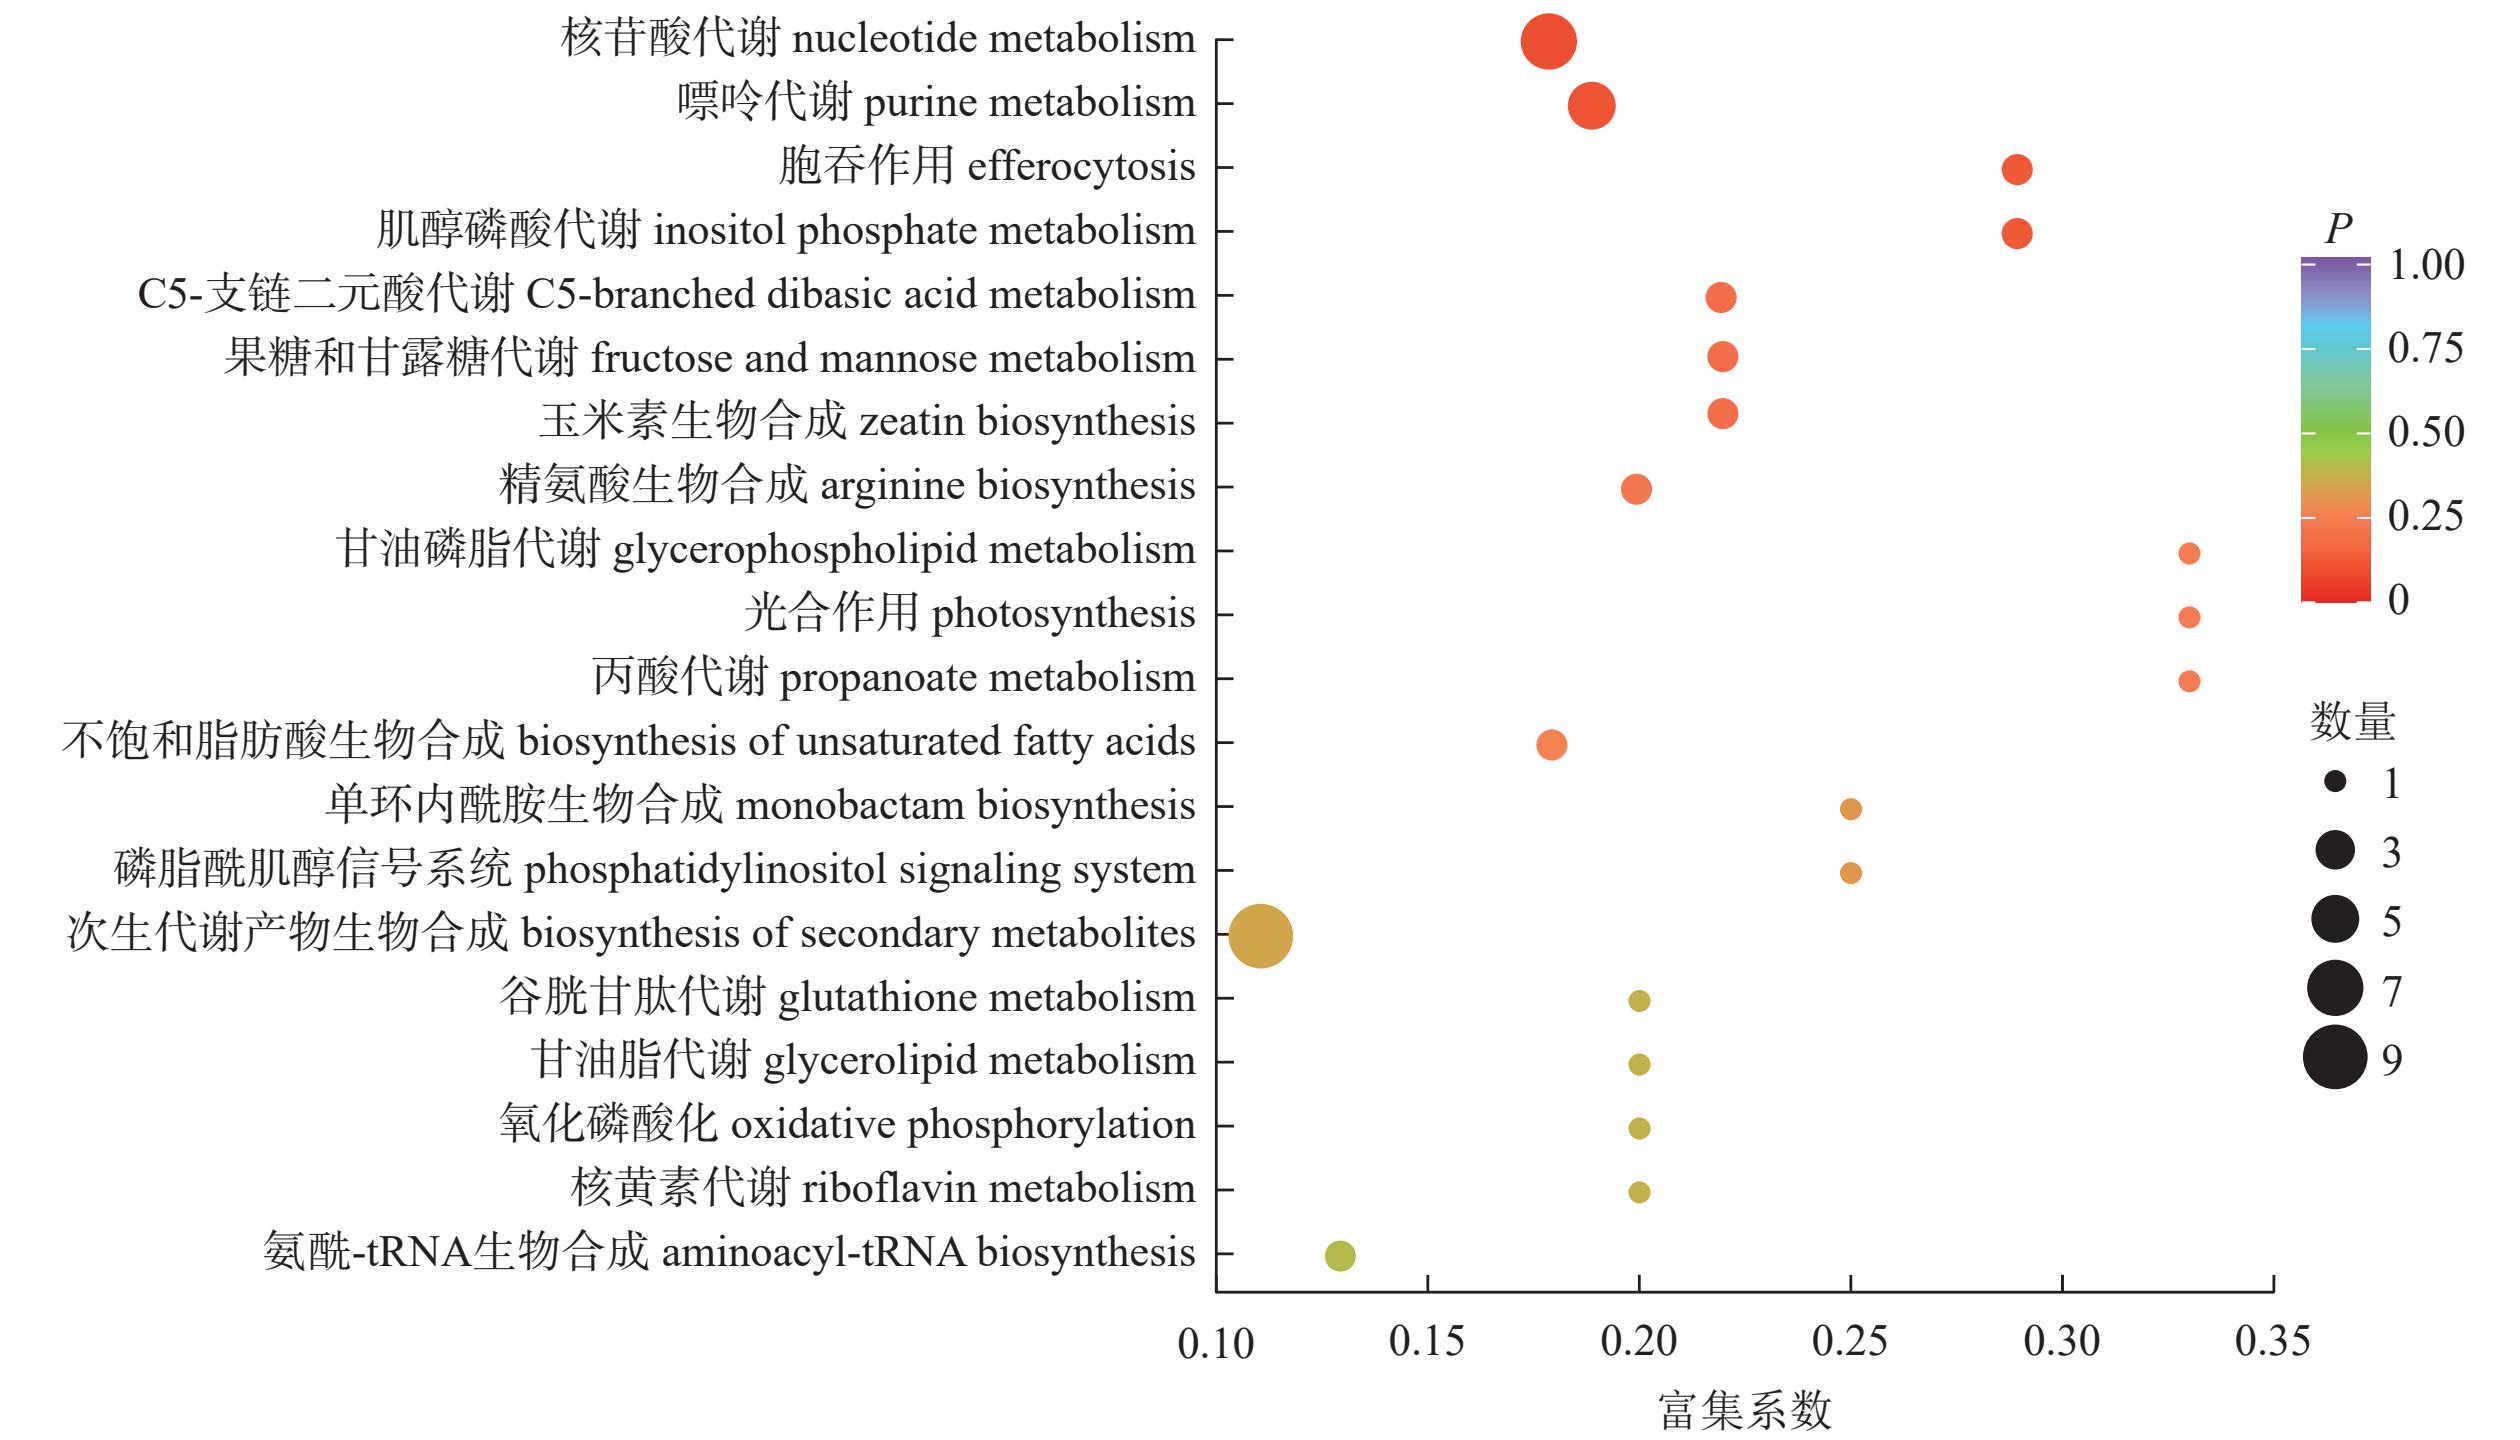
对53种DAMs进行KEGG注释和富集分析(图5)发现:显著富集通路主要包括核苷酸代谢、嘌呤代谢、胞吞作用、肌醇磷酸代谢和C5-支链二元酸代谢。这些结果表明,氨基酸及其衍生物、核苷酸及其衍生物和有机酸等代谢物可能参与Cd胁迫下的渗透调节、能量代谢和金属螯合过程。
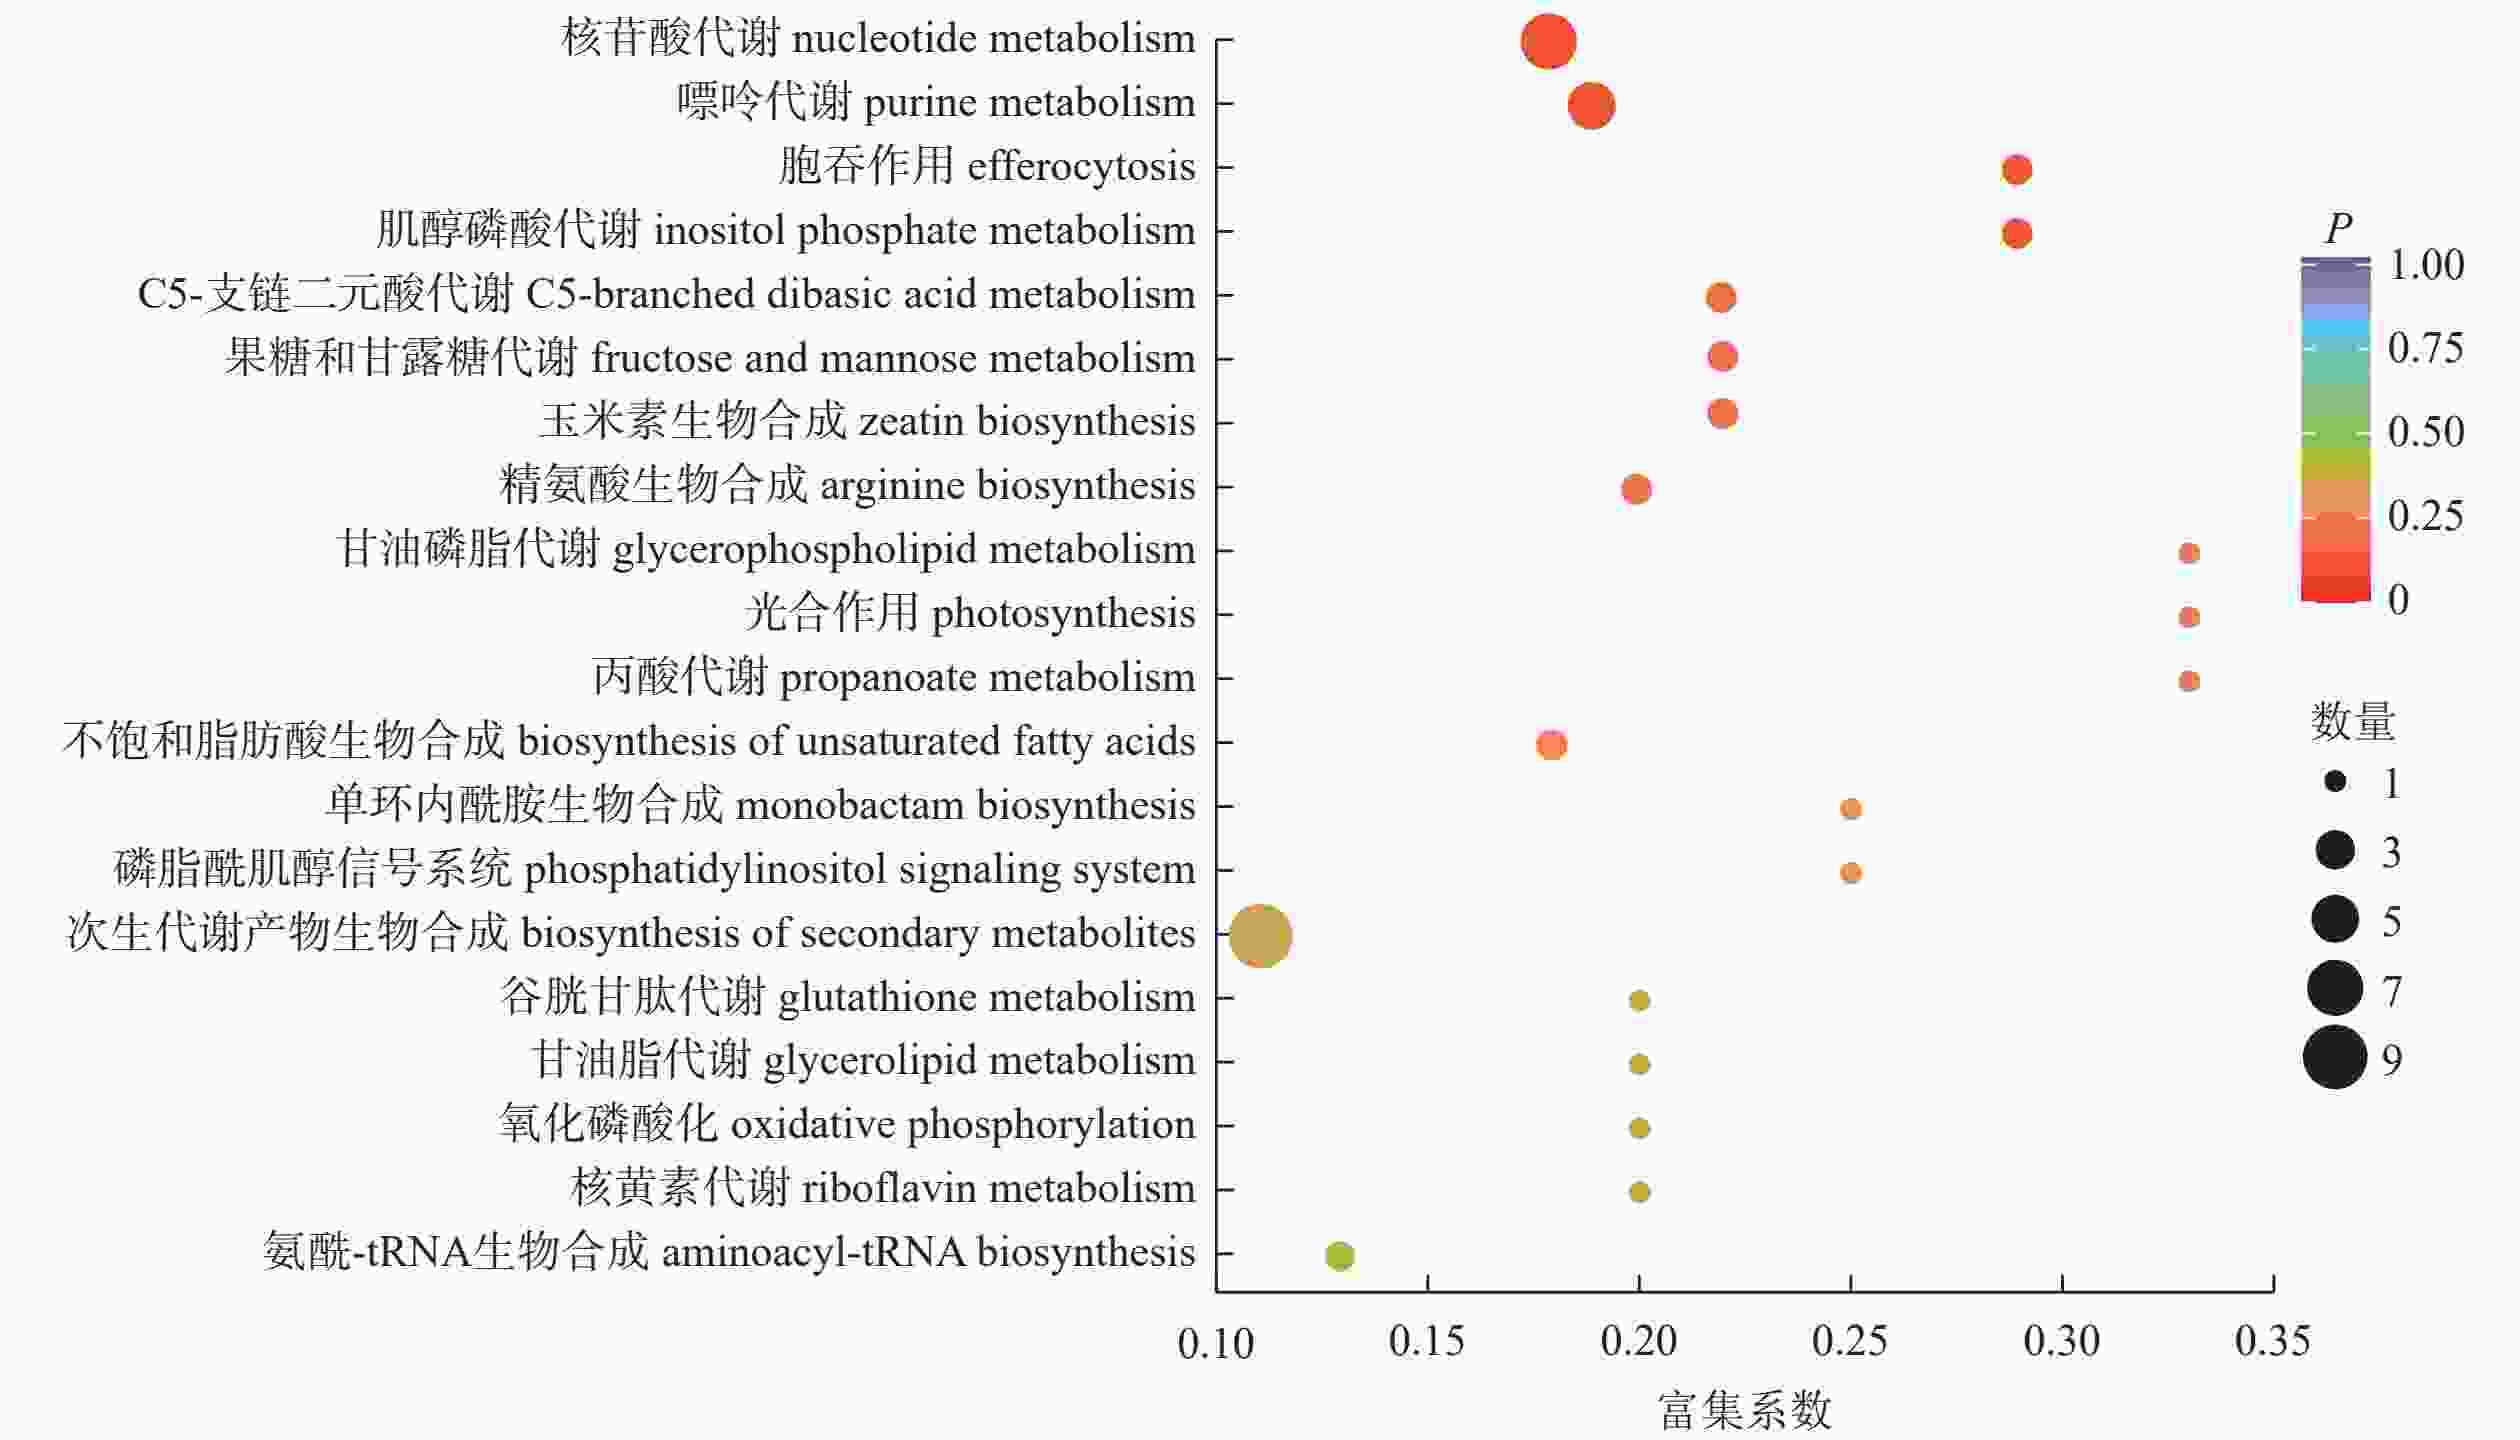
图 5 差异代谢物富集的前20个KEGG通路
Figure 5. Top 20 KEGG pathways enriched for differential metabolites
-
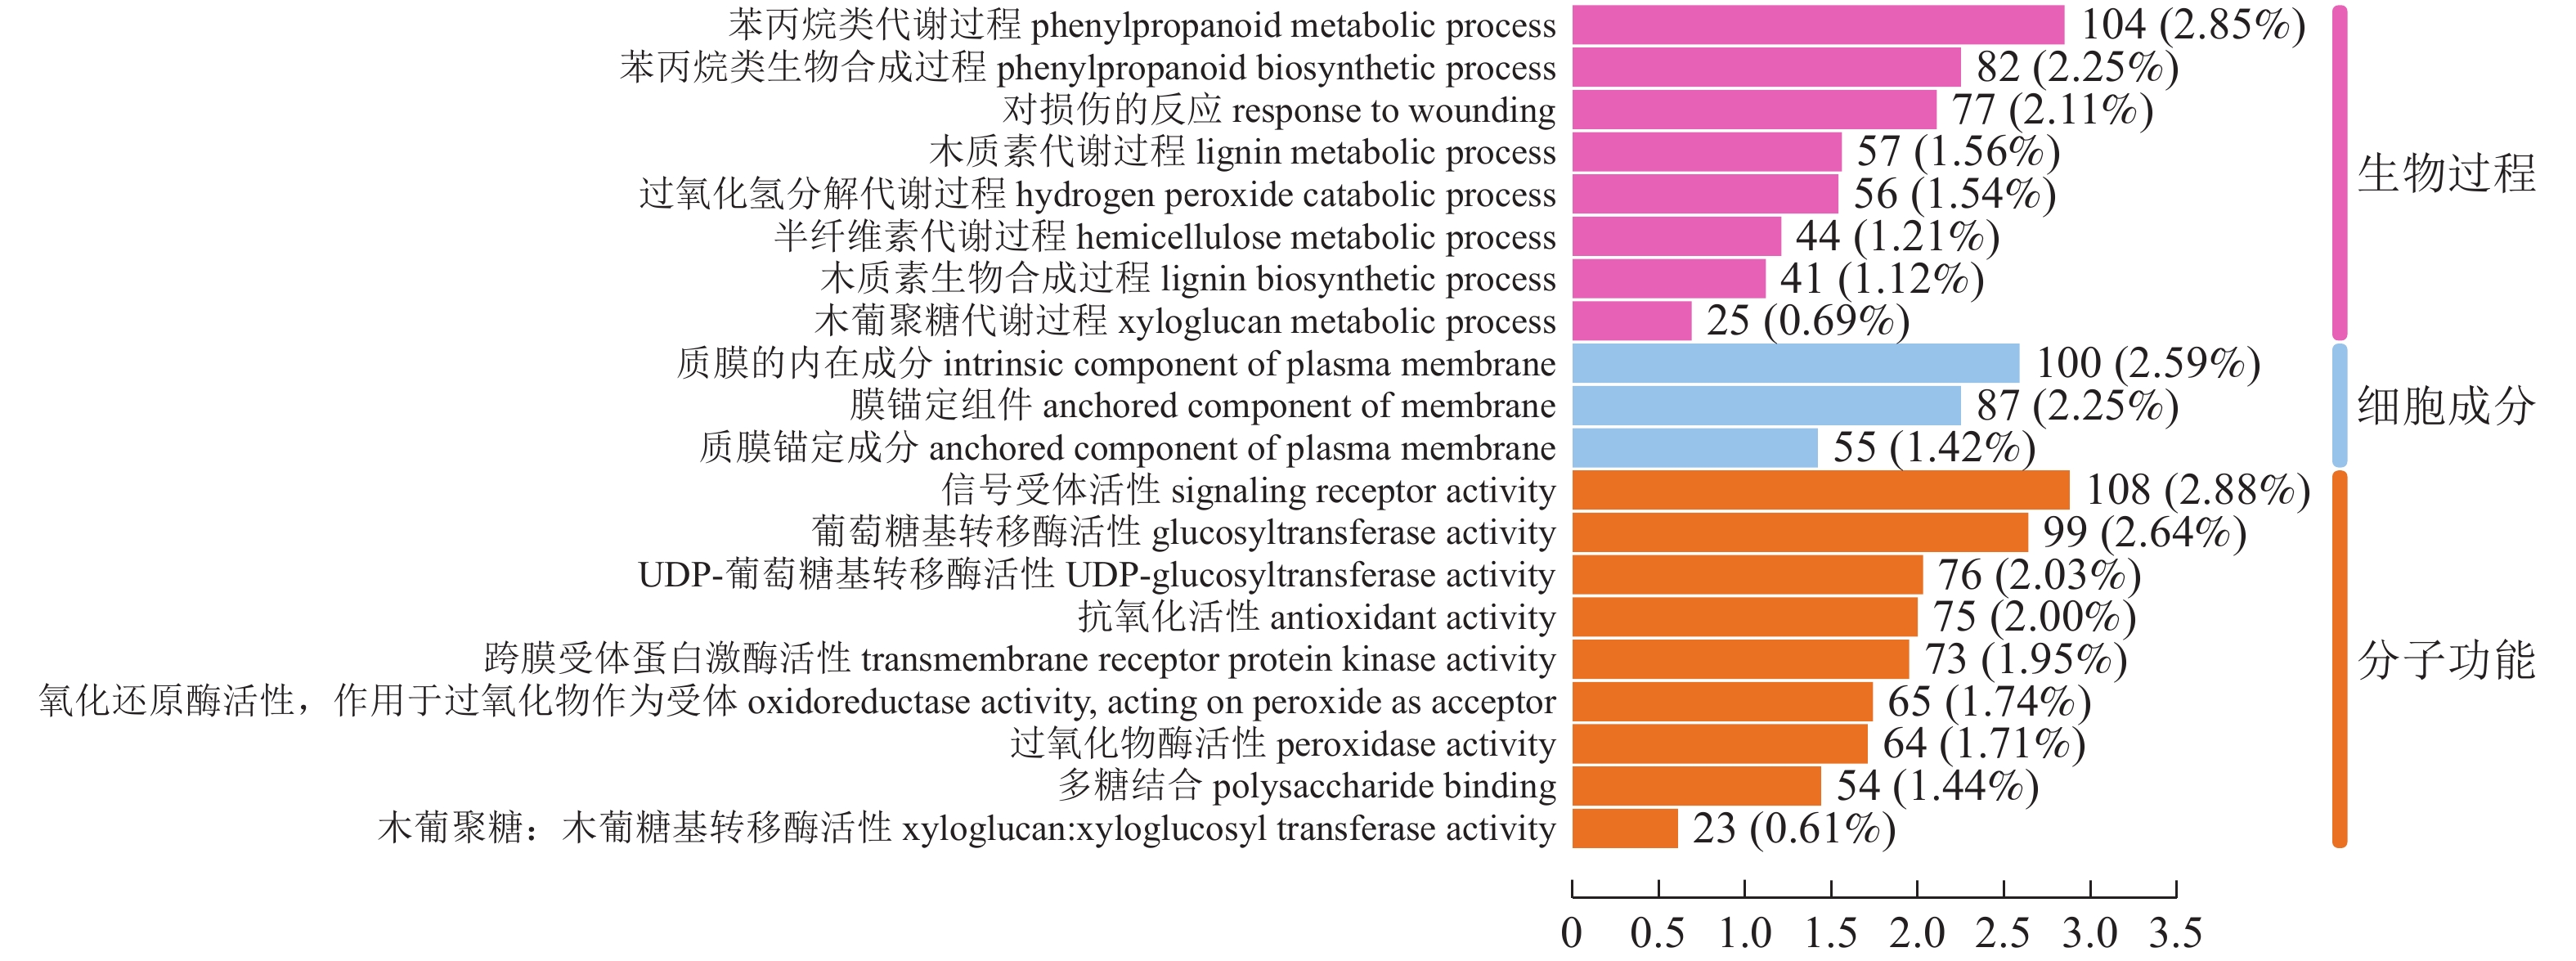
转录组分析共鉴定出5 299个DEGs,其中2 604个上调、2 695个下调。GO富集分析表明:DEGs在生物过程分类中显著富集于苯丙烷类代谢过程(GO: 0009698)、苯丙烷生物合成(GO: 0009699)、对损伤的反应(GO: 0009611)和木质素代谢(GO: 0009808)等条目(图6)。这些条目与细胞壁木质化和次生壁修饰密切相关,提示Cd50处理可能促进苯丙烷途径供给木质素前体,并通过氧化还原酶和转移酶相关基因调节木质素聚合及细胞壁多糖修饰。细胞组分中,DEGs主要分布于膜锚定组分、质膜内在成分和质膜锚定组分;分子功能中则富集于抗氧化活性、氧化还原酶活性、转移酶活性和葡萄糖基转移酶活性等类别(图6)。
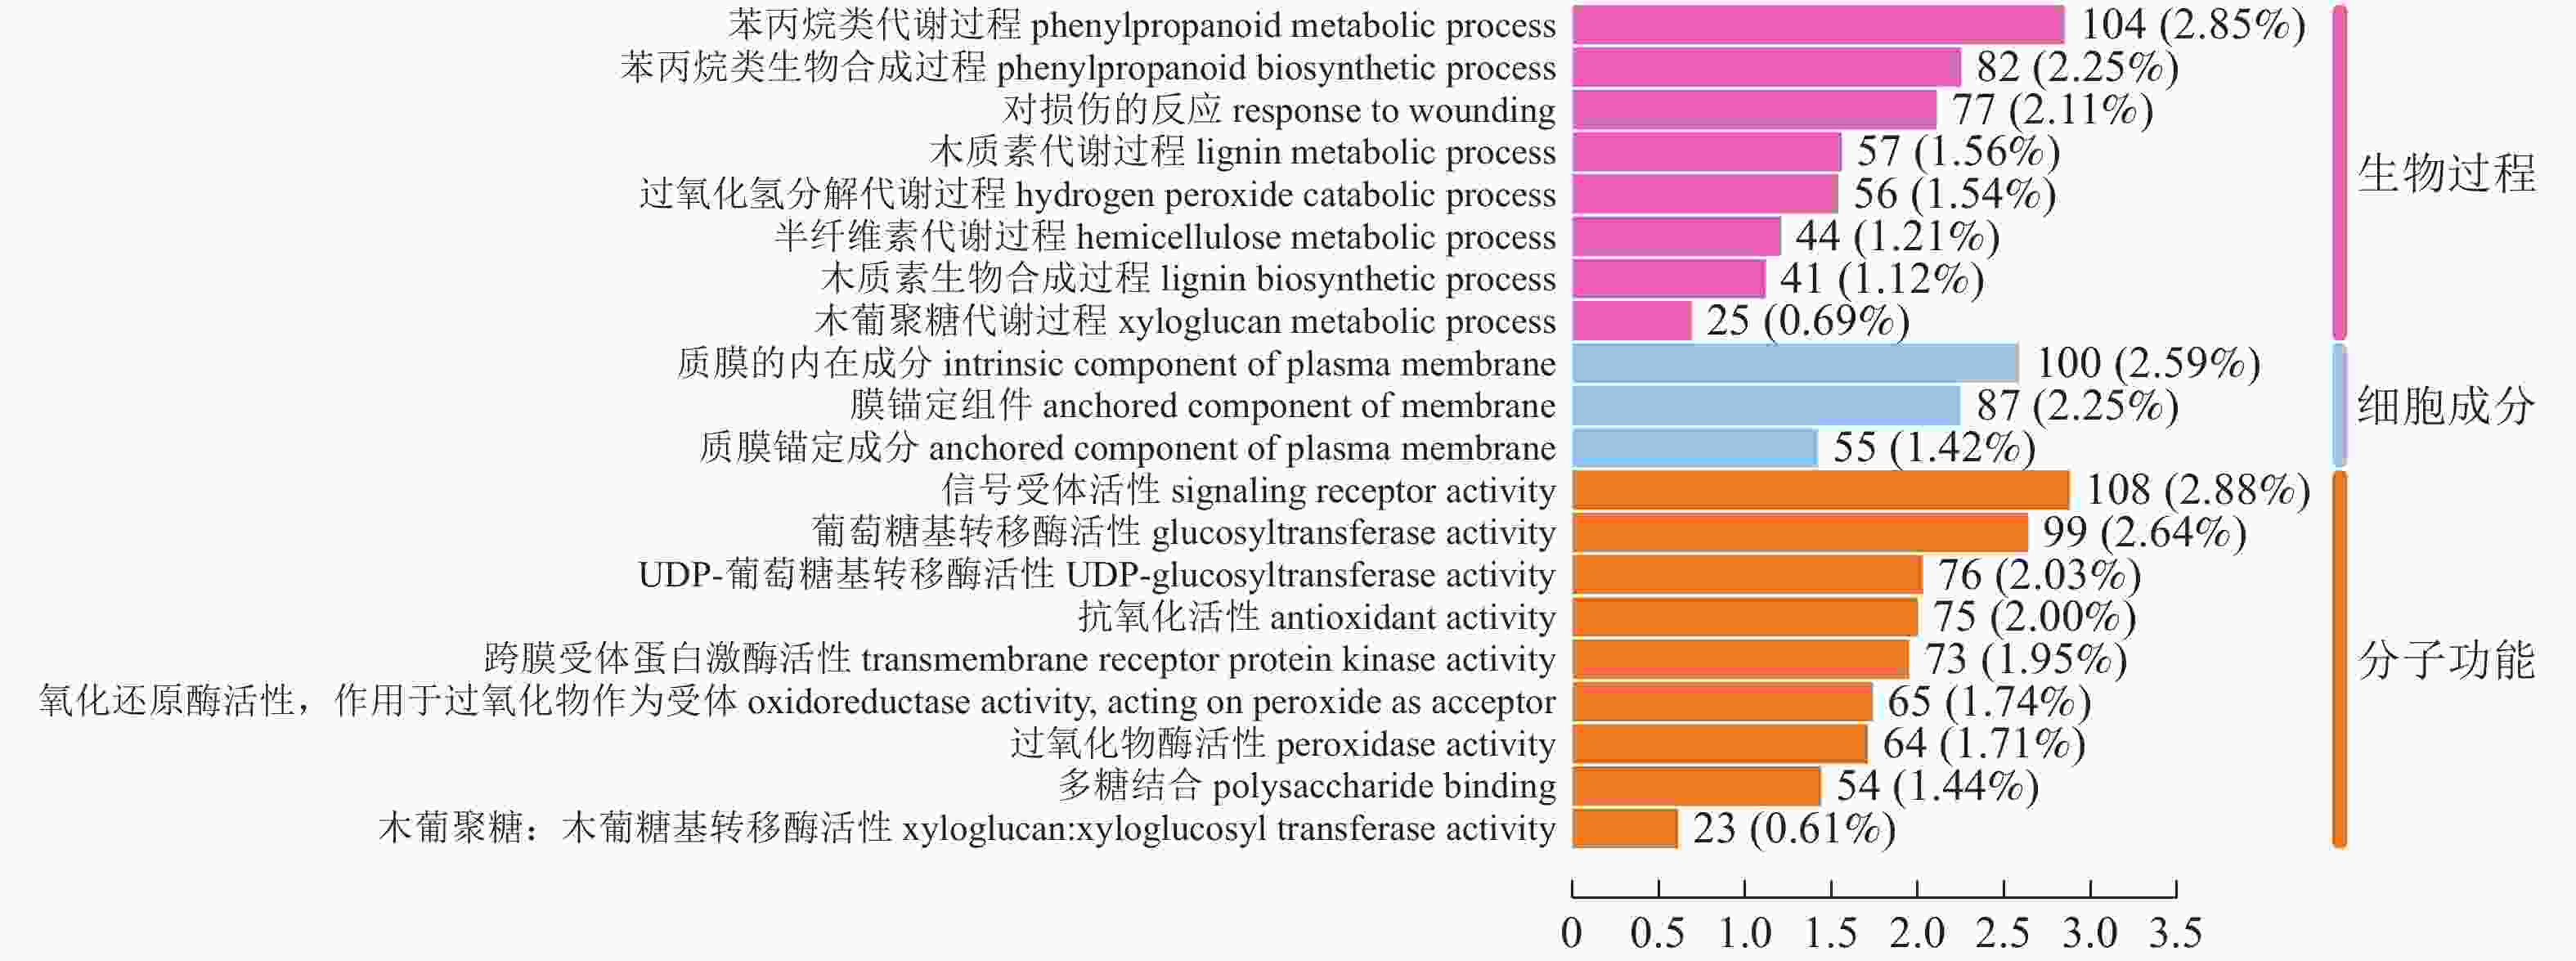
图 6 镉胁迫前后差异基因富集的排名前20的不同生物过程的GO条目
Figure 6. Top 20 GO terms of different biological processes
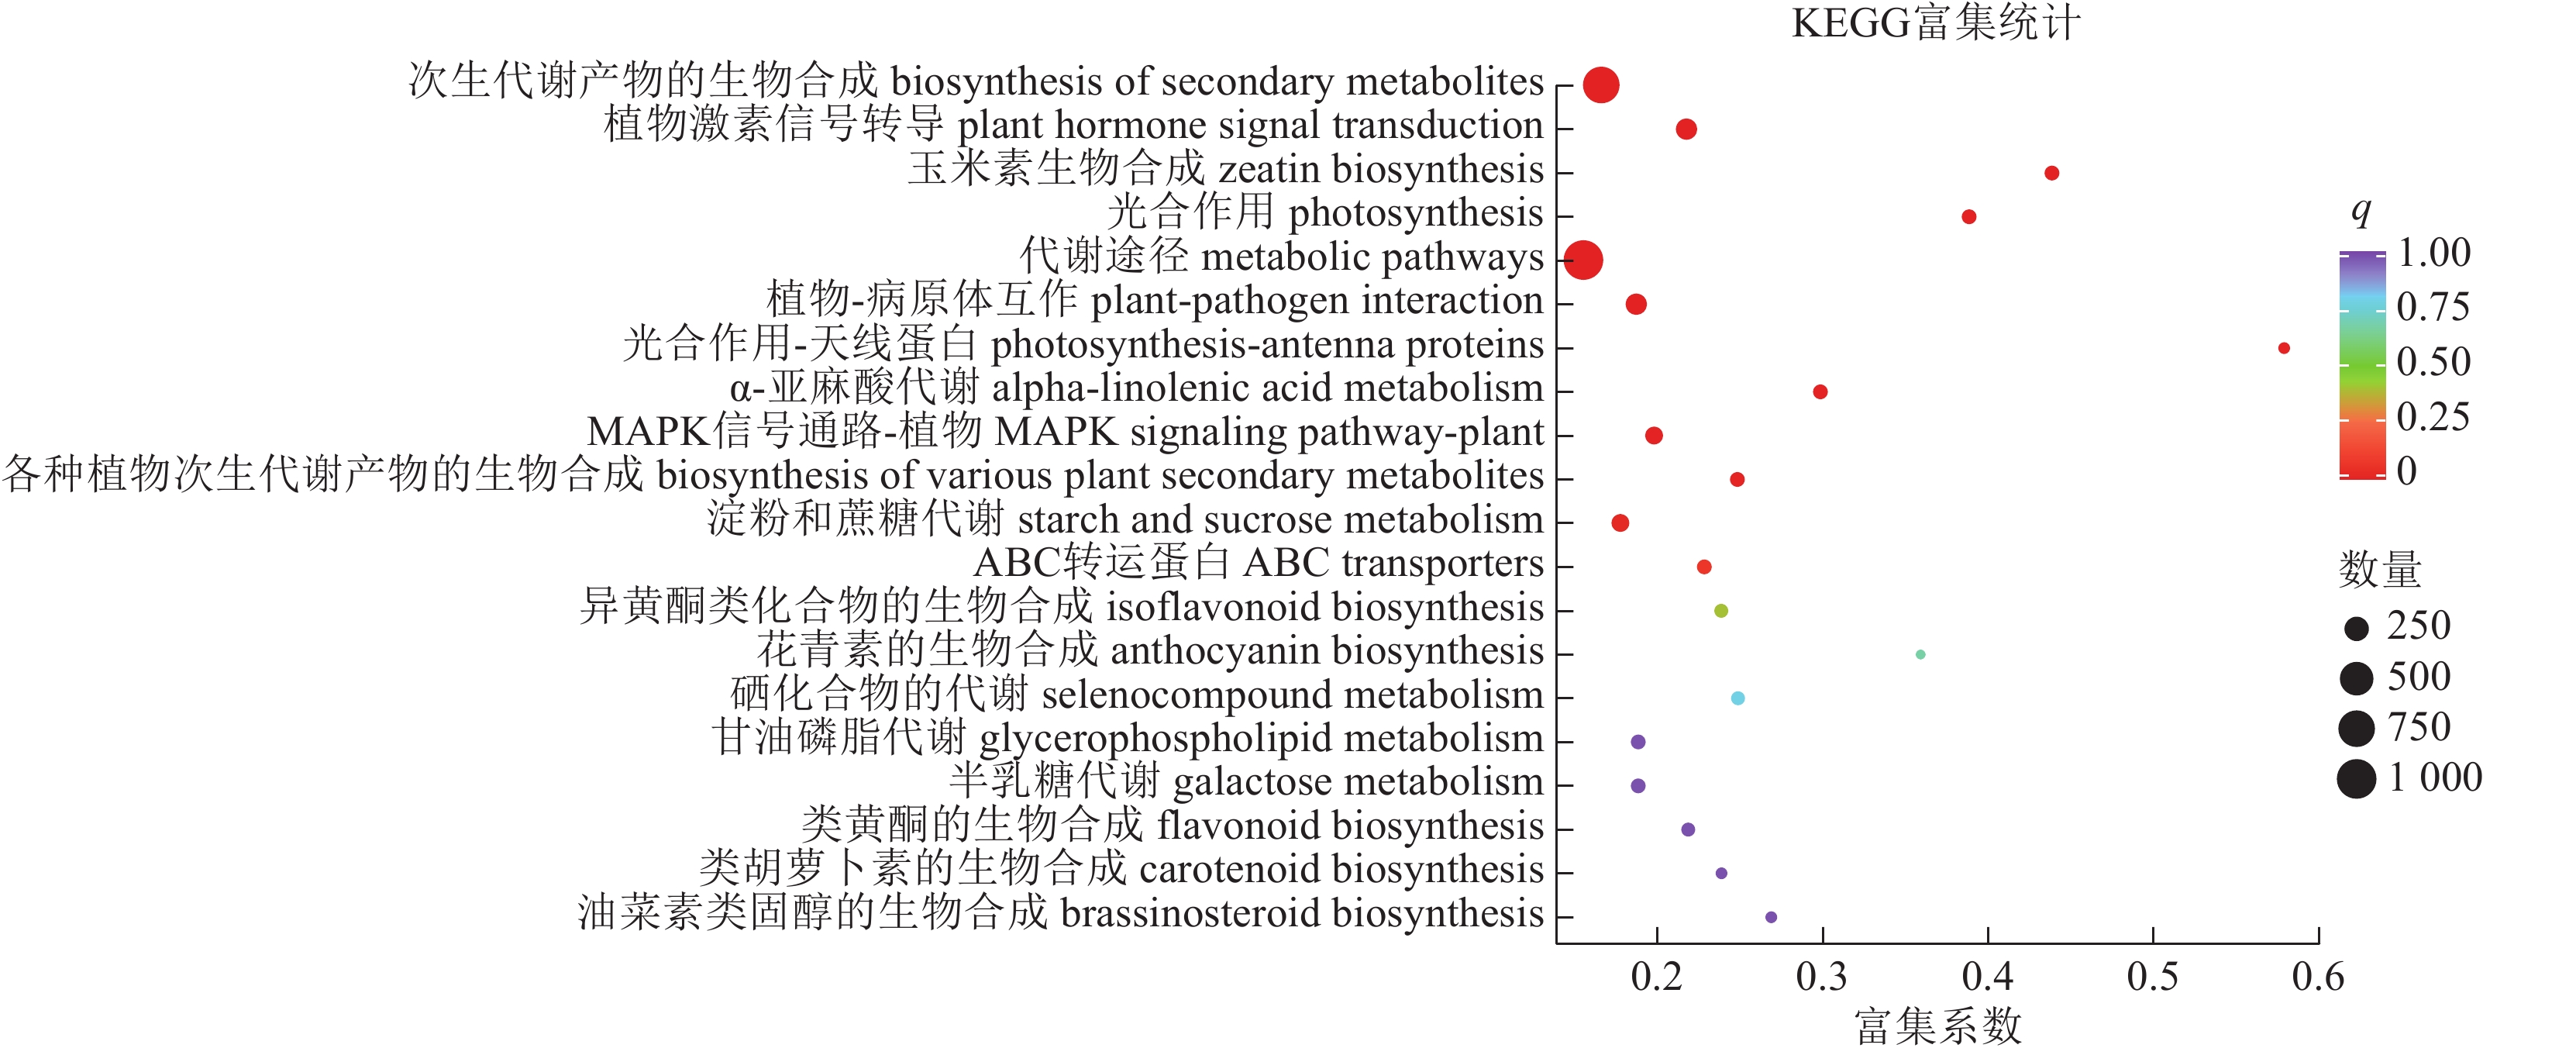
KEGG富集分析进一步显示:DEGs主要分配到代谢途径和次生代谢物生物合成相关通路,并显著富集于MAPK信号通路(ko04016)、ABC转运体(ko02010)、淀粉和蔗糖代谢(ko00500)以及植物激素信号转导(ko04075)等途径(图7)。结合GO结果可见:Cd50处理同时激活了细胞壁木质化、抗氧化防御、糖代谢供能和跨膜运输过程,为根系结构防御与Cd再分配提供了分子基础。
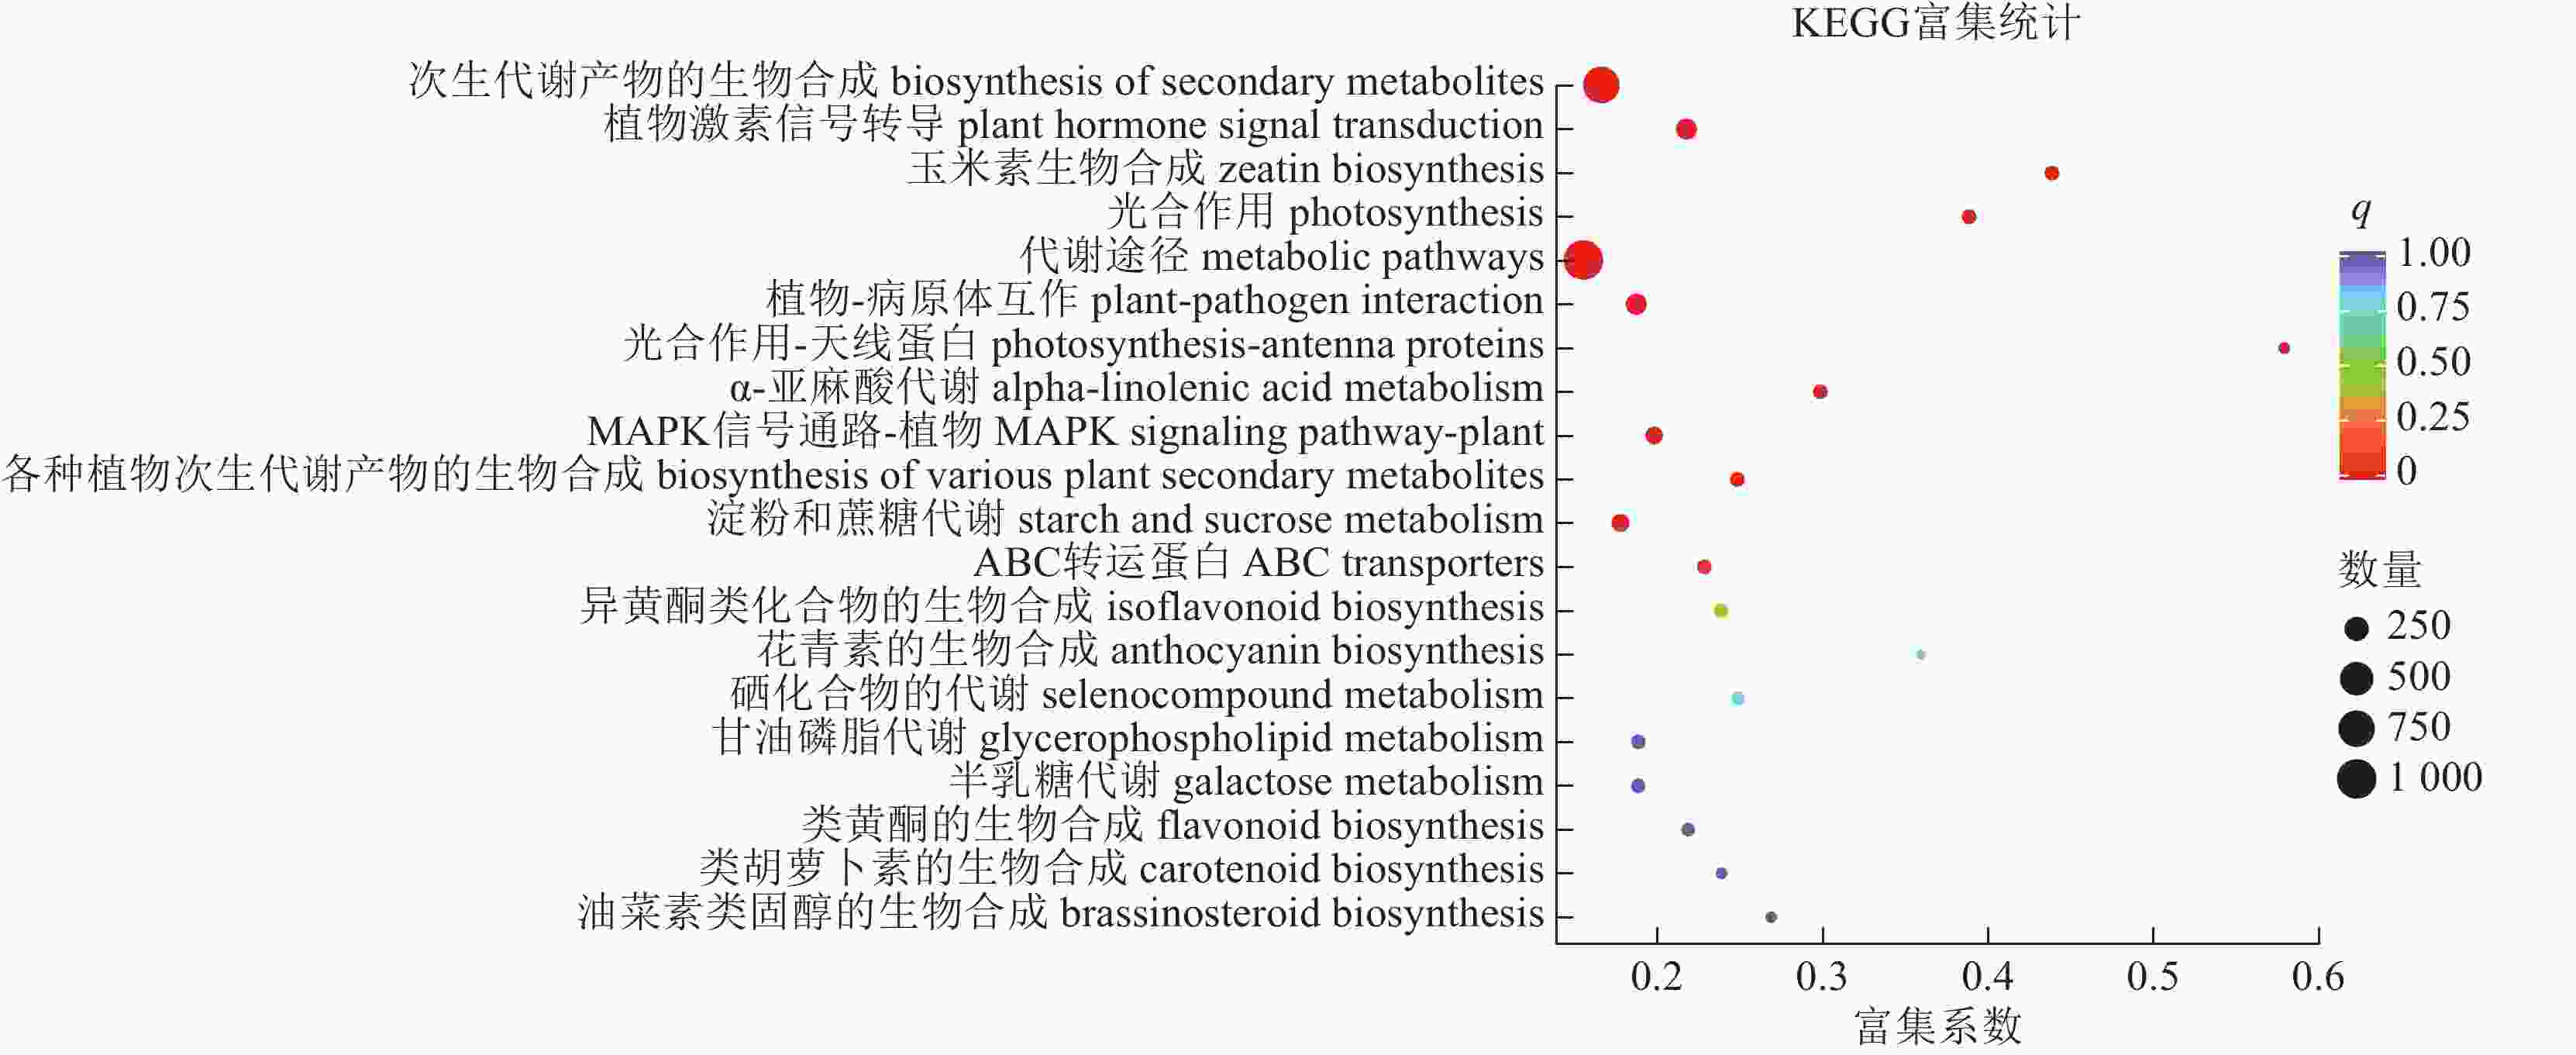
图 7 差异基因KEGG富集分析
Figure 7. KEGG enrichment analysis of differentially expressed genes
-
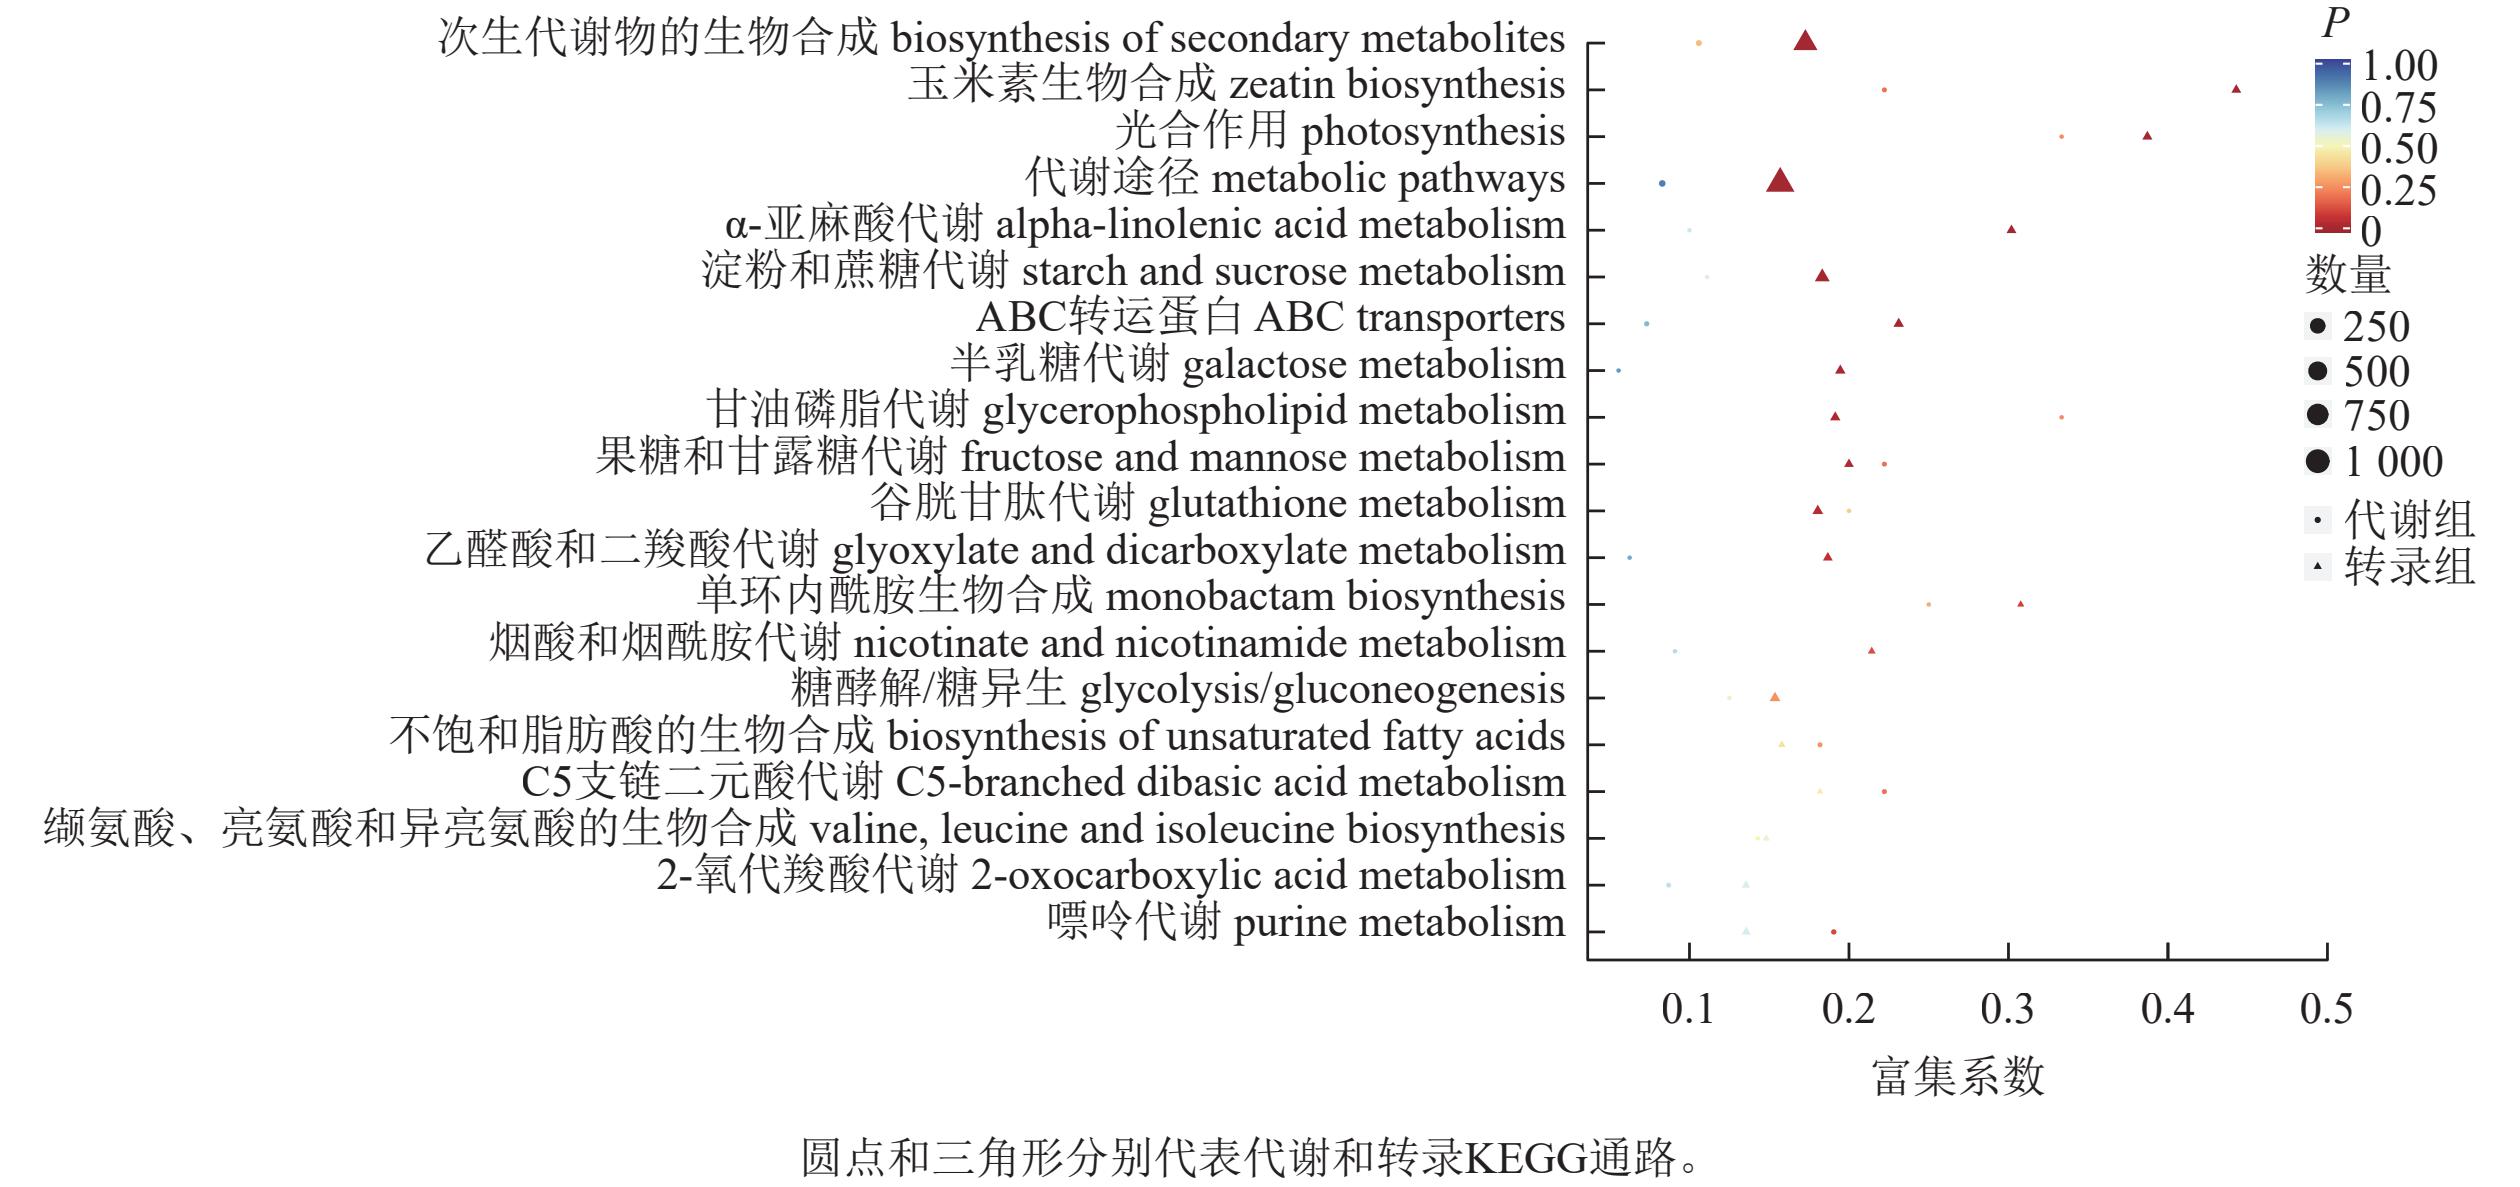
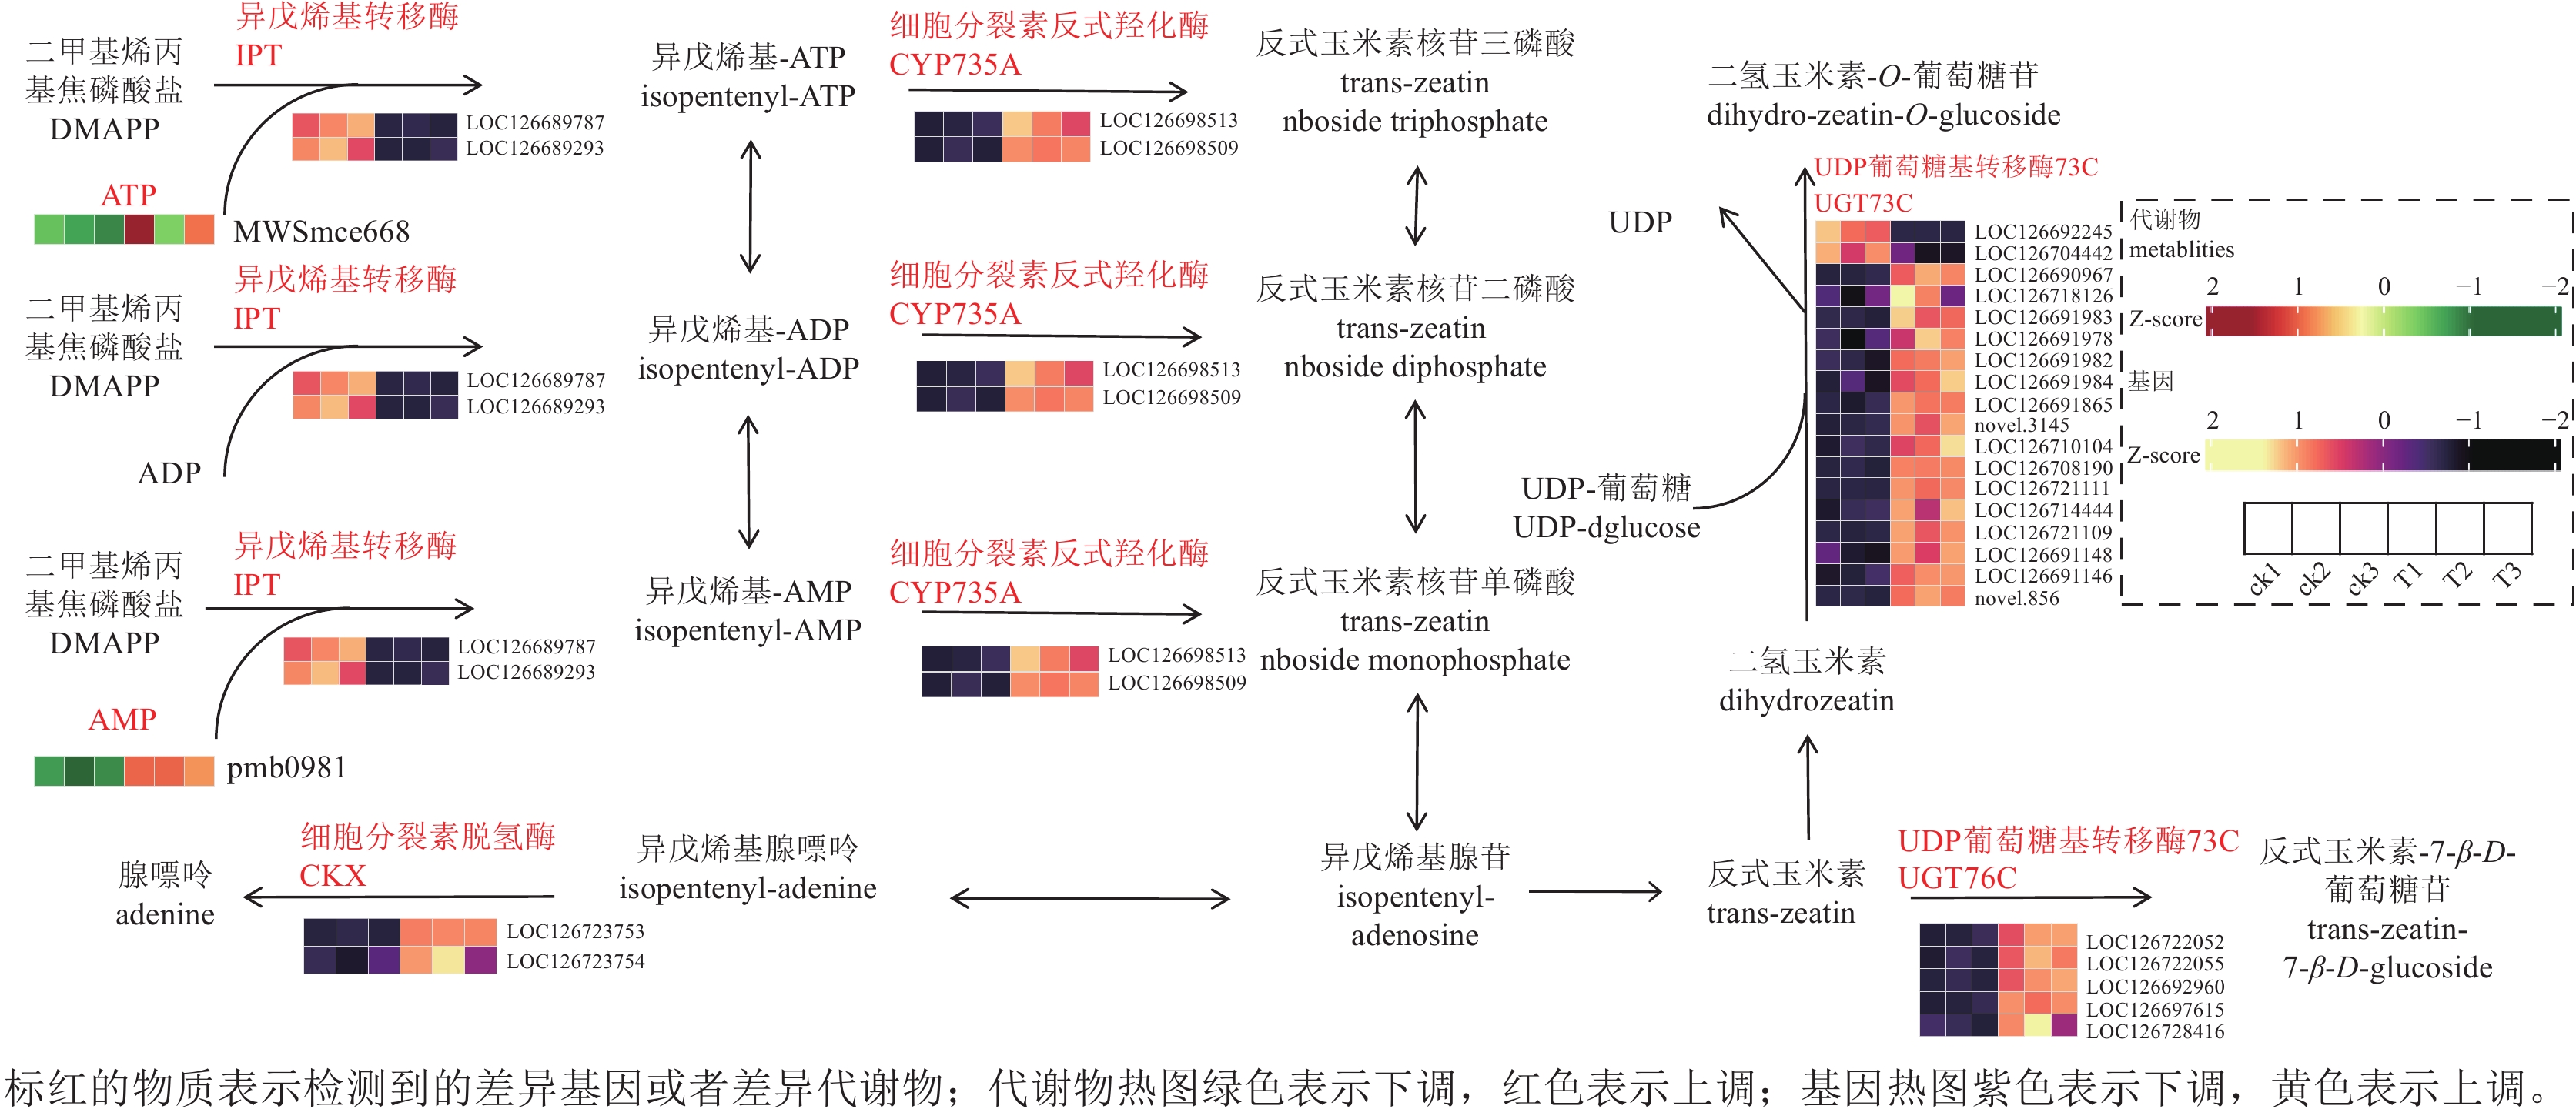
为进一步筛选Cd胁迫相关的关键生物学途径,本研究比较转录组和代谢组KEGG富集结果,获得DEGs和显著差异的代谢产物(differentially accumulated metabolites,DAMs)共同富集通路。共富集分析显示,代谢途径和次生代谢物生物合成最为显著;玉米素生物合成、淀粉和蔗糖代谢、谷胱甘肽代谢和ABC转运体等通路也明显富集(图8)。进一步分析玉米素生物合成通路(图9)发现,玉米素合成起始于ATP或AMP,经异戊烯基转移酶(IPT)催化生成异戊烯基腺嘌呤(iP)型细胞分裂素前体,随后由CYP735A羟基化生成活性较高的反式玉米素。热图结果显示,Cd50处理下部分IPT和CYP735A家族成员上调,UGT76C、CKX及UGT73C家族成员也表现出不同程度的表达变化,提示玉米素合成、活化和失活过程均参与Cd胁迫响应。
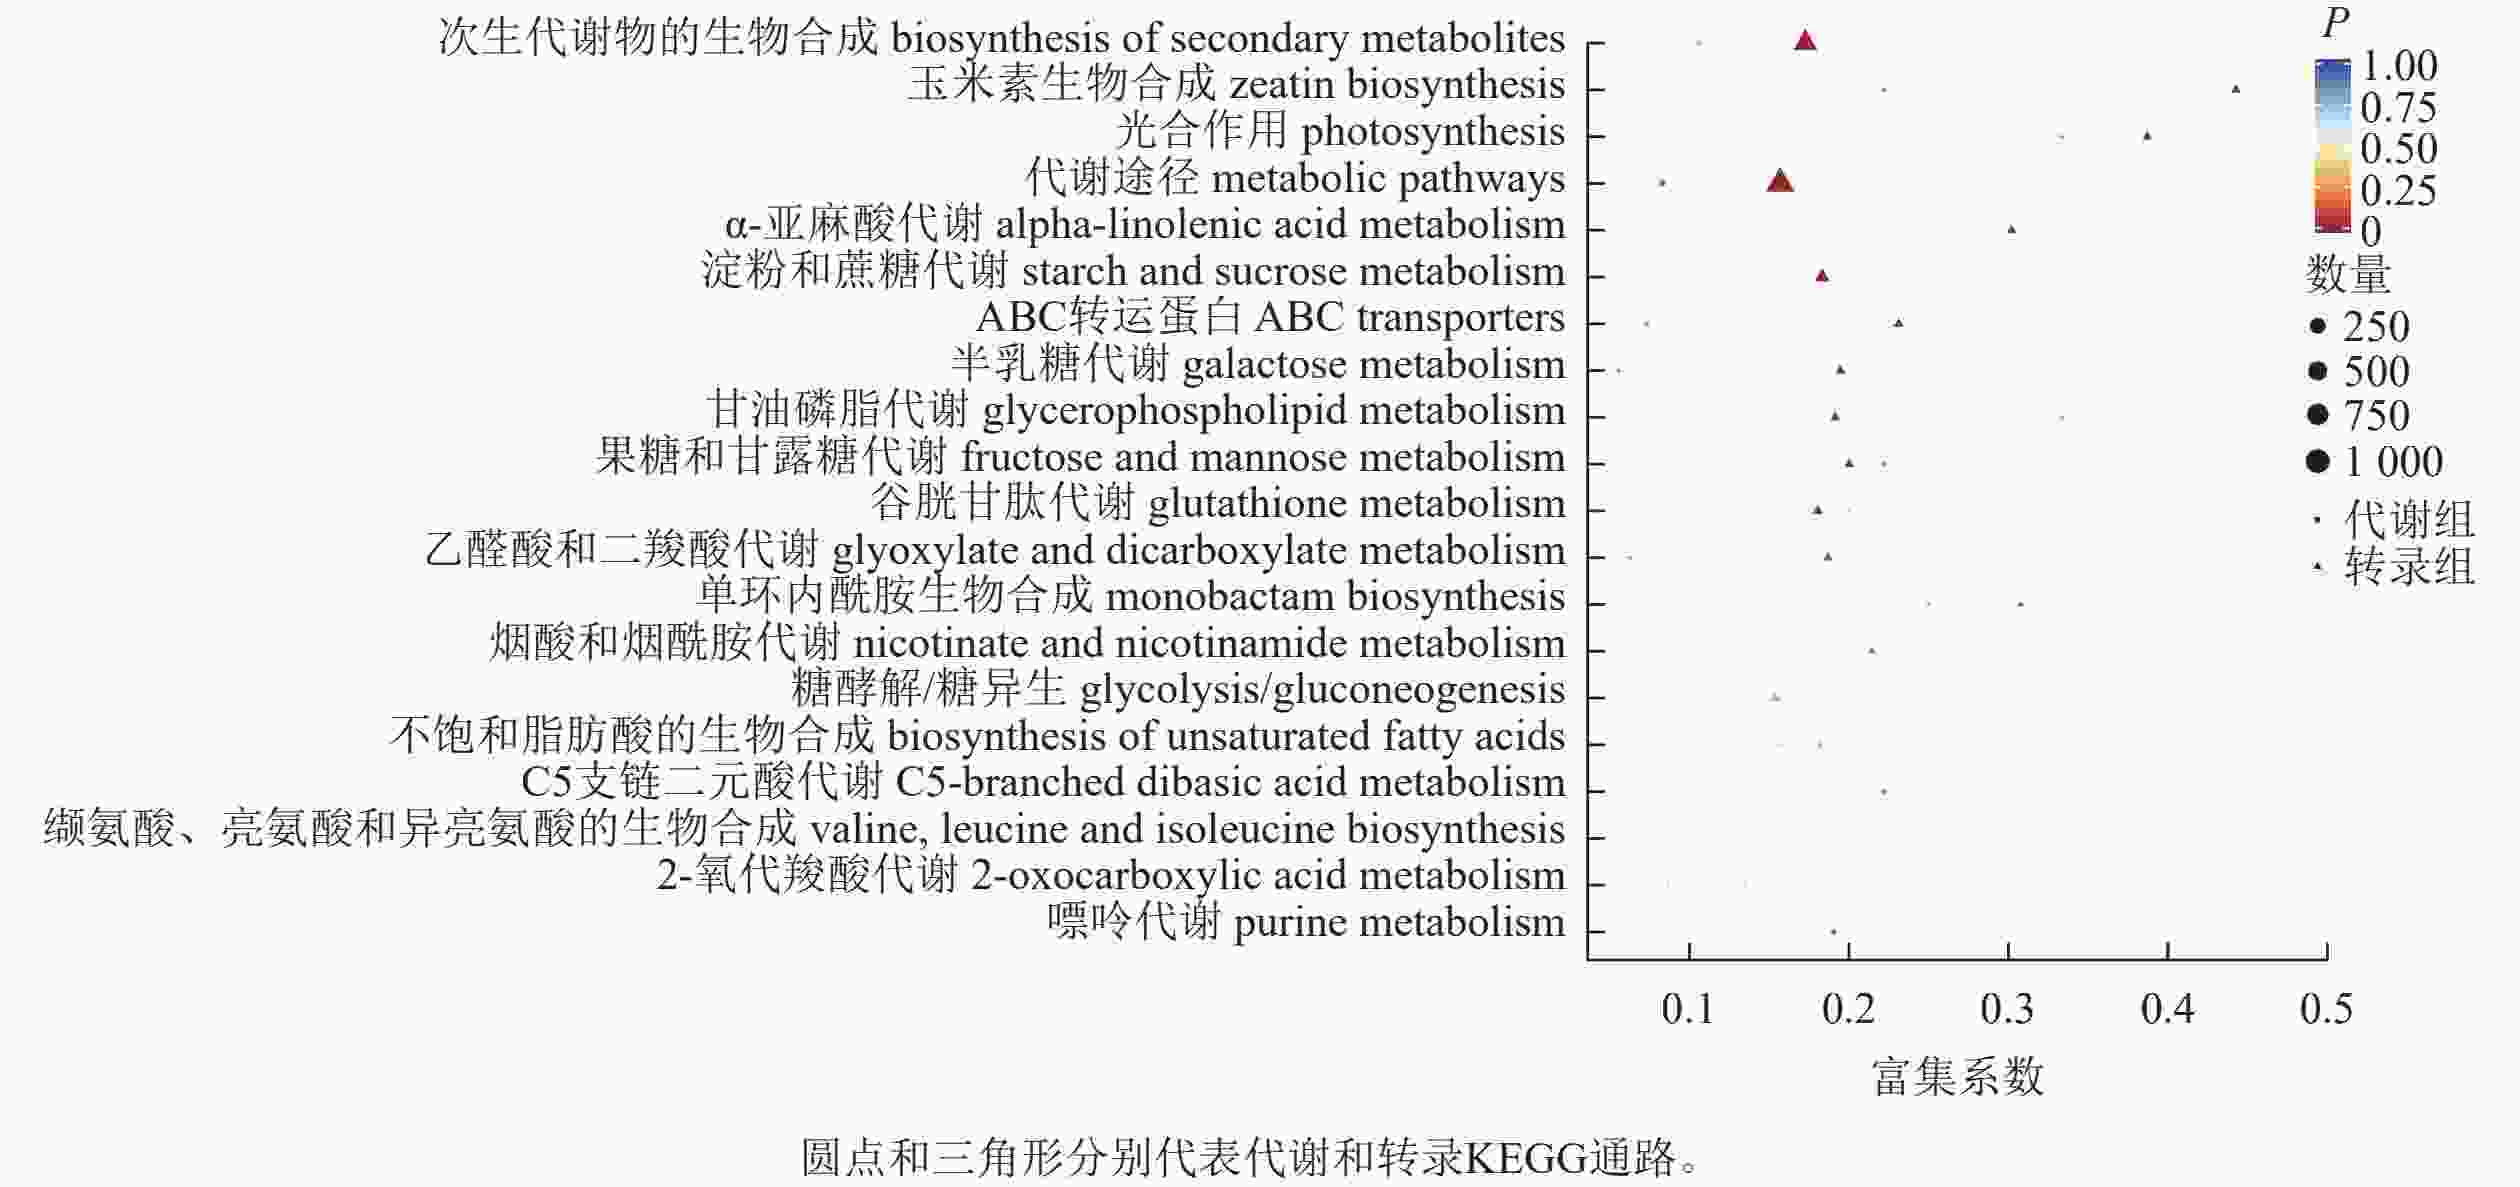
图 8 转录组和代谢组共富集分析
Figure 8. Co-enrichment analysis of transcriptome and metabolome
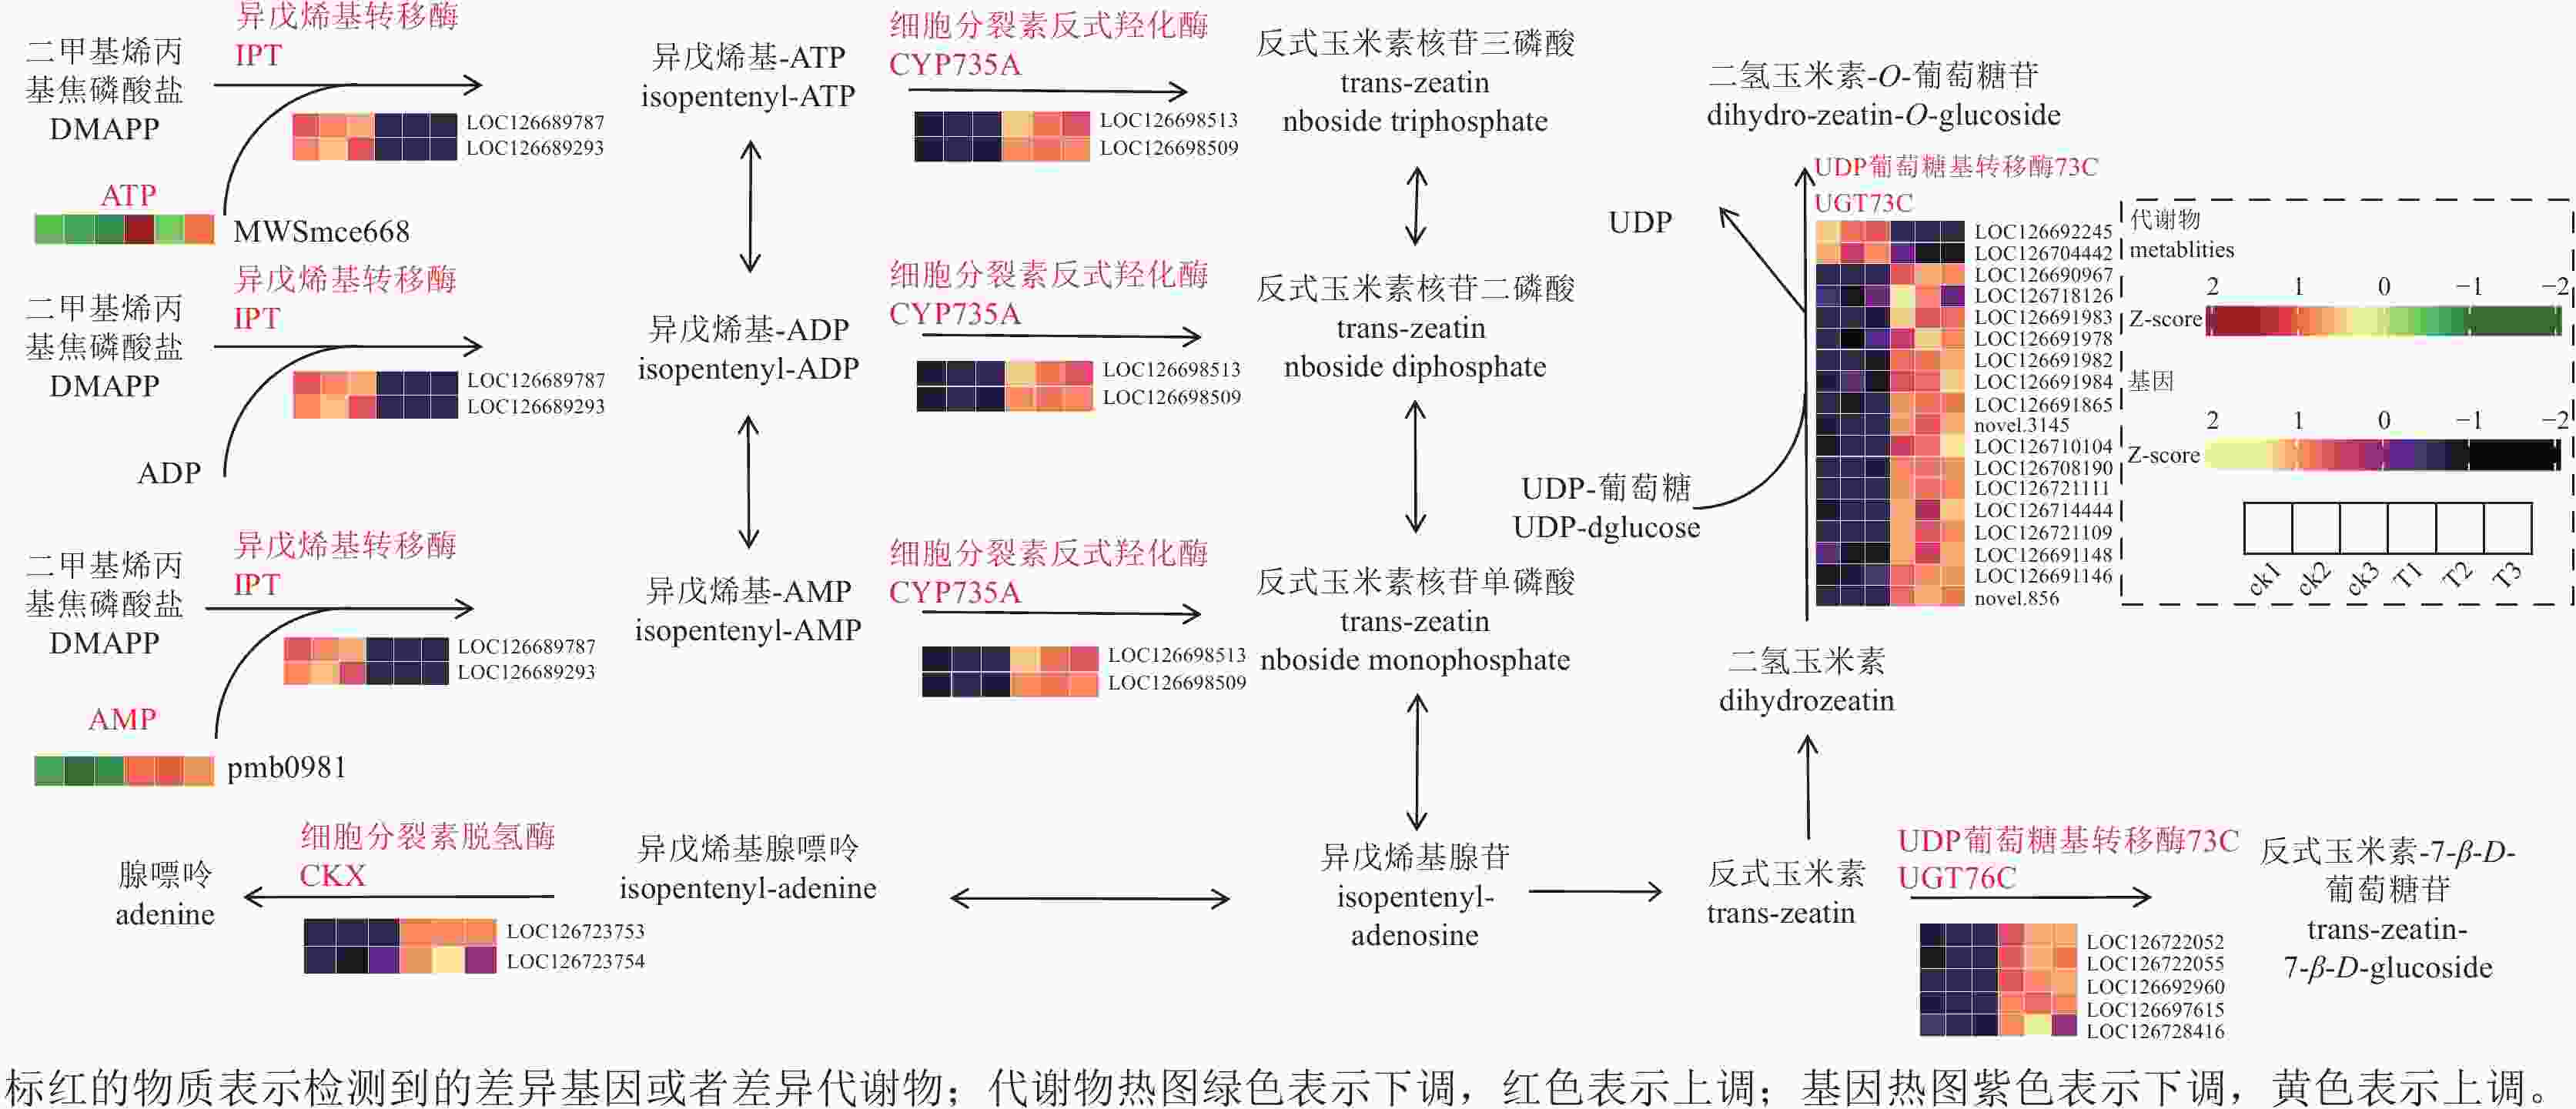
图 9 玉米素生物合成通路联合分析
Figure 9. Combined analysis of zeatin biosynthesis pathway
-
Cd胁迫下植物的适应策略通常体现为根系防御、离子区隔化和体内分配之间的平衡。本研究发现,娜塔栎Cd响应具有明显浓度依赖性。Cd10处理下,地上部生物量未显著降低,Cd主要在根系中滞留(303.67 mg·kg−1,TF=0.25),说明根系细胞壁吸附、螯合和区隔化等防御过程可能足以限制Cd向地上部迁移[24−25]。Cd50处理下,叶片和茎生物量显著下降,说明高浓度Cd已对光合作用、矿质元素稳态和代谢过程造成较强干扰[6−8];但根系生物量仍保持相对稳定,同时TF升至7.08,茎中Cd占植株Cd总量的74%。这表明娜塔栎在高浓度Cd下并非单纯增强根系滞留,而是可能在根系固定能力趋于饱和或根系毒性压力升高后,启动ABC转运体、激素信号和木质部运输相关过程,将部分Cd或Cd-螯合物向地上部分配,以降低根系局部毒性。LI等[4]的田间研究也观察到娜塔栎可将较多Cd转移至地上部。本研究进一步说明,这一高转运特征与根系结构防御和分子运输过程的协同有关;但高TF同时伴随地上部生长受抑,因而更适宜理解为“防御-转运”权衡下的适应性分配,而非简单的高生长耐受。
根系是植物感知Cd胁迫和限制Cd毒性的第一道屏障。本研究中,Cd50处理使娜塔栎根系细胞壁平均厚度显著增加,但加厚现象在细胞间具有一定异质性,这可能与不同细胞发育阶段、壁区木质化程度和Cd局部积累差异有关。类似的细胞壁加厚已在苦荞麦Fagopyrum tataricum[26]和东南景天Sedum alfredii[27]等植物Cd响应中被观察到,说明细胞壁强化是植物降低重金属毒性的常见策略。转录组结果进一步支持这一解释:DEGs显著富集于苯丙烷代谢、木质素代谢和木质素生物合成等GO条目,且氧化还原酶、转移酶和葡萄糖基转移酶活性相关基因富集,提示木质素前体合成、氧化聚合和细胞壁多糖修饰可能被共同激活。细胞壁加厚可提高Cd在细胞外空间的结合与缓冲能力,降低Cd快速进入细胞质的风险[27−28]。与此同时,KEGG中ABC转运体通路显著富集,说明未被细胞壁固定的Cd或Cd-螯合物可能进一步通过跨膜运输和木质部装载向地上部转移。由此推测,娜塔栎高浓度Cd响应并非单一路径,而是细胞壁屏障与主动转运共同作用的结果。
植物激素可通过调节根-冠信号、气孔行为和运输过程参与重金属胁迫响应[29−30]。其中,细胞分裂素在协调根系信号与地上部生长方面具有重要作用。玉米素是细胞分裂素的主要活性形式之一,可在根系中合成并随木质部汁液向地上部运输[31−32];CYP735A1和CYP735A2能够催化异戊烯基腺嘌呤型细胞分裂素羟基化,促进反式玉米素型细胞分裂素的生成,进而影响根-冠细胞分裂素信号和地上部生长[33−34]。已有研究表明,增强IPT表达可提高木质部和叶片细胞分裂素水平,并影响气体交换、气孔调节和蒸腾等生理过程[35,42];此外,外源施用细胞分裂素在部分植物中能够缓解重金属胁迫造成的生长抑制和生理损伤[36−37]。本研究的转录组-代谢组联合分析显示,玉米素生物合成与ABC转运体、谷胱甘肽代谢和糖代谢等通路均发生富集,且部分IPT、CYP735A、UGT和CKX家族成员发生表达变化,表明Cd50处理可能影响细胞分裂素的合成、修饰与降解过程。类似地,WANG等[38]在玉米Zea mays Cd耐受研究中也发现玉米素生物合成是Cd响应的重要富集通路,提示该途径可能是植物响应Cd胁迫的共同调控节点。由于CYP735A介导的代谢转化能够改变iP型与反式玉米素型细胞分裂素的相对组成,因此相关基因的表达变化可能进一步影响根源细胞分裂素信号及其对地上部生理过程的调节。在Cd胁迫下,细胞分裂素介导的蒸腾调节可能直接影响Cd的体内迁移。 Cd进入根系后可通过木质部向地上部迁移,尽管不同植物对Cd的积累能力存在差异,但蒸腾作用普遍被认为是Cd或Cd-螯合物经木质部长距离运输的重要动力[39−41]。综合上述结果推测,玉米素生物合成及代谢变化可能通过影响根-冠细胞分裂素信号、气孔行为和蒸腾过程,间接参与Cd50处理下Cd向地上部的运输与分配。当然,这一推测仍需结合玉米素含量、气孔导度、蒸腾速率及木质部汁液Cd形态等指标进一步验证。
-
娜塔栎苗期Cd响应表现出明显浓度依赖性。Cd10处理下,Cd主要滞留于根系且地上部生长受影响较小;Cd50处理下,根系维持相对稳定的生物量分配,同时细胞壁平均厚度增加,液泡化增强,并伴随苯丙烷/木质素代谢、ABC转运体、糖代谢和植物激素相关通路富集。上述结果表明,娜塔栎可能通过细胞壁屏障、代谢调节、转运体激活和玉米素相关信号协同调控Cd防御与地上部分配。本研究从生理和多组学层面揭示了娜塔栎根系Cd响应与转运机制,为其作为镉污染土壤修复候选木本材料的进一步评价提供理论依据。
Cadmium response and transport mechanisms in roots of Quercus texana seedlings
-
摘要:
目的 镉(Cd)胁迫下木本植物如何在根系防御与体内转运之间协调响应,是评价其耐镉能力和修复适用性的关键。本研究以娜塔栎Quercus texana苗期植株为对象,解析不同Cd水平下根系防御强化、Cd积累分配及相关分子响应之间的联系。 方法 采用水培法设置0、10和50 μmol·L−1Cd(NO3)2处理(分别以Cd0、Cd10和Cd50表示),测定生物量分配、组织Cd含量和转移系数(TF),并利用透射电镜观察根系细胞壁超微结构;在Cd0和Cd50根系样品中开展广靶代谢组和转录组分析,筛选差异累积代谢物(DAMs)和差异表达基因(DEGs),进一步进行GO、KEGG及转录组-代谢组共富集分析。 结果 Cd10处理下娜塔栎地上部生长受影响较小,Cd主要滞留于根系(303.67 mg·kg−1,TF=0.25),表明低浓度Cd暴露时根系滞留是主要响应方式;当Cd浓度升至Cd50时,叶片和茎生物量分别显著下降63.9%和52.4%,但根系生物量维持相对稳定,根系细胞壁平均厚度增加28%,液泡化程度增强,同时Cd由根系滞留转向地上部分配,茎中Cd占植株Cd总量的74%,TF升至7.08。多组学分析表明,Cd50处理诱导53种DAMs和5 299个DEGs发生显著变化,相关通路集中于苯丙烷和木质素代谢、ABC转运体、淀粉和蔗糖代谢、谷胱甘肽代谢以及植物激素信号转导等过程。转录组-代谢组联合分析进一步显示,玉米素生物合成通路与Cd转运相关通路共同富集,提示根源细胞分裂素信号可能通过影响木质部运输和蒸腾驱动过程参与Cd向地上部转运。 结论 娜塔栎苗期对Cd响应具有明显浓度依赖性:低浓度Cd下以根系滞留为主,高浓度Cd下则表现为细胞壁防御、代谢调节、转运体激活和地上部分配协同增强。本研究为了解娜塔栎耐镉及Cd转运机制提供了生理和多组学依据并为镉污染土壤修复候选木本材料的评价提供参考。 Abstract:Objective How woody plants coordinate root defense with internal Cd transport under cadmium (Cd) stress is essential for evaluating their Cd tolerance and remediation applicability. This study investigated the links among root defense enhancement, Cd accumulation and allocation, and related molecular responses in Quercus texana seedlings exposed to different Cd levels. Method Seedlings were treated hydroponically with 0 (Cd0), 10 (Cd10), and 50 μmol·L−1 (Cd50) Cd(NO3)2. Biomass allocation, tissue Cd concentration, and the transfer factor (TF) were measured, and root cell-wall ultrastructure was observed by transmission electron microscopy. Broad-target metabolomic and transcriptomic analyses were performed on Cd0 and Cd50 roots to identify differentially accumulated metabolites (DAMs) and differentially expressed genes (DEGs), followed by GO, KEGG, and transcriptome-metabolome KEGG co-enrichment analyses. Result Under Cd10, aboveground growth was only slightly affected, and Cd was mainly retained in roots (303.67 mg·kg−1, TF=0.25), indicating that root retention was the dominant response at low Cd exposure. When Cd concentration increased to Cd50, leaf and stem biomass decreased by 63.9% and 52.4%, respectively, whereas root biomass remained relatively stable. Meanwhile, the mean root cell-wall thickness increased by 28%, vacuolization was enhanced, and Cd allocation shifted from root retention to aboveground distribution, with stems accounting for 74% of total plant Cd and TF increasing to 7.08. Multi-omics analyses identified 53 DAMs and 5 299 DEGs under Cd50, with enriched pathways mainly involving phenylpropanoid and lignin metabolism, ABC transporters, starch and sucrose metabolism, glutathione metabolism, and plant hormone signal transduction. Integrated analysis further showed that zeatin biosynthesis was co-enriched with Cd transport-related pathways, suggesting that root-derived cytokinin signaling may participate in aboveground Cd transport by affecting xylem transport and transpiration-driven processes. Conclusion Cd responses in Q. texana seedlings were concentration dependent: low Cd exposure mainly induced root retention, whereas high Cd exposure enhanced the coordination of cell-wall defense, metabolic regulation, transporter activation, and aboveground Cd allocation. These findings provide physiological and multi-omics evidence for understanding Cd tolerance and transport mechanisms in Q. texana and a reference for further evaluating it as a candidate woody material for Cd-contaminated soil remediation. -
Key words:
- Quercus texana /
- cadmium stress /
- root defense /
- cadmium transport /
- cell wall
-
图 1 3种镉胁迫下娜塔栎不同组织生物量
Figure 1 Biomass of different tissues of Q.texana under 3 cadmium stresses
图 2 镉胁迫下娜塔栎根系细胞壁厚度
Figure 2 Cell wall thickness of Q.texana roots under cadmium stress
图 3 镉胁迫下不同组织镉累积及转运
Figure 3 Cd accumulation and transport in different tissues under Cd stress
图 4 差异代谢物筛选与功能解析
Figure 4 Screening and functional analysis of differential metabolites
图 5 差异代谢物富集的前20个KEGG通路
Figure 5 Top 20 KEGG pathways enriched for differential metabolites
图 6 镉胁迫前后差异基因富集的排名前20的不同生物过程的GO条目
Figure 6 Top 20 GO terms of different biological processes
-
[1] HU Jihong, CHEN Guanglong, XU Kui, et al. Cadmium in cereal crops: uptake and transport mechanisms and minimizing strategies[J]. Journal of Agricultural and Food Chemistry, 2022, 70(20): 5961−5974. DOI: 10.1021/acs.jafc.1c07896. [2] ALLOWAY B J. Heavy Metals in Soils: Trace Metals and Metalloids in Soils and Their Bioavailability[M]. Dordrecht: Springer, 2013. DOI: 10.1007/978-94-007-4470-7. [3] WANG Zhou, LUO Pingping, ZHA Xianbao, et al. Overview assessment of risk evaluation and treatment technologies for heavy metal pollution of water and soil[J]. Journal of Cleaner Production, 2022, 379: 134043. DOI: 10.1016/j.jclepro.2022.134043. [4] LI Xiaogang, XIAO Jiang, SALAM M M A, et al. Evaluation of dendroremediation potential of ten Quercus spp. for heavy metals contaminated soil: a three-year field trial[J]. Science of the Total Environment, 2022, 851: 158232. DOI: 10.1016/j.scitotenv.2022.158232. [5] 李业庆, 郑叶, 魏奕博, 等. 不同绿化树种对镉的富集特征[J]. 浙江农林大学学报, 2024, 41(4): 752−759. LI Yeqing, ZHENG Ye, WEI Yibo, et al. Cd accumulation characteristics of different greening tree species[J]. Journal of Zhejiang A&F University, 2024, 41(4): 752−759. DOI: 10.11833/j.issn.2095-0756.20230630. [6] 熊敏先, 吴迪, 许向宁, 等. 土壤重金属镉对高等植物的毒性效应研究进展[J]. 生态毒理学报, 2021, 16(6): 133−149. XIONG Minxian, WU Di, XU Xiangning, et al. Advances in toxic effects of soil heavy metal cadmium on higher plants[J]. Asian Journal of Ecotoxicology, 2021, 16(6): 133−149. DOI: 10.7524/AJE.1673-5897.20201211002. [7] AL-KHAYRI J M, BANADKA A, RASHMI R, et al. Cadmium toxicity in medicinal plants: an overview of the tolerance strategies, biotechnological and omics approaches to alleviate metal stress[J]. Frontiers in Plant Science, 2023, 13: 1047410. DOI: 10.3389/fpls.2022.1047410. [8] GHUGE S A, NIKALJE G C, KADAM U S, et al. Comprehensive mechanisms of heavy metal toxicity in plants, detoxification, and remediation[J]. Journal of Hazardous Materials, 2023, 450: 131039. DOI: 10.1016/j.jhazmat.2023.131039. [9] PODAR D, MAATHUIS F J M. The role of roots and rhizosphere in providing tolerance to toxic metals and metalloids[J]. Plant, Cell & Environment, 2022, 45(3): 719−736. DOI: 10.1111/pce.14188. [10] YU Miao, ZHUO Renying, LU Zhuchou, et al. Molecular insights into lignin biosynthesis on cadmium tolerance: morphology, transcriptome and proteome profiling in Salix matsudana[J]. Journal of Hazardous Materials, 2023, 441: 129909. DOI: 10.1016/j.jhazmat.2022.129909. [11] YUAN Yuan, IMTIAZ M, RIZWAN M, et al. The role and its transcriptome mechanisms of cell wall polysaccharides in vanadium detoxication of rice[J]. Journal of Hazardous Materials, 2022, 425: 127966. DOI: 10.1016/j.jhazmat.2021.127966. [12] YU Guo, ULLAH H, WANG Xinshuai, et al. Integrated transcriptome and metabolome analysis reveals the mechanism of tolerance to manganese and cadmium toxicity in the Mn/Cd hyperaccumulator Celosia argentea Linn.[J]. Journal of Hazardous Materials, 2023, 443: 130206. DOI: 10.1016/j.jhazmat.2022.130206. [13] ZHANG Xiaoxiang, ZHAO Bin, MA Xingye, et al. Combining transcriptome and metabolome analyses to reveal the response of maize roots to Pb stress[J]. Plant Physiology and Biochemistry, 2024, 217: 109265. DOI: 10.1016/j.plaphy.2024.109265. [14] JIAO Zhiyin, SHI Yannan, WANG Jinping, et al. Integration of transcriptome and metabolome analyses reveals sorghum roots responding to cadmium stress through regulation of the flavonoid biosynthesis pathway[J]. Frontiers in Plant Science, 2023, 14: 1144265. DOI: 10.3389/fpls.2023.1144265. [15] YANG Zemin, WANG Jialu, WANG Wenjun, et al. Physiological, cytological and multi-omics analysis revealed the molecular response of Fritillaria cirrhosa to Cd toxicity in Qinghai-Tibet Plateau[J]. Journal of Hazardous Materials, 2024, 472: 134611. DOI: 10.1016/j.jhazmat.2024.134611. [16] 辛建攀, 李燕, 赵楚, 等. 镉胁迫下梭鱼草叶片转录组测序及苯丙烷代谢途径相关基因挖掘[J]. 生物技术通报, 2022, 38(6): 198−210. XIN Jianpan, LI Yan, ZHAO Chu, et al. Transcriptome sequencing in the leaves of Pontederia cordata with cadmium exposure and gene mining in phenypropanoid pathways[J]. Biotechnology Bulletin, 2022, 38(6): 198−210. DOI: 10.13560/j.cnki.biotech.bull.1985.2021-1151. [17] OLIVER C D, BURKHARDT E C, SKOJAC D A. The increasing scarcity of red oaks in Mississippi River floodplain forests: influence of the residual overstory[J]. Forest Ecology and Management, 2005, 210(1/3): 393−414. DOI: 10.1016/j.foreco.2005.02.036. [18] 洪震, 刘术新, 洪琮浩, 等. 5种造林树种对干旱胁迫的抗性应答[J]. 南京林业大学学报(自然科学版), 2021, 45(2): 111−119. HONG Zhen, LIU Shuxin, HONG Conghao, et al. Resistance response of five afforestation tree species under drought stress[J]. Journal of Nanjing Forestry University (Natural Sciences Edition), 2021, 45(2): 111−119. DOI: 10.12302/j.issn.1000-2006.202002019. [19] 张晓伟, 龚雪梅, 李琳, 等. 基于层次分析法的皖北地区引种的彩叶植物综合评价[J]. 浙江大学学报(农业与生命科学版), 44(5): 580−587. ZHANG Xiaowei, GONG Xuemei, LI Lin, et al. Comprehensive evaluation of the color-leaf plants introduced in Northern Anhui based on analytichierarchy process[J]. Journal of Zhejiang University (Agriculture and Life Sciences), 44(5): 580−587. DOI: 10.3785/j.issn.1008-9209.2018.03.021. [20] SUN Tiantian, WANG Mengzhu, LI Xin, et al. Different phenotypic, photosynthetic, and physiological responses to flooding between Q. nuttallii and Q. palustris[J]. Plants, 2024, 13(12): 1658. DOI: 10.3390/plants13121658. [21] 仲磊. 长三角地区八个景观生态树种对淹水胁迫的响应机制[D]. 南京: 南京林业大学, 2019. ZHONG Lei. The Response Mechanism on Flooding Stress of Eight Landscape Eco-tree Species Seedlings in the Yangtze River Delta[D]. Nanjing: Nanjing Forestry University, 2019. [22] CAO Yini, YU Liangqian, DANG Ning, et al. Dendroremediation potential of six Quercus species to polluted soil in historic copper mining sites[J]. Forests, 2023, 14(1): 62. DOI: 10.3390/f14010062. [23] MU Weixue, WEI Jinpu, YANG Ting, et al. RNA extraction for plant samples using CTAB-pBIOZOL[J]. protocols. io, 2017. DOI: 10.17504/protocols.io.gsnbwde. [24] TAN Cancan, NIE Wen, LIU Yifu, et al. Physiological response and molecular mechanism of Quercus variabilis under cadmium stress[J]. Plant Physiology and Biochemistry, 2024, 211: 108724. DOI: 10.1016/j.plaphy.2024.108724. [25] 李闯, 胡红玲, 张成浩, 等. 桤木幼树生长及抗性生理对镉胁迫的响应[J]. 西北农林科技大学学报(自然科学版), 2025, 53(9): 1−11. LI Chuang, HU Hong Lin, ZHNAG Cheng Hao, et al. Responses of growth and resistant physiology of Alnus cremastogyne saplings to cadmium stress[J]. Journal of Northwest A&F University(Natural Science Edition), 2025, 53(9): 1−11. DOI: 10.13207/j.cnki.jnwafu.2025.09.008. [26] DU Hanmei, TAN Lu, LI Shengchun, et al. Effects of cadmium stress on Tartary buckwheat seedlings[J]. Plants, 2024, 13(12): 1650. DOI: 10.3390/plants13121650. [27] GUO Xinyu, LUO Jipeng, DU Yilin, et al. Coordination between root cell wall thickening and pectin modification is involved in cadmium accumulation in Sedum alfredii[J]. Environmental Pollution, 2021, 268: 115665. DOI: 10.1016/j.envpol.2020.115665. [28] CHEN Guangcai, LIU Yongqing, WANG Renmin, et al. Cadmium adsorption by willow root: the role of cell walls and their subfractions[J]. Environmental Science and Pollution Research, 2013, 20(8): 5665−5672. DOI: 10.1007/s11356-013-1506-3. [29] DAI Fanwei, LUO Guoqing, LI Zhiyi, et al. Physiological and transcriptomic analyses of mulberry (Morus atropurpurea) response to cadmium stress[J]. Ecotoxicology and Environmental Safety, 2020, 205: 111298. DOI: 10.1016/j.ecoenv.2020.111298. [30] FAHAD S, HUSSAIN S, BANO A, et al. Potential role of phytohormones and plant growth-promoting rhizobacteria in abiotic stresses: consequences for changing environment[J]. Environmental Science and Pollution Research, 2015, 22(7): 4907−4921. DOI: 10.1007/s11356-014-3754-2. [31] 刘方春, 邢尚军, 马海林, 等. 干旱胁迫下植物根际促生细菌对侧柏生长及生理生态特征的影响[J]. 林业科学, 2014, 50(6): 67−73. LIU Fangchun, XING Shangjun, MA Hailin, et al. Effects of plant growth-promoting rhizobacteria on physio-ecological characteristics of Platycladus orientalis under drought stress[J]. Scientia Silvae Sinicae, 2014, 50(6): 67−73. DOI: 10.11707/j.1001-7488.20140609. [32] TAKEI K, SAKAKIBARA H, TANIGUCHI M, et al. Nitrogen-dependent accumulation of cytokinins in root and the translocation to leaf: implication of cytokinin species that induces gene expression of maize response regulator[J]. Plant and Cell Physiology, 2001, 42(1): 85−93. DOI: 10.1093/pcp/pce009. [33] TAKEI K, YAMAYA T, SAKAKIBARA H. Arabidopsis CYP735A1 and CYP735A2 encode cytokinin hydroxylases that catalyze the biosynthesis of trans-zeatin[J]. Journal of Biological Chemistry, 2004, 279(40): 41866−41872. DOI: 10.1074/jbc.M406337200. [34] KIBA T, TAKEI K, KOJIMA M, et al. Side-chain modification of cytokinins controls shoot growth in Arabidopsis[J]. Developmental Cell, 2013, 27(4): 452−461. DOI: 10.1016/j.devcel.2013.10.004. [35] PAVLÍKOVÁ D, PAVLÍK M, PROCHÁZKOVÁ D, et al. Nitrogen metabolism and gas exchange parameters associated with zinc stress in tobacco expressing an ipt gene for cytokinin synthesis[J]. Journal of Plant Physiology, 2014, 171(7): 559−564. DOI: 10.1016/j.jplph.2013.11.016. [36] PIOTROWSKA-NICZYPORUK A, BAJGUZ A, ZAMBRZYCKA-SZELEWA E, et al. Exogenously applied auxins and cytokinins ameliorate lead toxicity by inducing antioxidant defence system in green alga Acutodesmus obliquus[J]. Plant Physiology and Biochemistry, 2018, 132: 535−546. DOI: 10.1016/j.plaphy.2018.09.038. [37] PIOTROWSKA-NICZYPORUK A, BONDA-OSTASZEWSKA E, BAJGUZ A. Mitigating effect of trans-zeatin on cadmium toxicity in Desmodesmus armatus[J]. Cells, 2024, 13(8): 686. DOI: 10.3390/cells13080686. [38] WANG Pingxi, LI Min, MA Xingye, et al. Integrative transcriptome and metabolome analysis identifies potential pathways associated with cadmium tolerance in two maize inbred lines[J]. Plants, 2025, 14(12): 1853. DOI: 10.3390/plants14121853. [39] SALT D E, PRINCE R C, PICKERING I J, et al. Mechanisms of cadmium mobility and accumulation in Indian mustard[J]. Plant Physiology, 1995, 109(4): 1427−1433. DOI: 10.1104/pp.109.4.1427. [40] SHEN Chuang, YANG Yumo, SUN Yingfang, et al. The regulatory role of abscisic acid on cadmium uptake, accumulation and translocation in plants[J]. Frontiers in Plant Science, 2022, 13: 953717. DOI: 10.3389/fpls.2022.953717. [41] ZHANG Xintong, YANG Man, YANG Hui, et al. The uptake, transfer, and detoxification of cadmium in plants and its exogenous effects[J]. Cells, 2024, 13(11): 907. DOI: 10.3390/cells13110907. [42] WANG Y Y, ZHOU Rong, ZHOU Xie. Endogenous levels of ABA and cytokinins and their relation to stomatal behavior in dayflower (Commelina communis L.)[J]. Journal of Plant Physiology, 1994, 144(1): 45−48. DOI: 10.1016/S0176-1617(11)80990-9. -

-
链接本文:
https://zlxb.zafu.edu.cn/article/doi/10.11833/j.issn.2095-0756.20260319
 点击查看大图
计量
- 文章访问数: 7
- HTML全文浏览量: 4
- PDF下载量: 2
- 被引次数: 0
