





-
转录因子作为基因表达调控网络中的核心枢纽,通过特异性识别并结合下游靶基因启动子区的顺式作用元件,精准调控靶基因的时空表达[1],在植物生长发育、形态建成及环境胁迫应答等生物学过程中发挥重要的调控作用[2]。其中,TCP转录因子家族是植物特有的一类重要调控蛋白。研究表明,TCP家族成员广泛参与调控植物分枝发育、叶片形态建成、生物节律[3]以及多种生物与非生物胁迫应答过程[4]。
TCP蛋白的典型特征是其N端含有一段约60个氨基酸构成的高度保守TCP结构域,呈碱性-螺旋-环-螺旋(bHLH-like)构象,是执行DNA结合、蛋白同源或异源二聚化及核定位功能的核心基础[5]。该家族通常分为Class Ⅰ(PCF类)和Class Ⅱ(CYC/TB1与CIN类)[6]。其中,Class Ⅰ成员主要通过促进细胞增殖参与器官生长调控[7],Class Ⅱ成员则多发挥转录抑制作用,调控细胞分化与器官形成[8]。近年来研究发现:TCP家族不仅涉及生长发育的调控,还广泛参与免疫信号、非生物胁迫应答及次生代谢合成等过程。Class Ⅰ成员AtTCP20通过直接结合茉莉酸合成关键酶基因LOX2的启动子激活茉莉酸信号通路,与Class Ⅱ成员在叶片发育中发挥拮抗作用,共同介导茉莉酸依赖的叶片形态建成与衰老[9]。在黑果枸杞Lycium ruthenicum中,过表达LrTCP4显著提高了枸杞胺A及其他酚类化合物的积累,证实TCP在药用植物活性成分合成中的调控功能[10]。
当前,TCP家族已在多种植物中得到系统鉴定,包括拟南芥Arabidopsis thaliana[11]、水稻Oryza sativa[12]、番茄Solanum lycopersicum[13]、胡杨Populus euphratica[14]及茶树Camellia sinensis[15]等。然而,在乡土树种皂荚Gleditsia sinensis中,TCP的全基因组鉴定与功能研究仍相对滞后。皂荚为豆科Fabaceae皂荚属Gleditsia落叶乔木,其刺富含黄酮、三萜皂苷等多种成分,在多个领域具有广阔的开发应用前景[16]。皂荚刺为侧生枝条特化形成的枝刺,质地坚硬,兼具物理防御与药用价值[16],是具有抗肿瘤、抗炎及抗菌作用的传统药用部位[17]。其发育历经形成期(GSB1)、休眠期(GSB2)、萌动期(GSB3)、芽向刺转化期(GSB4)、快速伸长期(GSB5)、生长后期(GSB6)及褐变期(GSB7)等7个阶段[18]。然而,刺发育的分子调控机制研究仍十分有限,仅有个别转录组研究提示TCP、MYB等转录因子可能参与刺的形态建成与次生代谢调控[19]。值得注意的是,TCP转录因子已被证实在多种植物的特殊结构中发挥调控作用。在拟南芥中,TCP不仅调节毛状体分支和表皮的发育[20],TCP14和TCP15还是侧枝发育的正向促进因子[21];在黄瓜Cucumis sativus中,TCP转录因子是卷须形成的关键因子[22];TCP23在杨树Populus木质部中特异高表达,并直接参与调控次生壁的合成与木质素的沉积[23]。这些研究表明,TCP转录因子可能在不同的特殊器官中发挥调控功能。因此,系统鉴定GsTCP家族成员并解析其在刺发育过程中的表达动态,对揭示刺形成的转录调控网络,发掘关键功能基因具有重要意义。
鉴于此,本研究基于皂荚全基因组数据[18],对GsTCP家族进行全基因组鉴定,系统分析其系统进化关系、染色体定位、保守基序及顺式作用元件,并解析GsTCP在刺不同发育关键期的表达谱,筛选与刺发育相关的关键成员。研究结果可为深入解析GsTCP的生物学功能及在刺形态建成中的调控机制奠定基础,同时为皂荚种质资源的遗传改良与分子育种提供候选基因资源与理论参考。
-
本研究基于前期已发表的皂荚基因组数据[18],从TAIR(The Arabidopsis Information Resource)数据库获取24个拟南芥TCP蛋白序列,利用BLASTP进行同源比对。同时,基于Pfam数据库下载TCP家族特征,利用HMMER 3.0进行全基因组搜寻。综合2种结果,通过NCBICD-Search和SMART数据库对候选序列进行结构域验证,剔除不含完整TCP结构域的冗余序列,最终确定皂荚TCP家族成员。
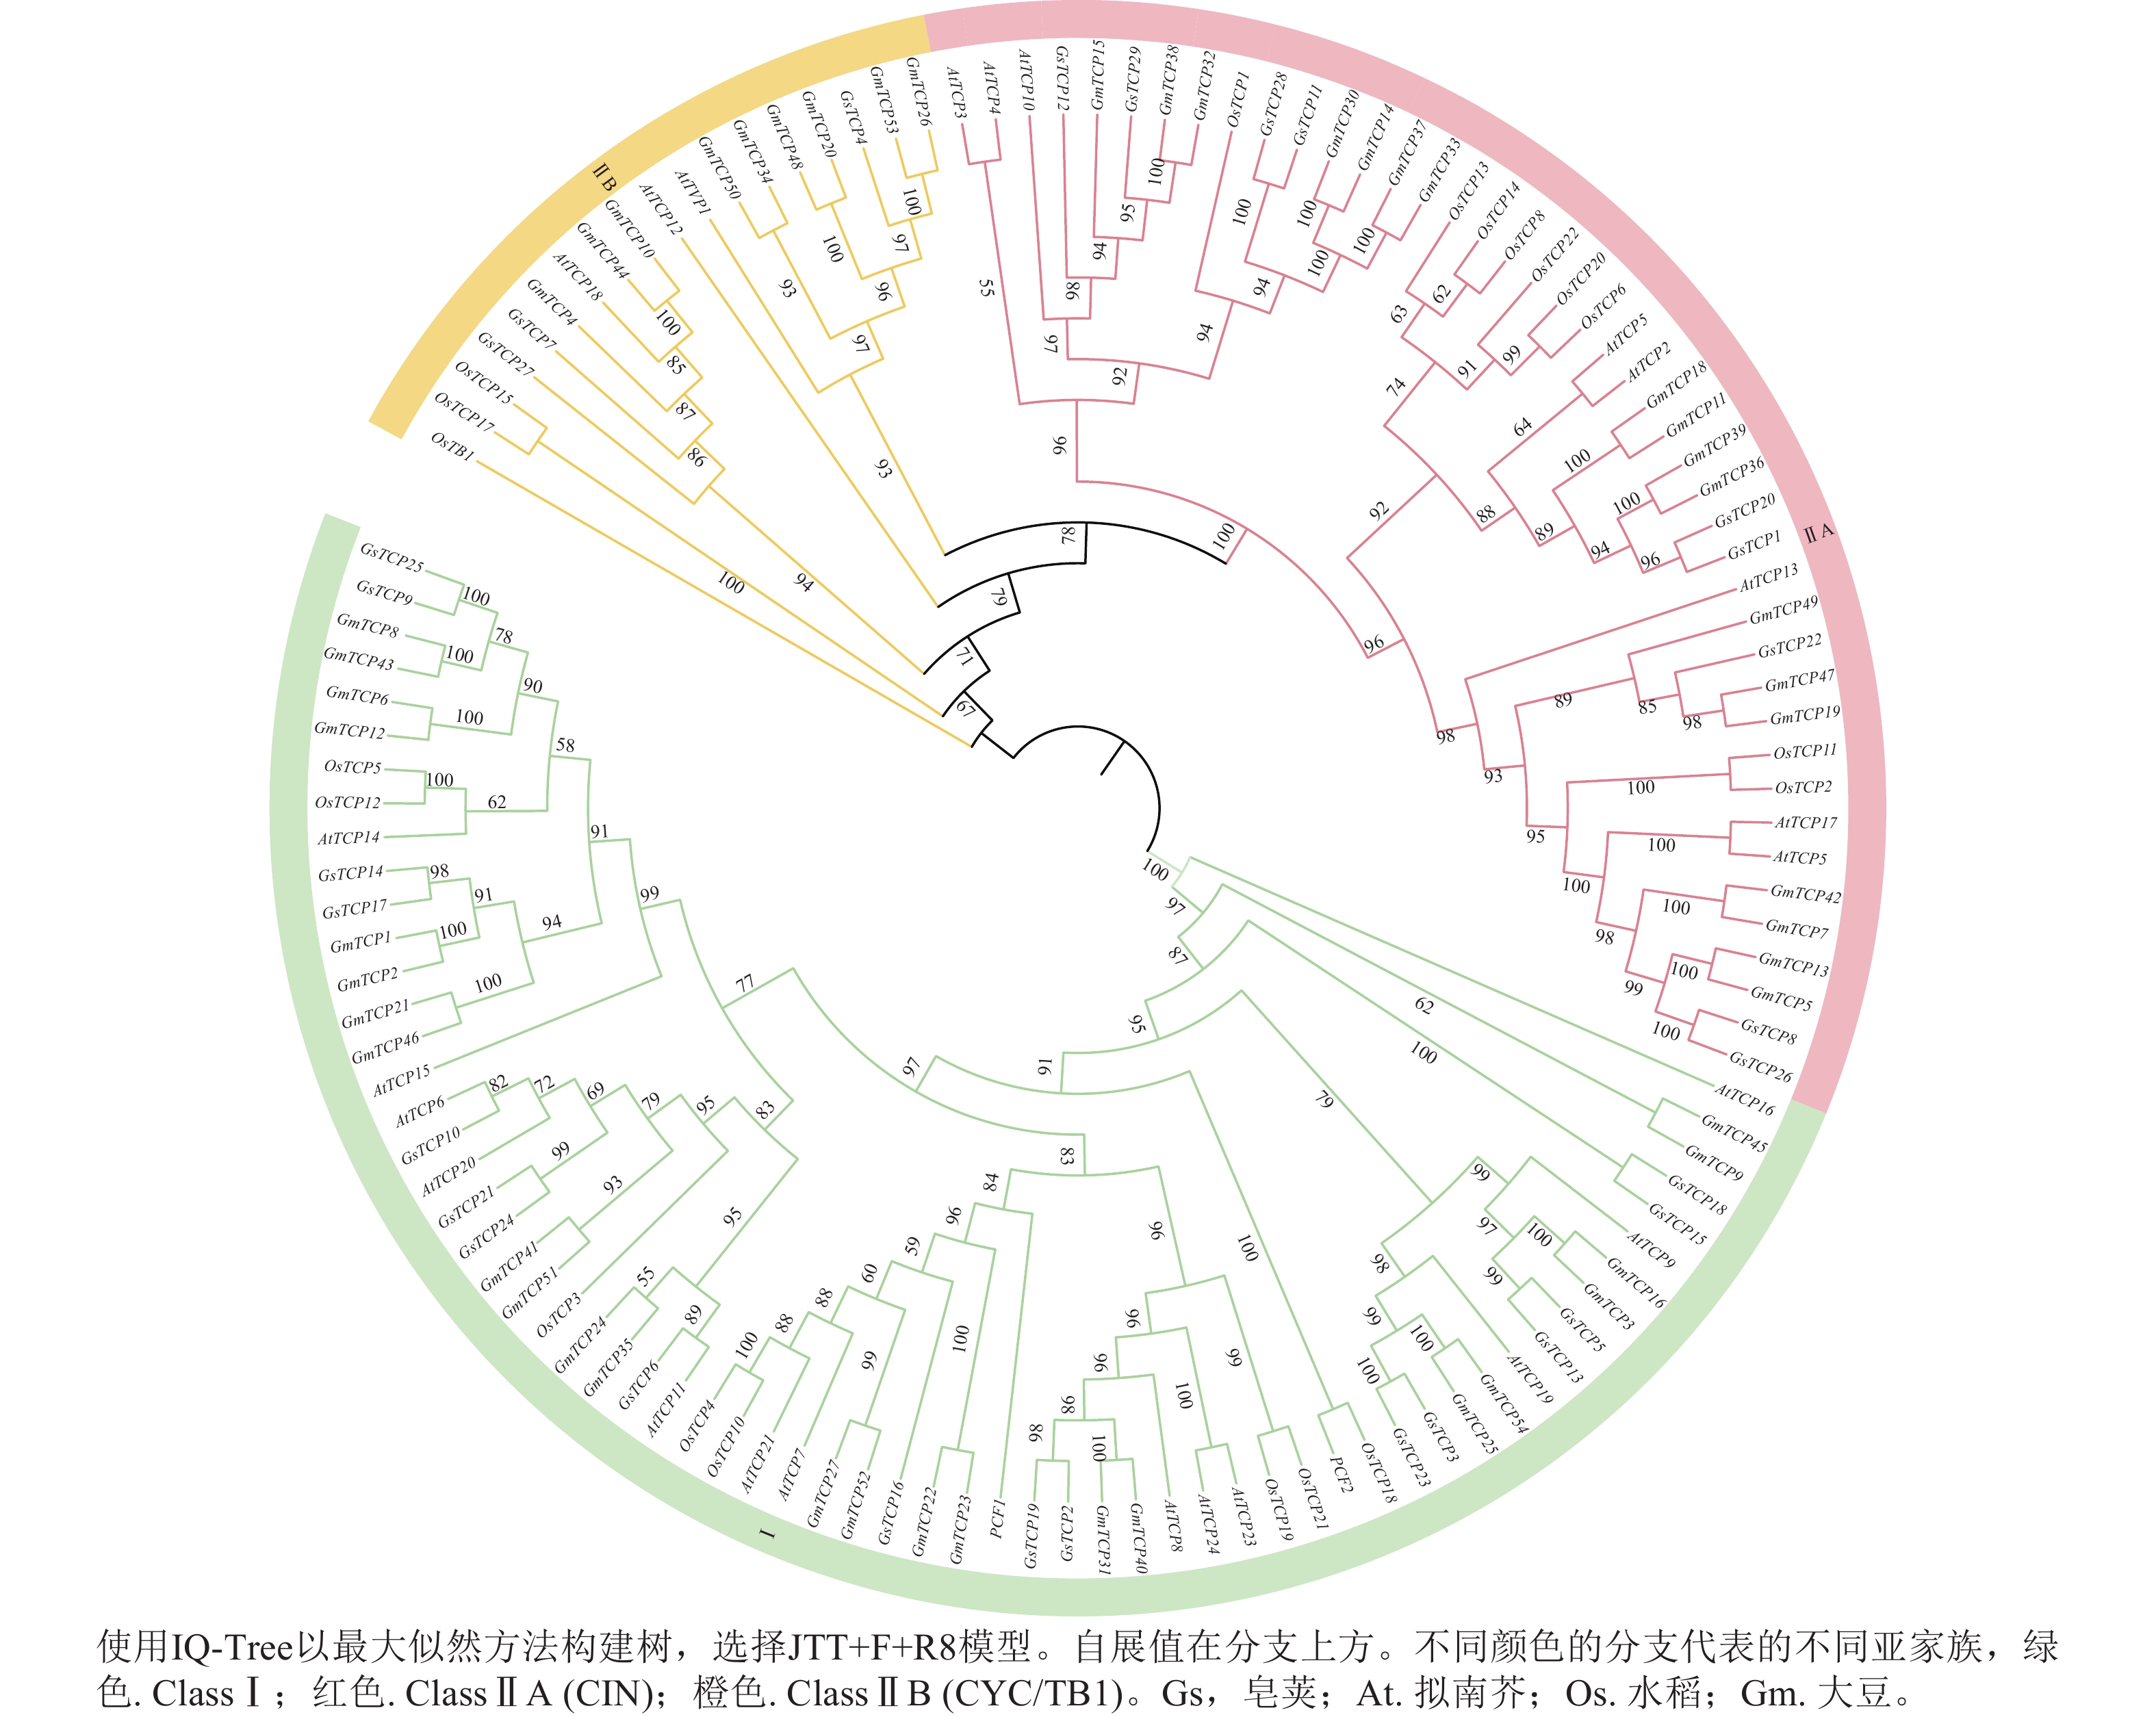
将基于皂荚基因组鉴定获得的29条GsTCP蛋白序列与拟南芥AtTCP蛋白序列、从phytozome数据库获得的水稻OsTCP蛋白序列、大豆Glycine max GmTCP蛋白序列进行蛋白序列比对,利用IQtree采用最大似然法构建系统发育树,选择JTT+F+R8模型,并使用iTOL进行可视化。
-
利用MEME在线网站对29个GsTCP蛋白序列进行保守基序分析。设定识别Motif数为10且E-value<1×10⁻¹⁰。利用TBtools解析并展示GsTCP基因的外显子与内含子分布特征。利用美国国家生物技术信息中心(NCBI)数据库中的BatchCD-Search对GsTCP蛋白序列进行保守结构域分析。
-
借助TBtools[24]软件从皂荚基因组GFF文件中解析GsTCP成员的染色体定位坐标并完成制图。从Ensembl Plants数据库获取拟南芥和毛果杨P. trichocarpa的参考基因组及注释数据。鉴定TCP在不同物种间的共线性联系,利用TBtools构建共线性图谱。
-
借助PlantCARE数据库,对所有GsTCP基因上游2 000 bp区域内的顺式作用调控元件进行预测分析,并通过TBtools进行可视化展示。
-
从本课题组已发表的皂荚转录组数据[18]中提取GsTCP家族成员在7个发育阶段的外显子每千碱基片段百万比(FPKM值),采用TBtools可视化。从GsTCP成员中选择6个基因进行实时荧光定量聚合酶链式反应(RT-qPCR)验证,分别为GsTCP1、GsTCP7、GsTCP11、GsTCP17、GsTCP19、GsTCP21。使用RNA prep Pure Plant Kit试剂盒提取皂荚刺总RNA,使用PrimeScriptTM RT Master Mix Perfect Real Time试剂盒进行反转录实验,采用2−ΔΔCt[25]进行数据分析和计算,以GsAtcin为内参[26],基因相对表达量以平均值±标准差表示,实验进行3次重复。利用单因素方差分析(One-way ANOVA)和多重比较(Tukey’s HSD)确定基因表达的差异显著性,显著性水平设为P<0.05。分别用柱状图展示RT-qPCR验证的基因表达水平,折线图展示转录组数据中的基因表达趋势。引物设计如表1。
序列名称 序列(5′→3′) 序列名称 序列(5′ →3′) GsAtcin-F GTGGTGGCTCAACTATGT GsTCP11-R GTTACTCCCACCCAGAATTGA GsAtcin-R TCCTCCAATCCAGACACT GsTCP17-F CTCCACTTCAGCCGAAACA GsTCP1-F AGAAGGAGGAGAAGGAGAAAGA GsTCP17-R CCTCAACCTTAGTGTGCCTATC GsTCP1-R CACCTGTGAGAAGCTCAGTAAA GsTCP19-F CCAACGGCACAAACAAGTAG GsTCP7-F CTCCACCATGACCTCTTACTTC GsTCP19-R CTCCTCGACCACCTTGAAAT GsTCP7-R GGGATCTGCTCCGTGTTTAT GsTCP21-F CTCCCACAGCCACAATCTAAT GsTCP11-F TCCATCCACAGCCAGTTTAG GsTCP21-R CCAACTGCTTCTTGCTTTCTTC Table 1. Primer sequences used for RT-qPCR
-
本研究基于TCP结构域筛选和Blast同源比对,通过双策略去重获得候选基因。经SMART及NCBICD-Search验证保守结构域,最终鉴定得到29个含有完整TCP结构域的非冗余基因,按染色体位置依次命名为GsTCP1~GsTCP29。
为进一步明确GsTCP家族的系统发育关系,将皂荚TCP蛋白序列与拟南芥、水稻和大豆的TCP家族共同构建系统发育树(图1)。参照拟南芥分类体系,GsTCP明确分为Class Ⅰ与Class Ⅱ两大亚家族。其中Class Ⅰ成员最多(19个),在家族中占主导地位,这表明它们可能承担更广泛的基础调控功能。Class Ⅱ进一步区分为CIN(Ⅱ A)和CYC/TB1(Ⅱ B)等2个亚类,其中CYC/TB1成员最少。此外,在多个高置信度的同源分支中,GsTCP优先与豆科近缘种大豆的GmTCP聚类,与单子叶植物水稻的OsTCP亲缘关系较远,暗示同支成员可能具有相似功能或参与保守调控通路,为后续功能解析与候选基因筛选提供了进化依据。
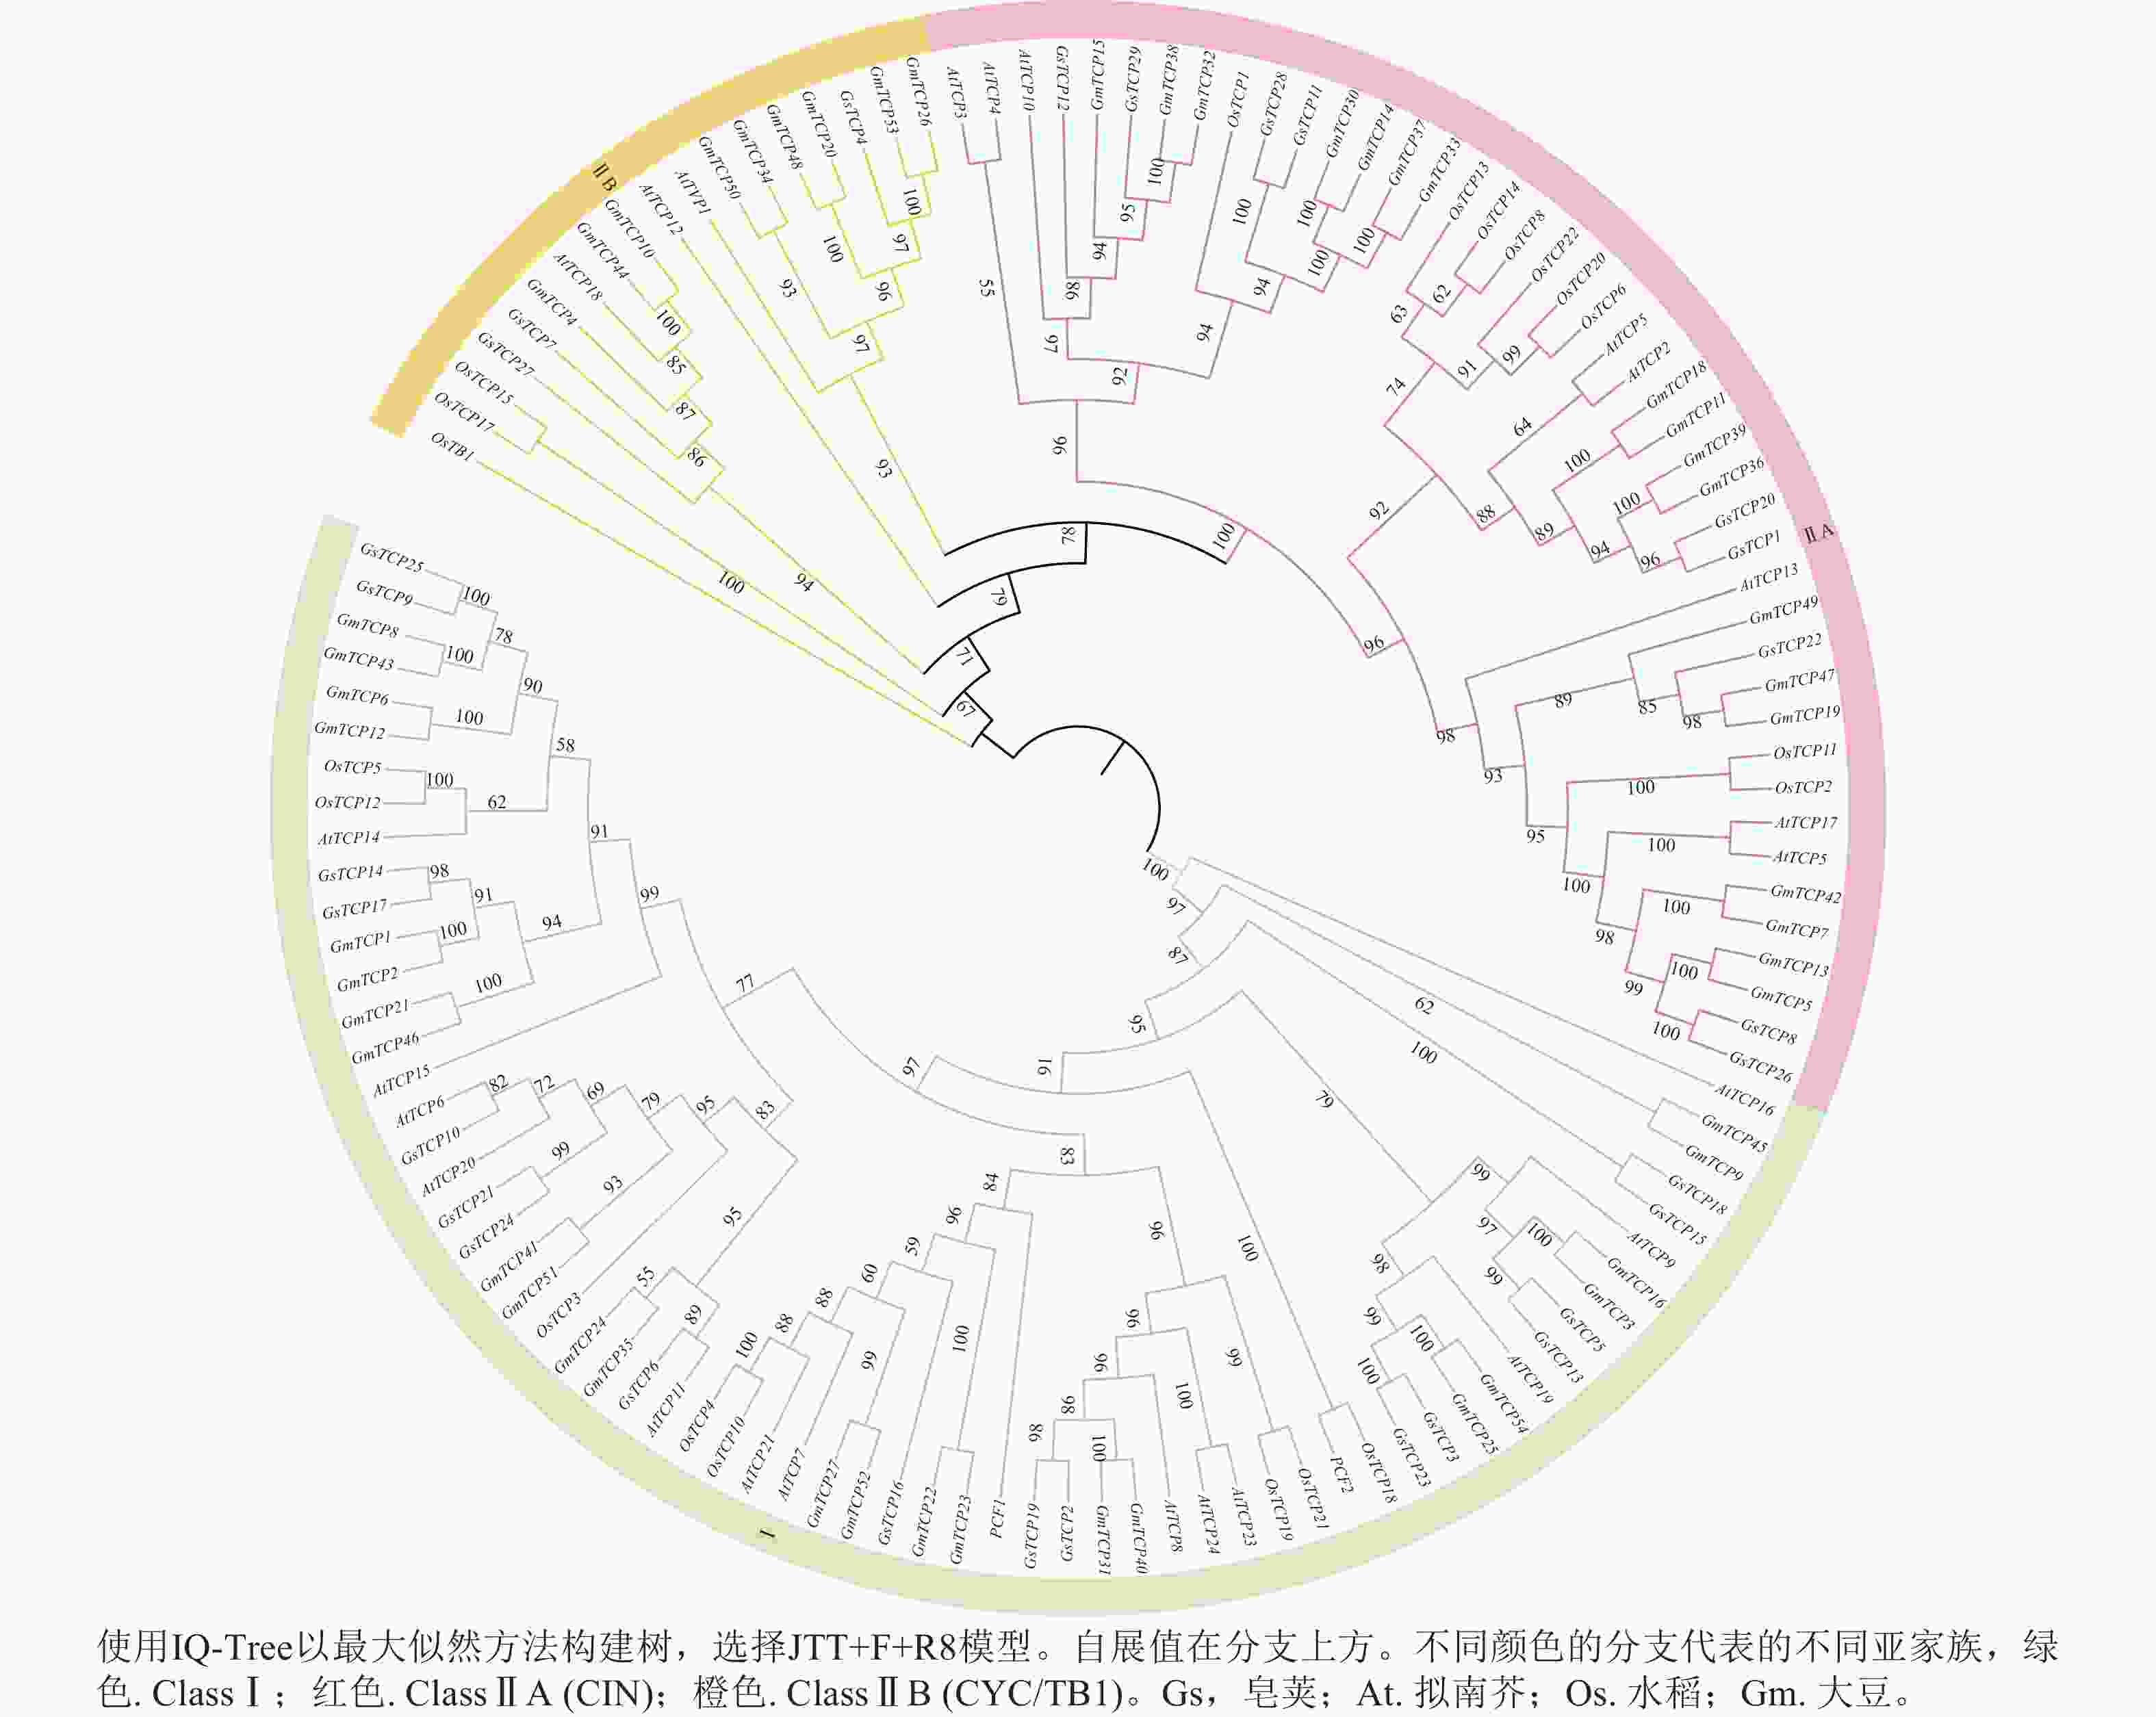
Figure 1. Phylogenetic tree of the TCP gene family in G. sinensis (Gs), A. thaliana (At), O. sativa (Os) and G. max (Gm)
-
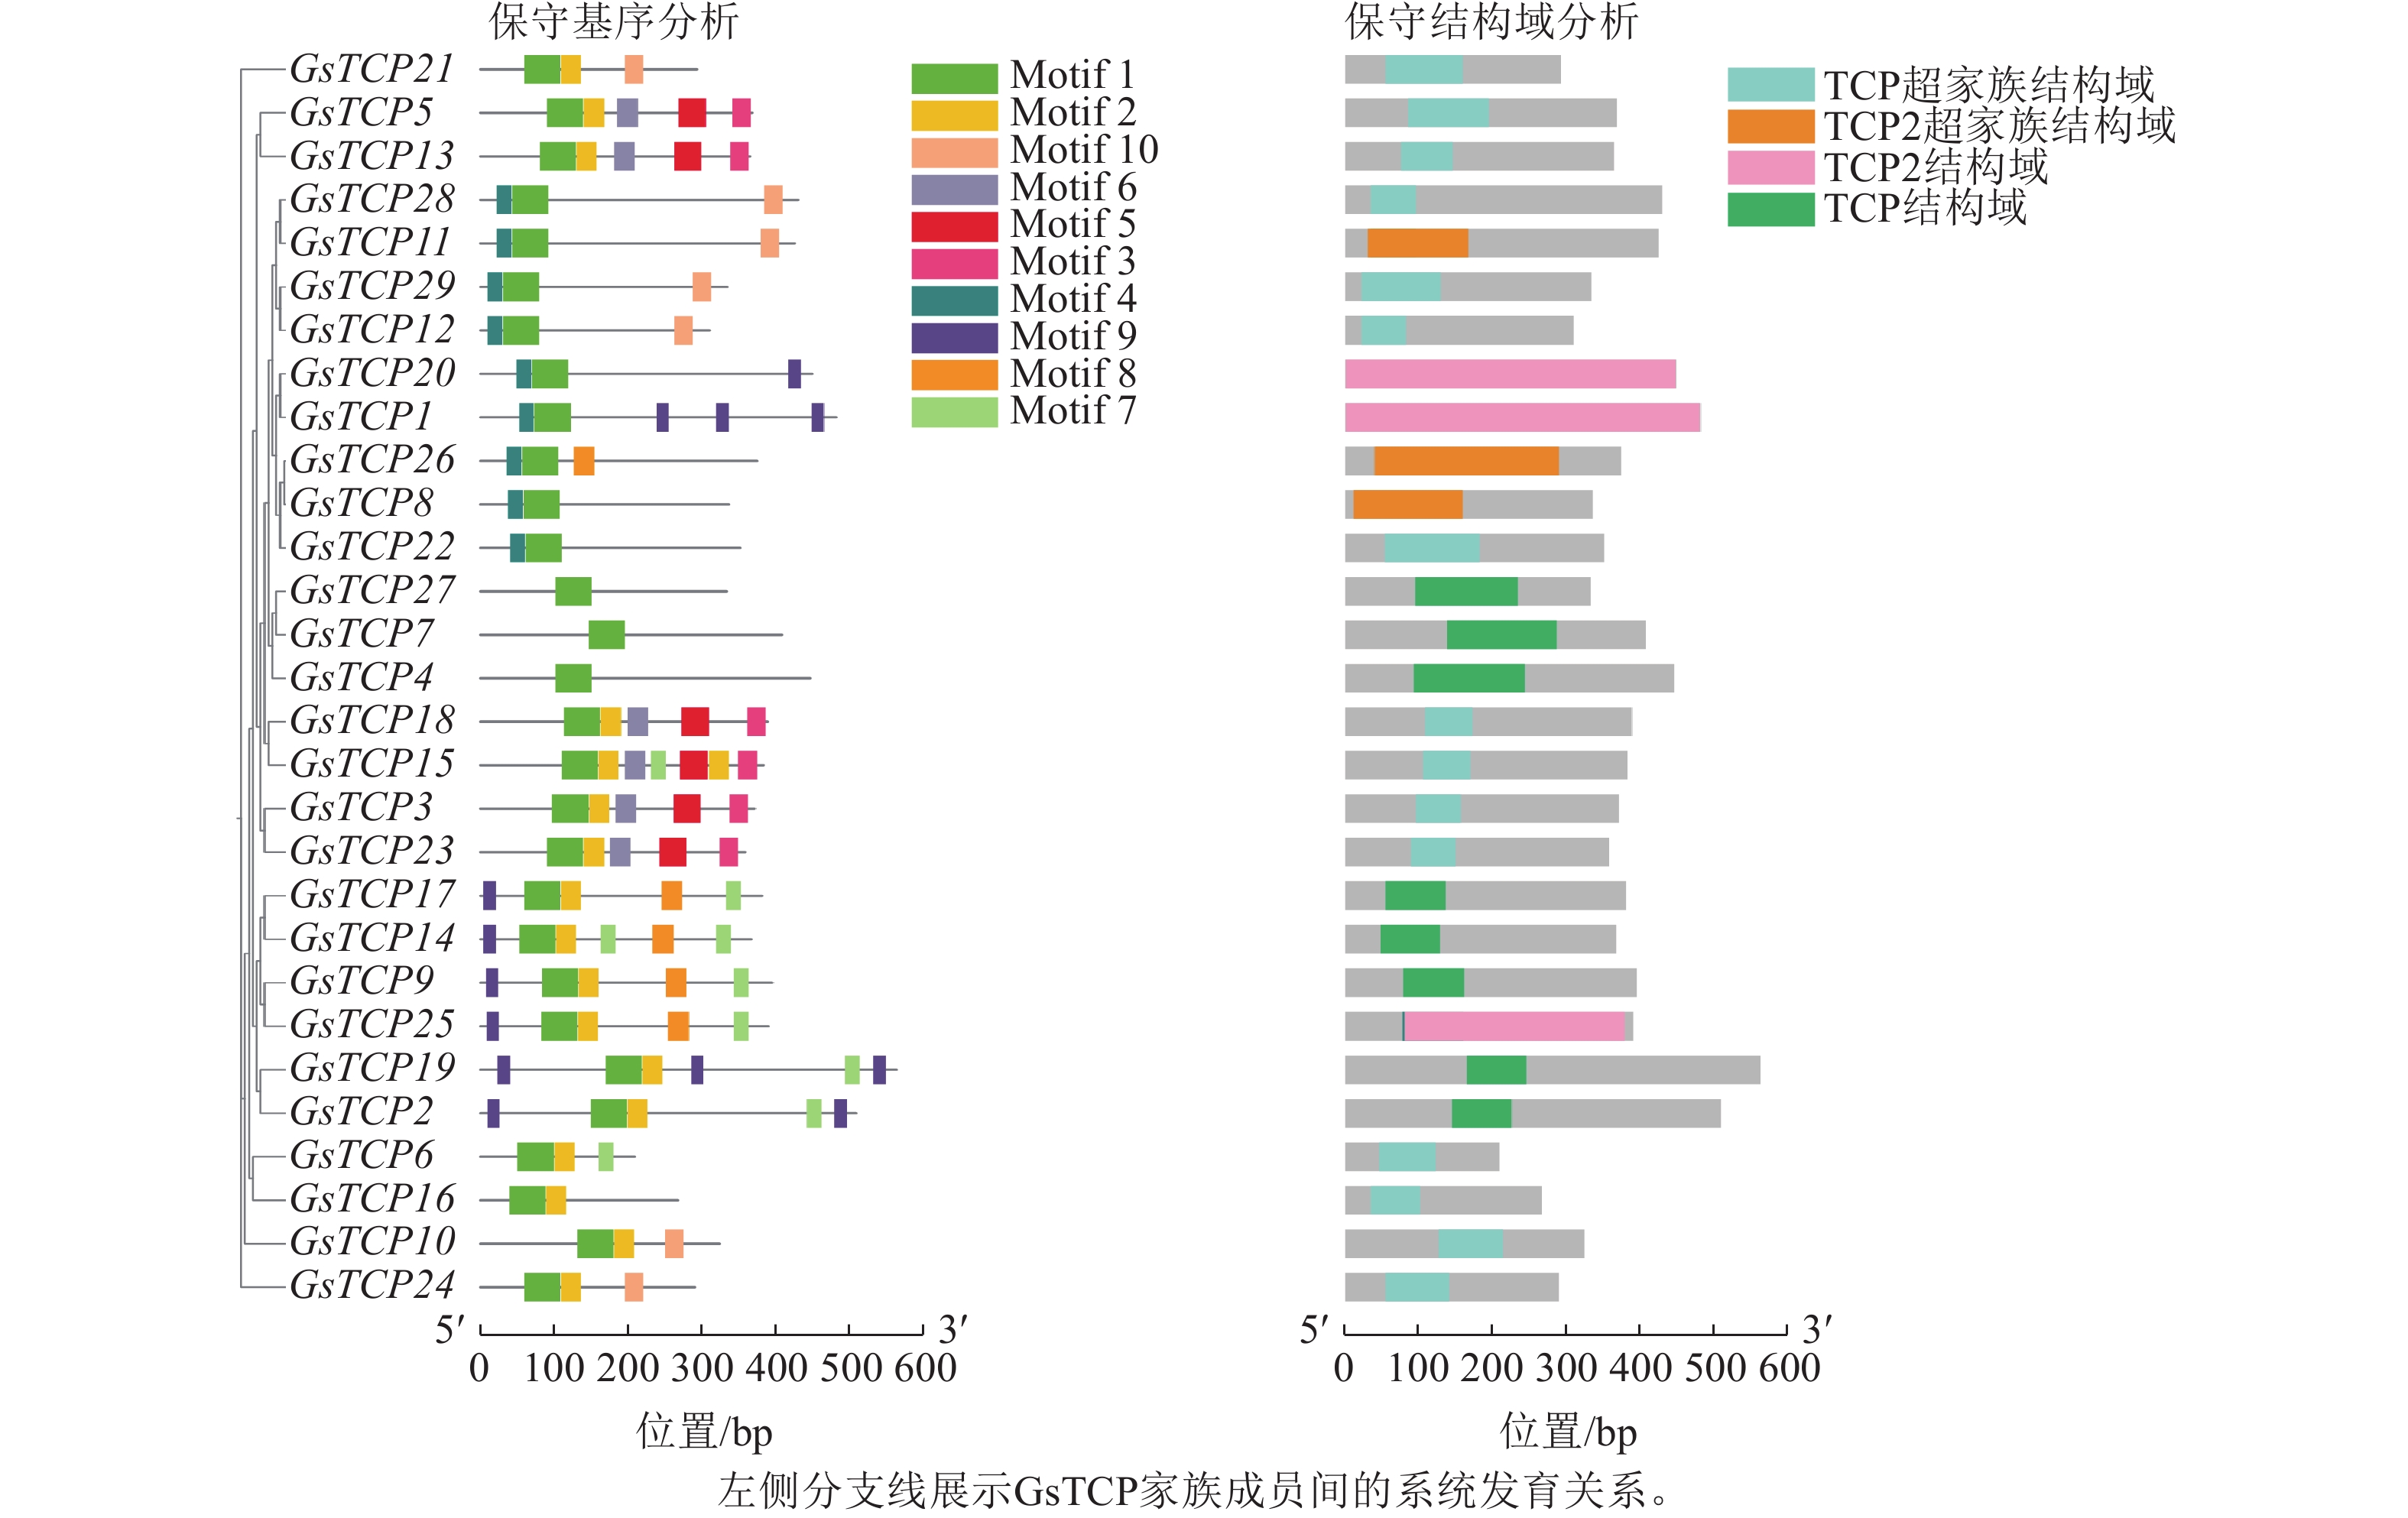
利用MEME和TBtools分析GsTCP蛋白保守基序,共鉴定出10个保守基序(图2)。其中,Motif 1存在于所有成员N端且紧密相邻,构成约60个氨基酸的碱性-螺旋-环-螺旋(bHLH)构象,即TCP保守结构域。同一亚家族成员在基序组成、数量及排序上高度一致,印证了系统发育分类的合理性;不同亚家族间差异明显,如Motif 6富集于Ⅱ B亚家族,Motif 5主要分布于Ⅱ A,Motif 9仅见于部分Ⅰ亚家族成员。这些特征揭示了GsTCP家族进化中的结构分化,表明不同亚家族可能承担不同的生物学功能。
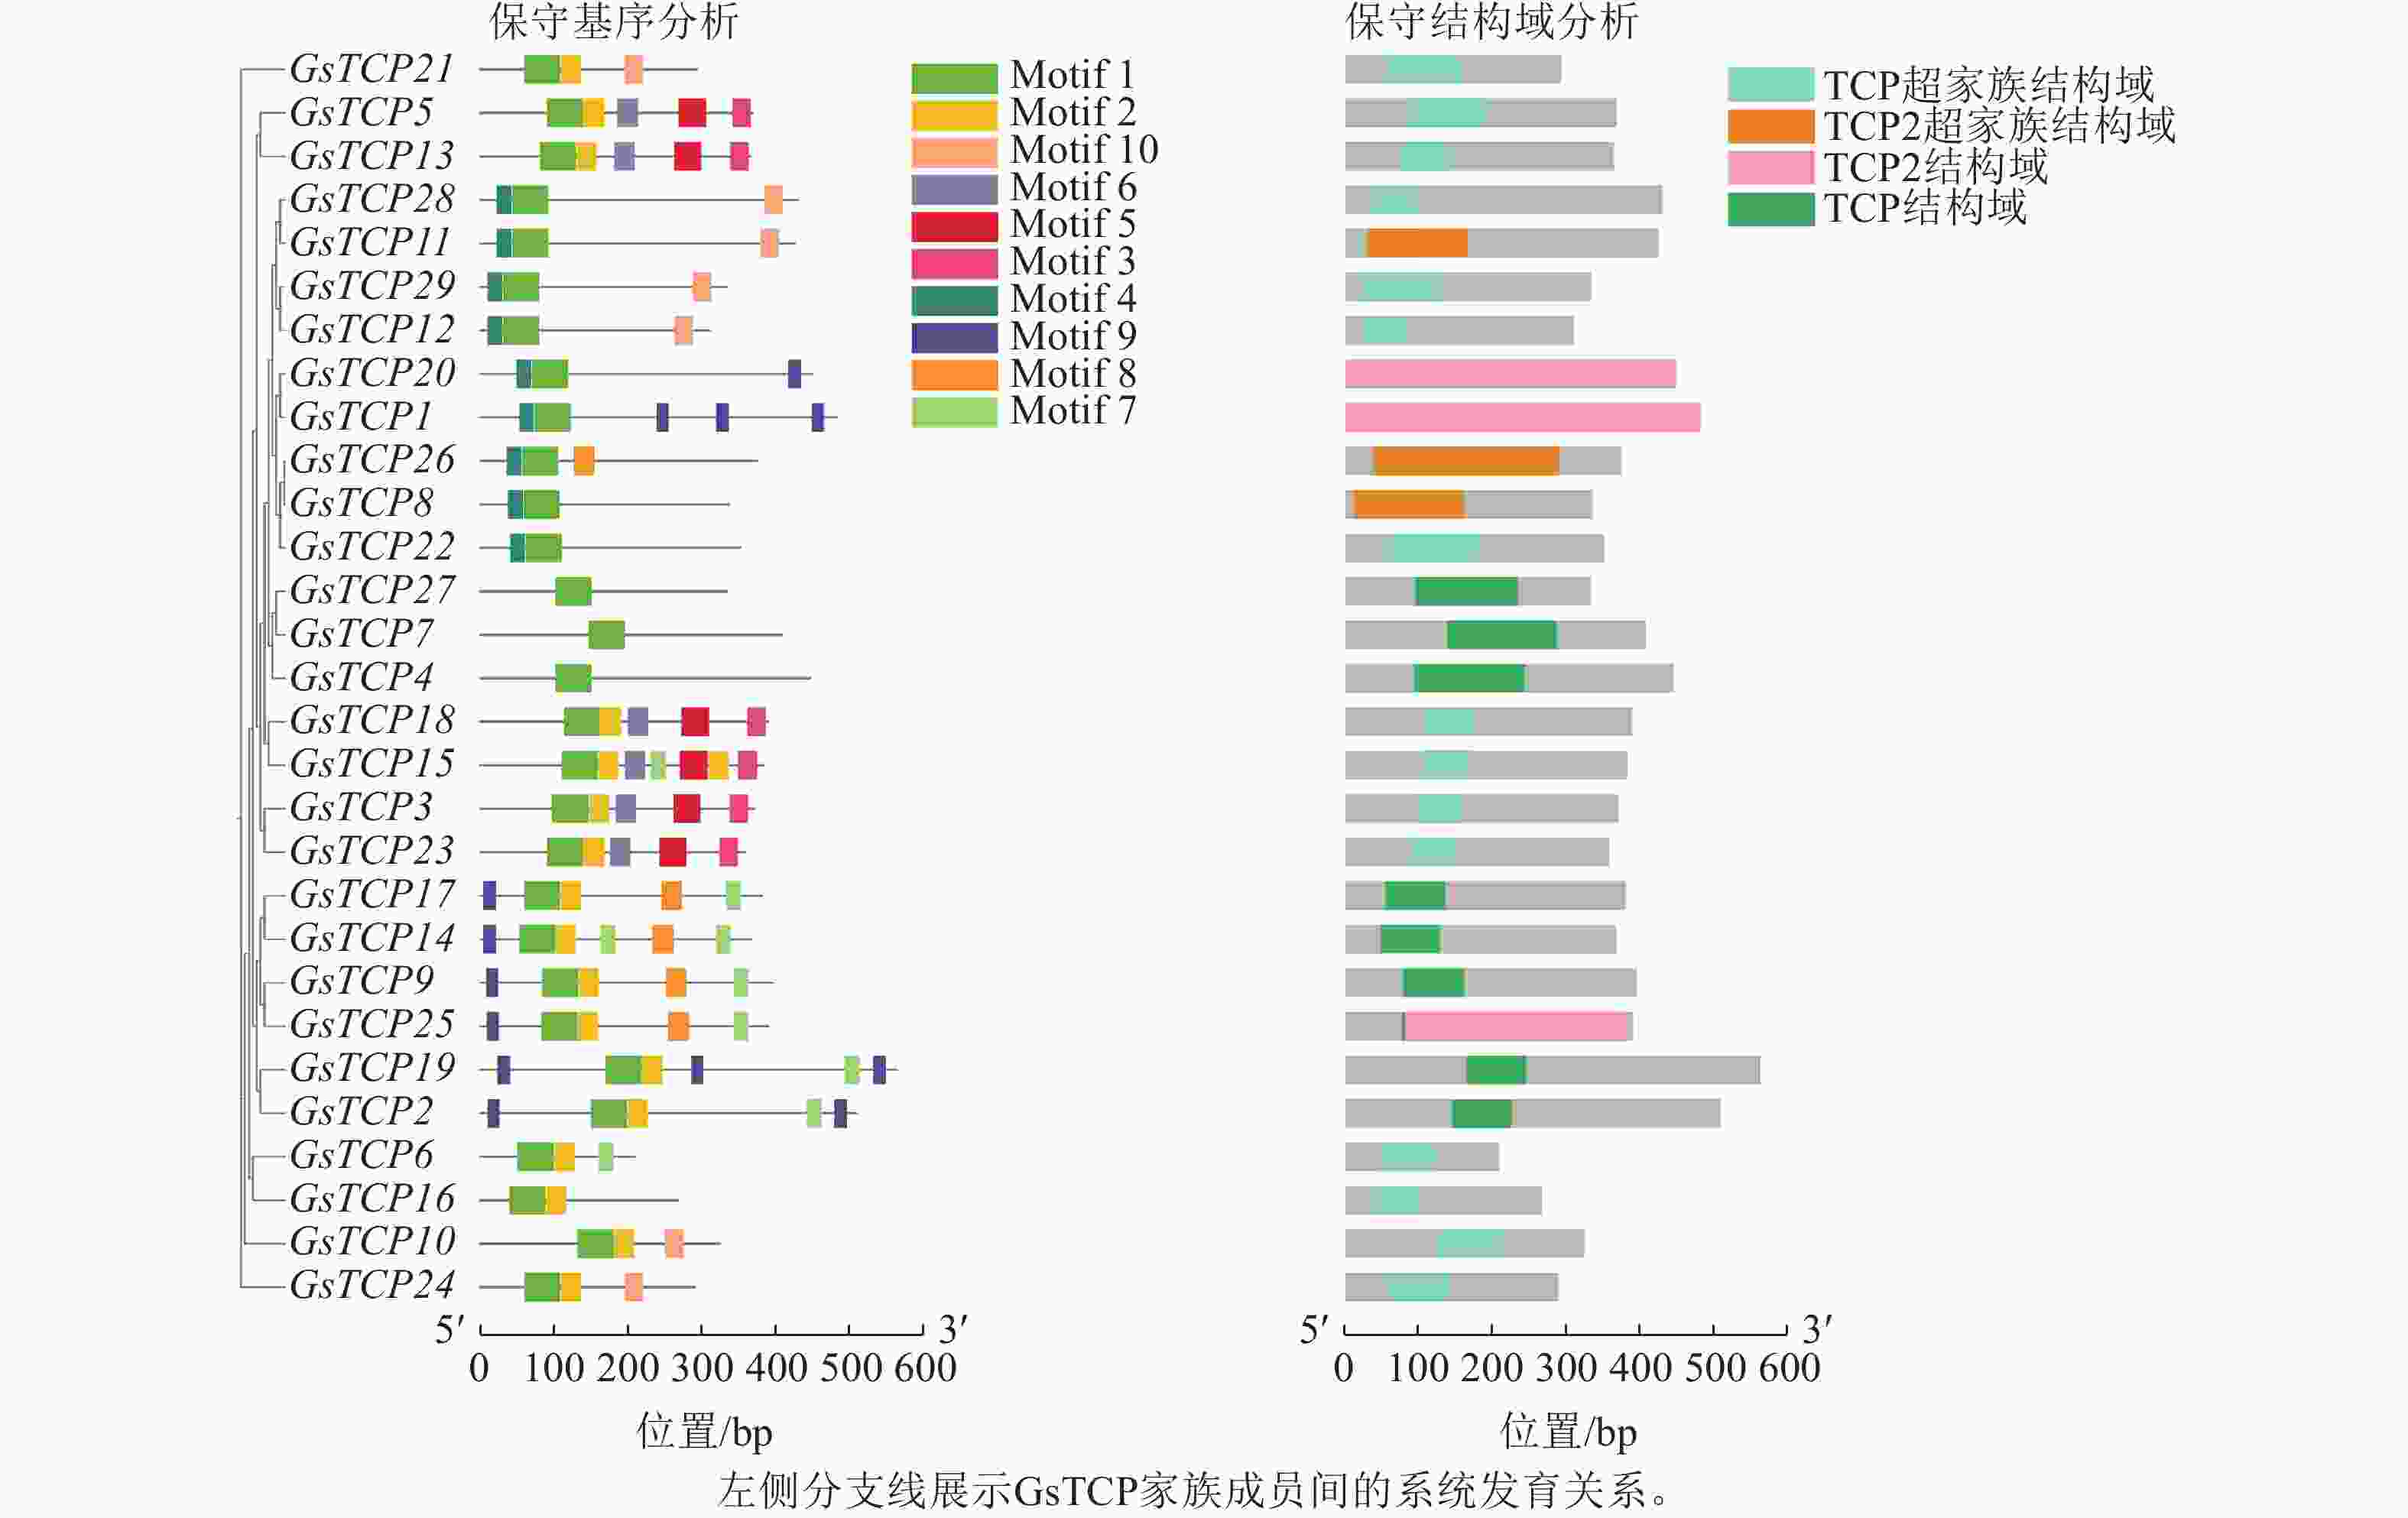
Figure 2. Analysis of conserved motifs and conserved domains of GsTCP proteins
-
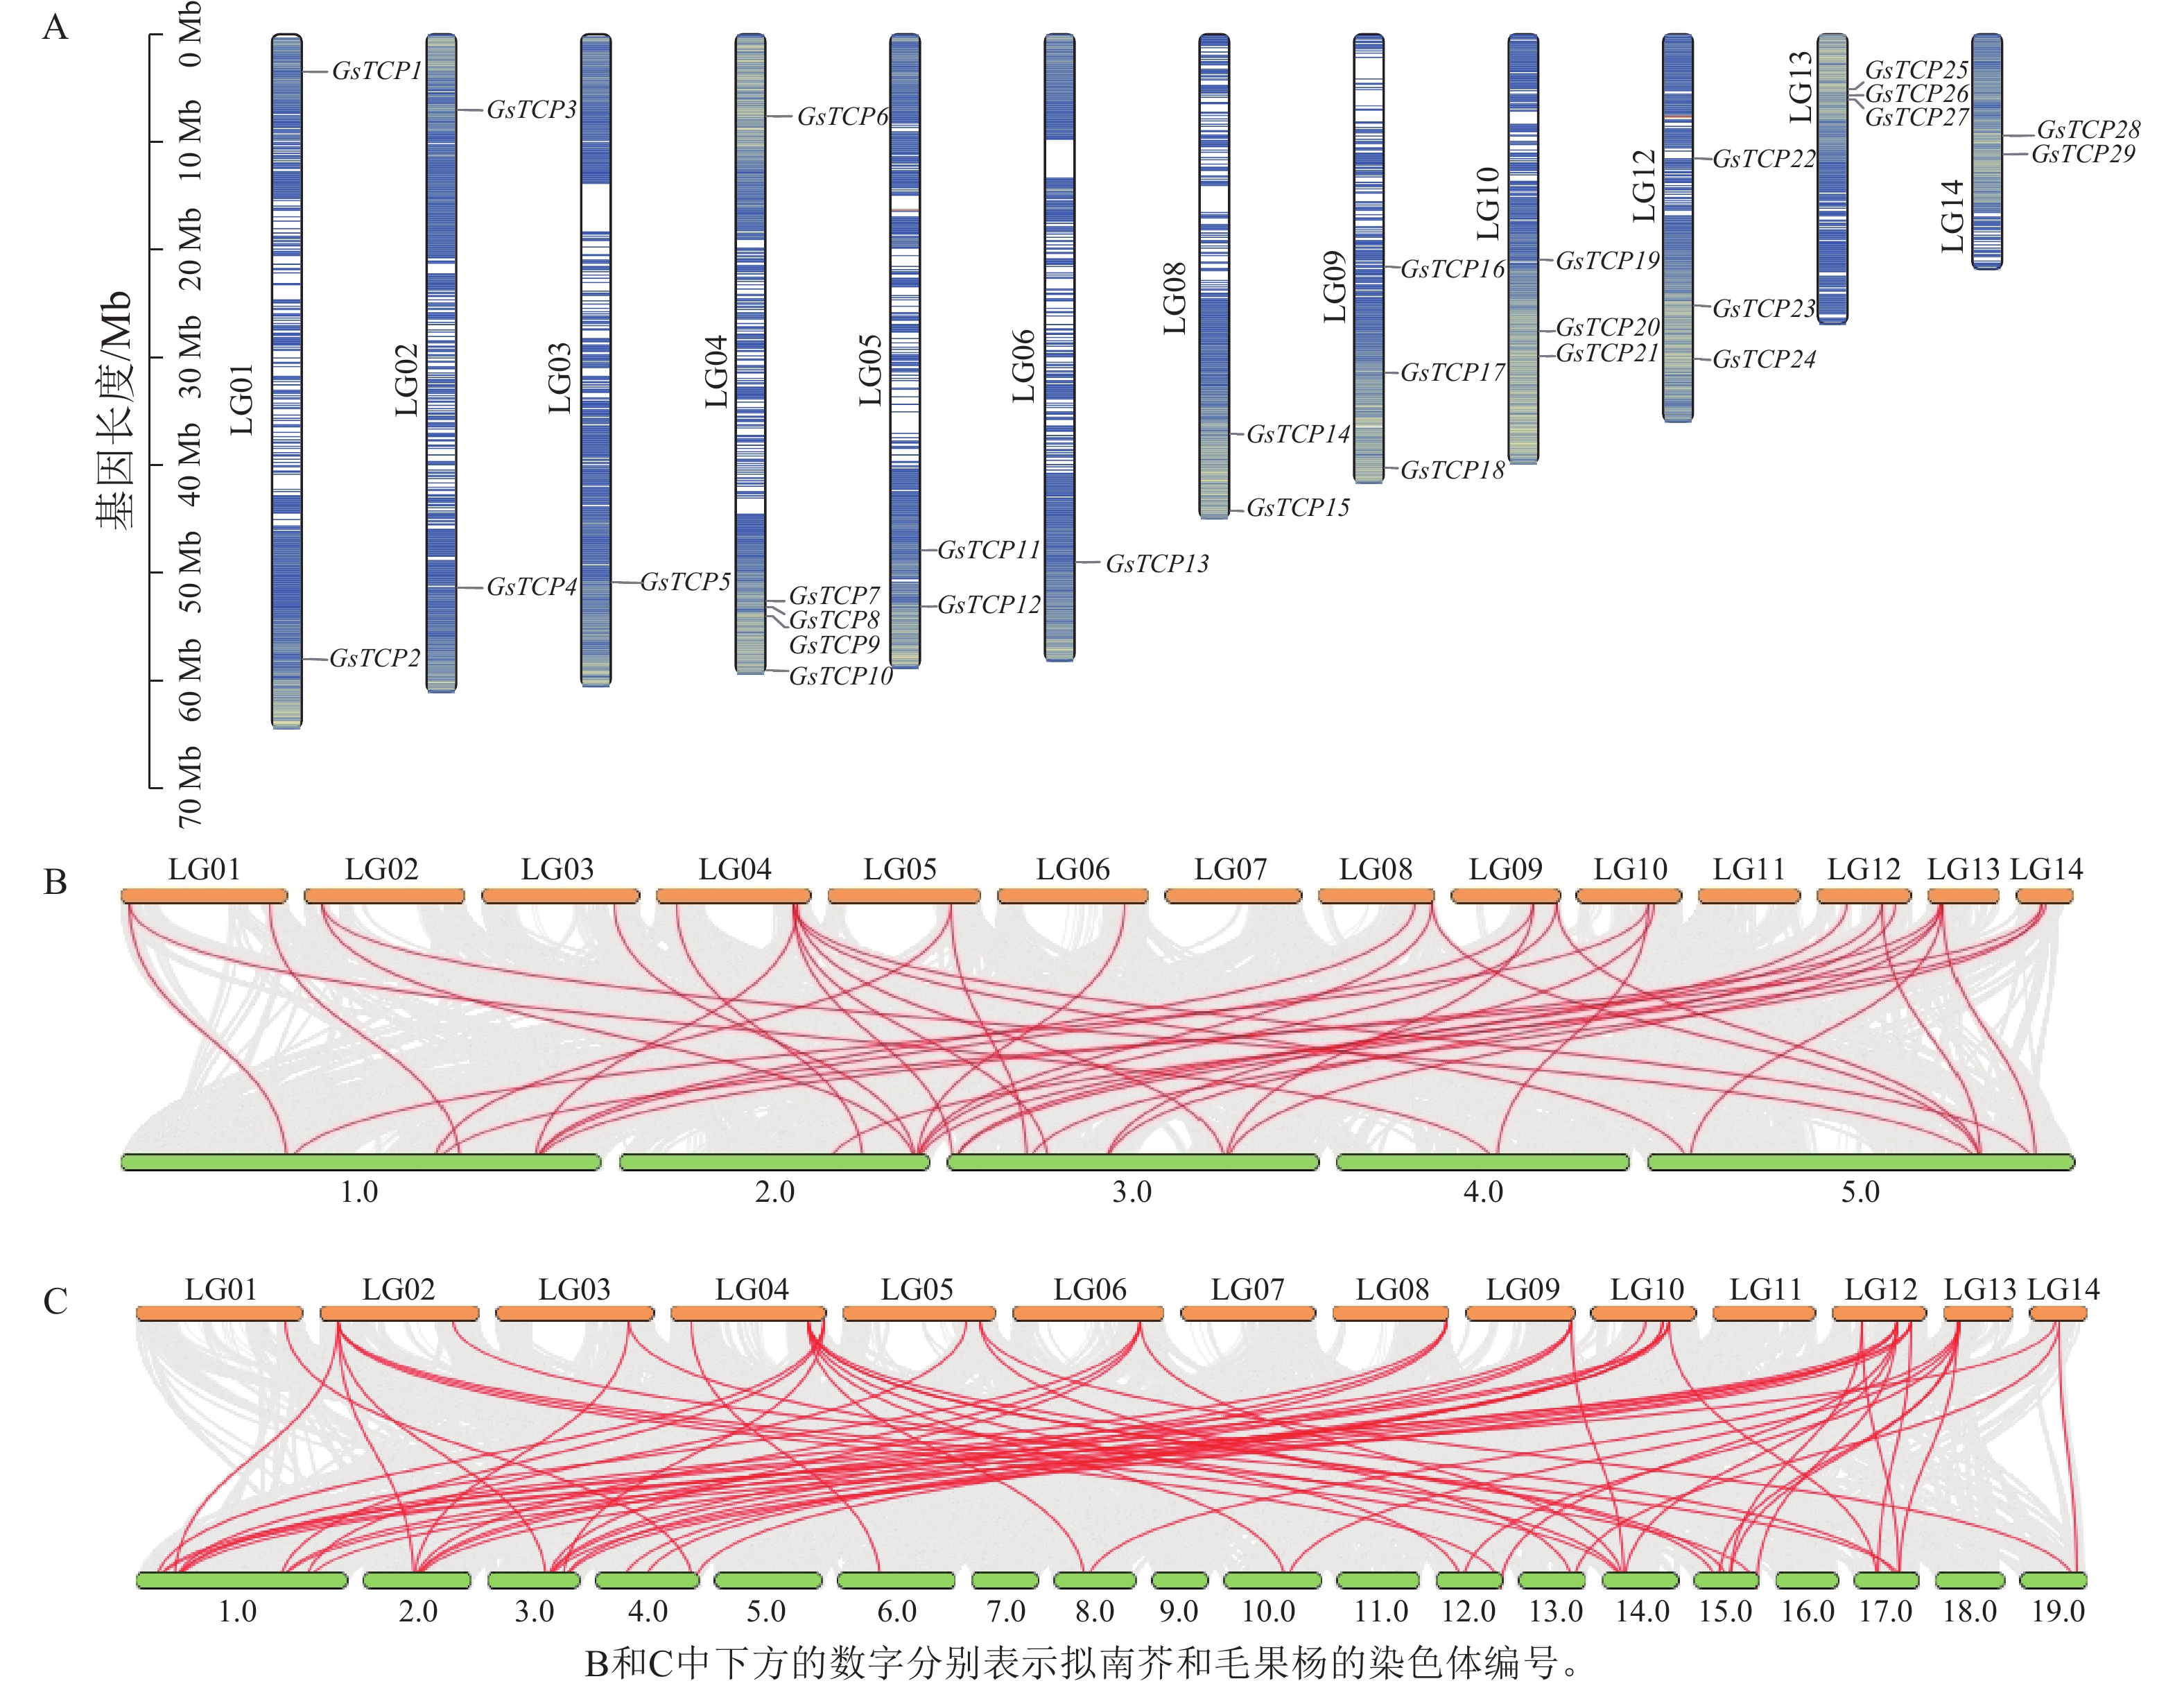
染色体定位(图3 A)显示:29个GsTCP基因分布于皂荚12条染色体(LG01~LG06、LG08~LG10、LG12~LG14),其中LG01和LG02上分布的成员较多,并检测到串联重复和片段重复事件,表明重复事件在GsTCP家族的进化中发挥了重要作用,体现了其进化的复杂性和动态性。
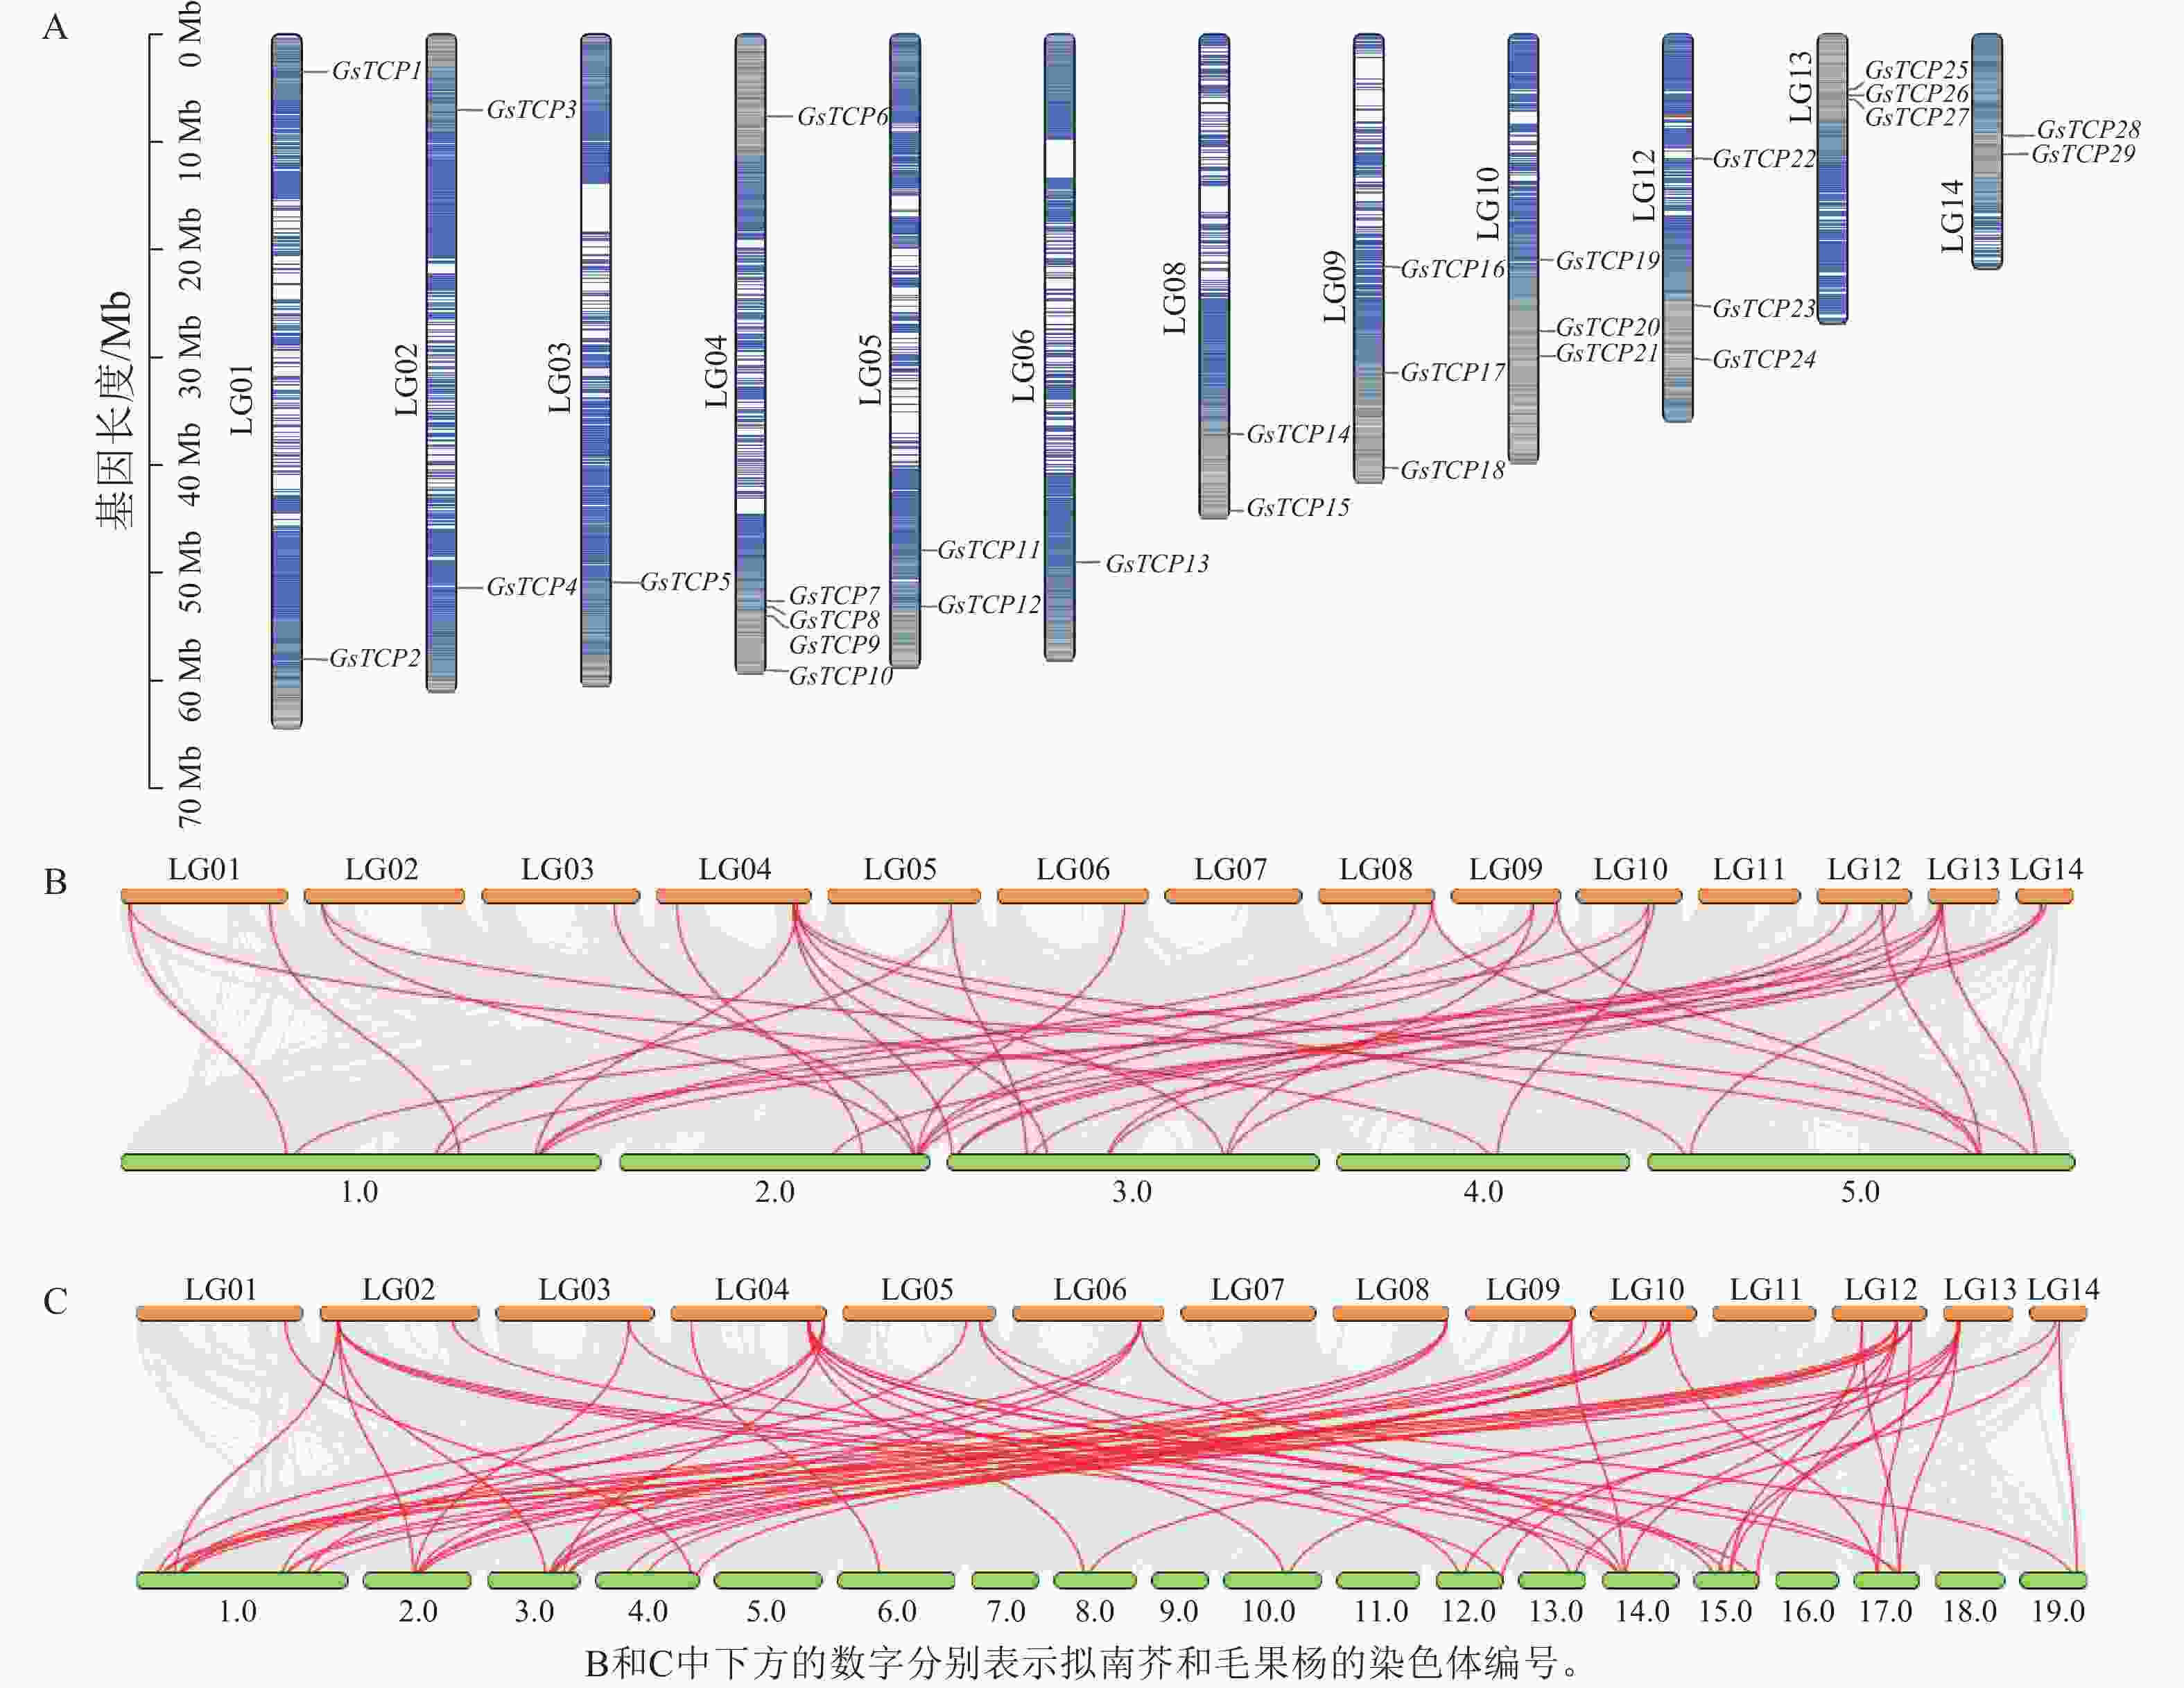
Figure 3. Chromosomal distribution of GsTCP genes (A), and synteny analysis between G. sinensis and A. thaliana (B) or P. trichocarpa (C)
为深入了解GsTCP转录因子的起源与进化机制,进一步对皂荚与拟南芥及毛果杨的TCP进行了跨物种共线性分析。结果显示:多个GsTCP成员在2个物种间均存在共线对基因(图3 B, 图3 C)。其中,皂荚与毛果杨之间的TCP共线关系相对更为丰富,而与拟南芥之间也存在一定数量的保守共线对。
-
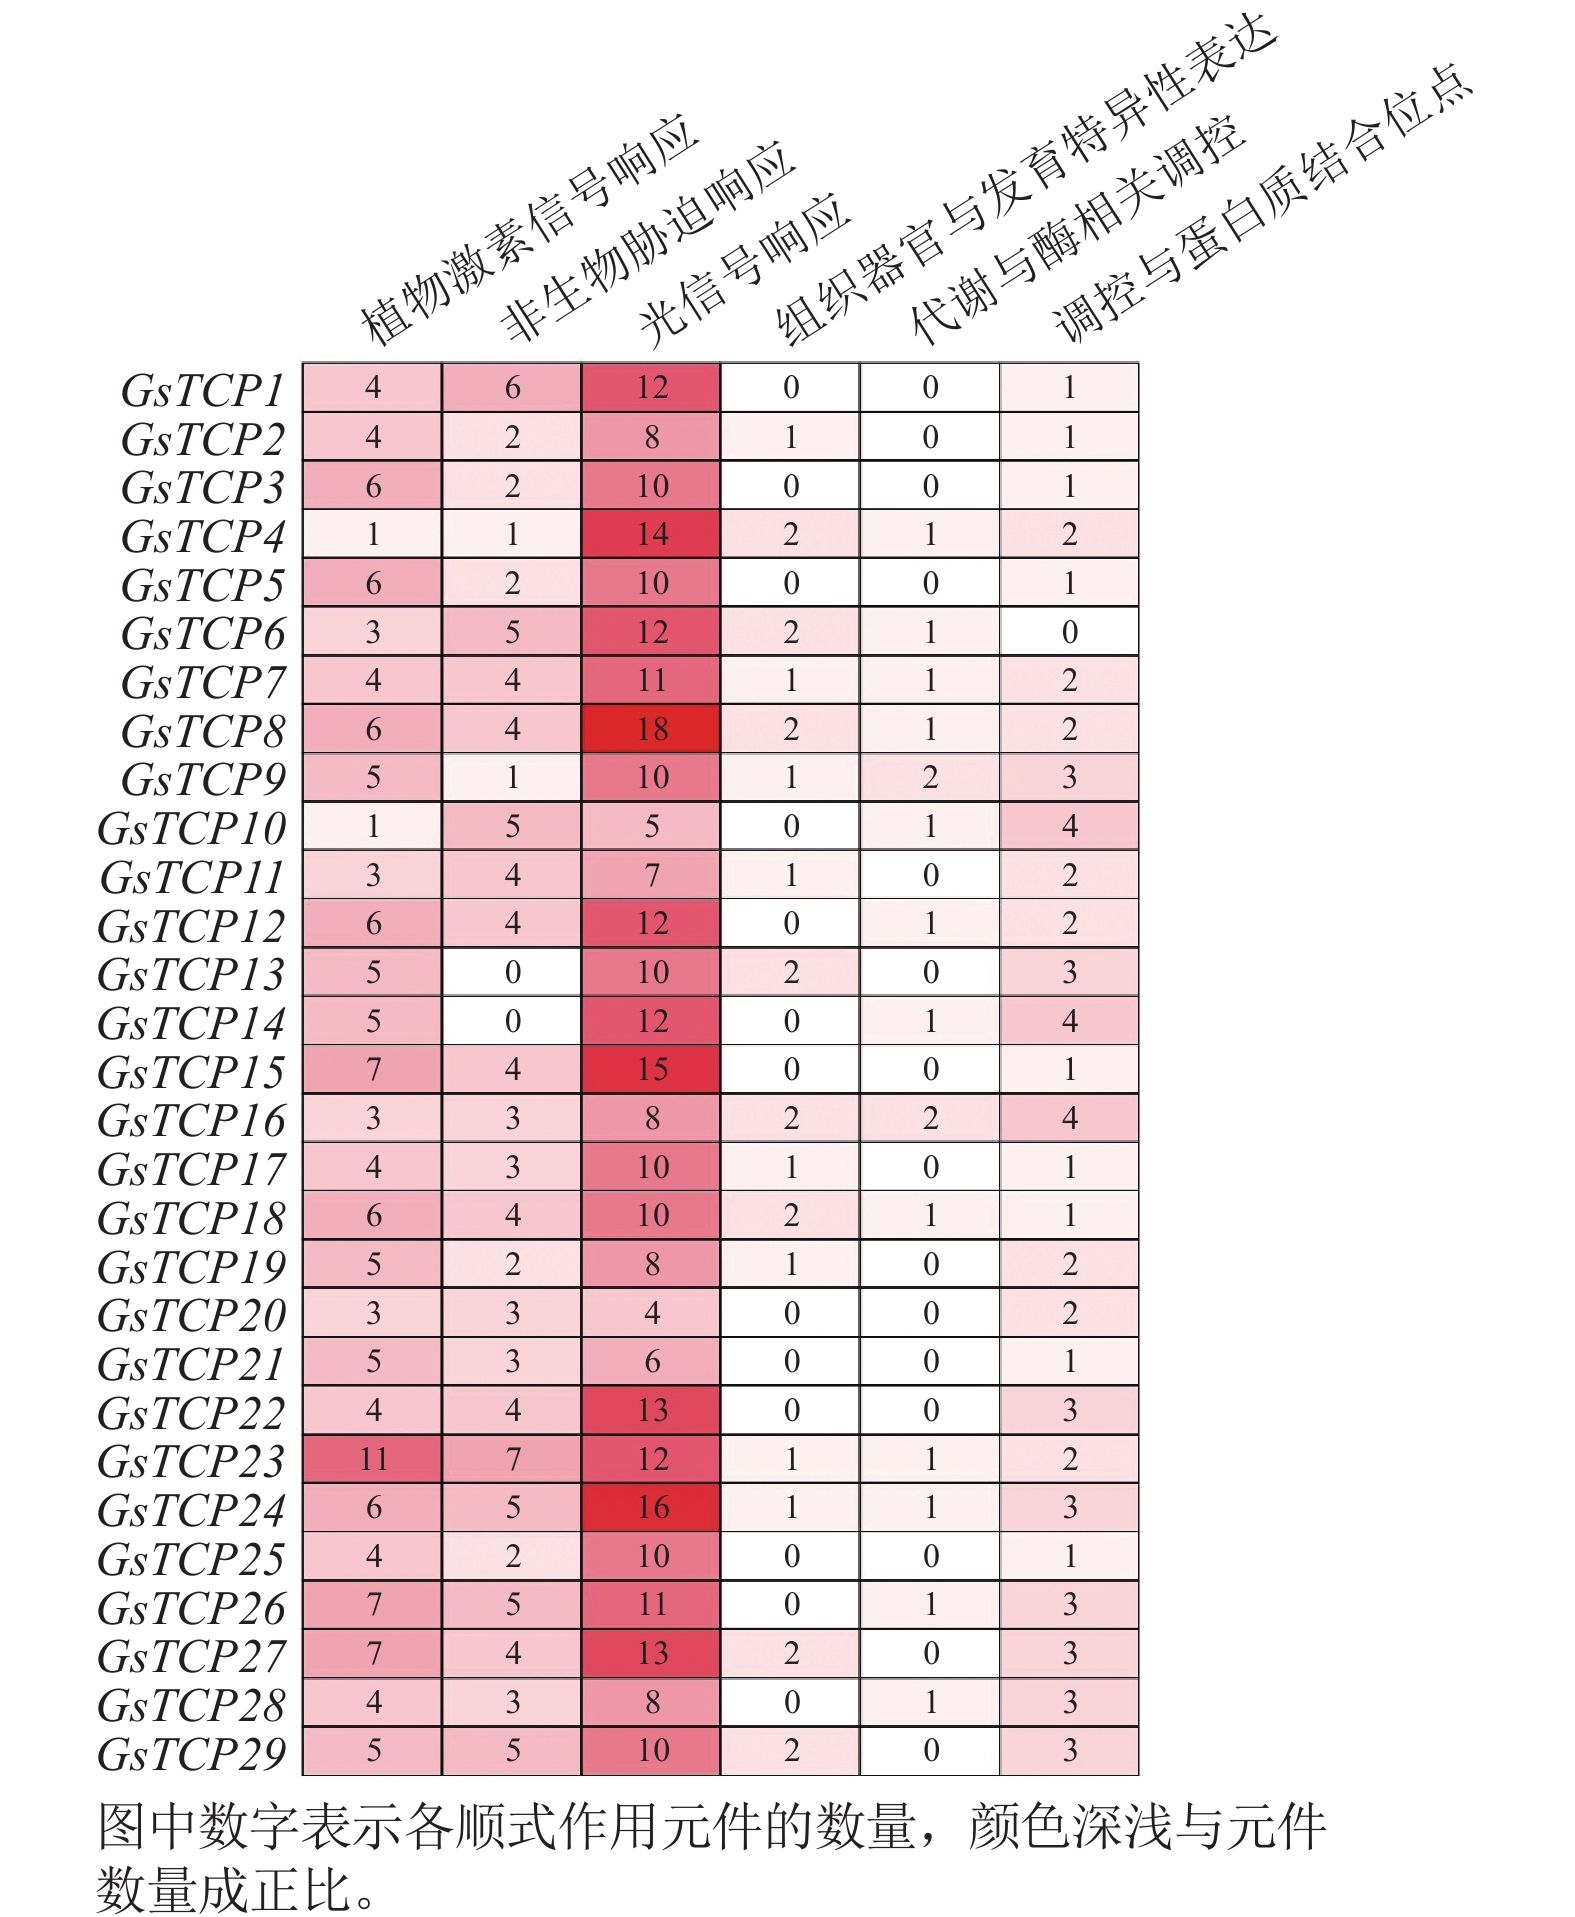
顺式作用元件分析结果显示(图4):GsTCP启动子区存在类型丰富的调控元件,广泛涉及植物生长发育、激素信号响应、非生物胁迫应答及转录调控等多个功能层面。对元件类型进行统计显示,与生长发育相关的元件主要包括分生组织表达调控元件、细胞周期调控元件等,表明部分GsTCP成员可能参与细胞分裂与组织分化等发育进程。在激素响应方面,茉莉酸甲酯响应元件在GsTCP启动子区域中分布最为广泛,脱落酸与生长素响应元件也有富集,表明GsTCP家族可能在茉莉酸信号介导的防御反应及多种激素信号的交叉对话中发挥调控功能。光响应元件数量在GsTCP家族中占据主导地位,广泛存在于绝大多数成员的启动子区域,提示光信号在GsTCP的转录激活过程中可能具有关键调控作用;在转录调控层面,MYB类转录因子结合位点在多个GsTCP启动子中高频出现,表明其表达可能受到上游MYB转录因子的调控。综上,GsTCP启动子元件构成的多样性为其参与多重信号通路和复杂发育过程提供了顺式调控基础。
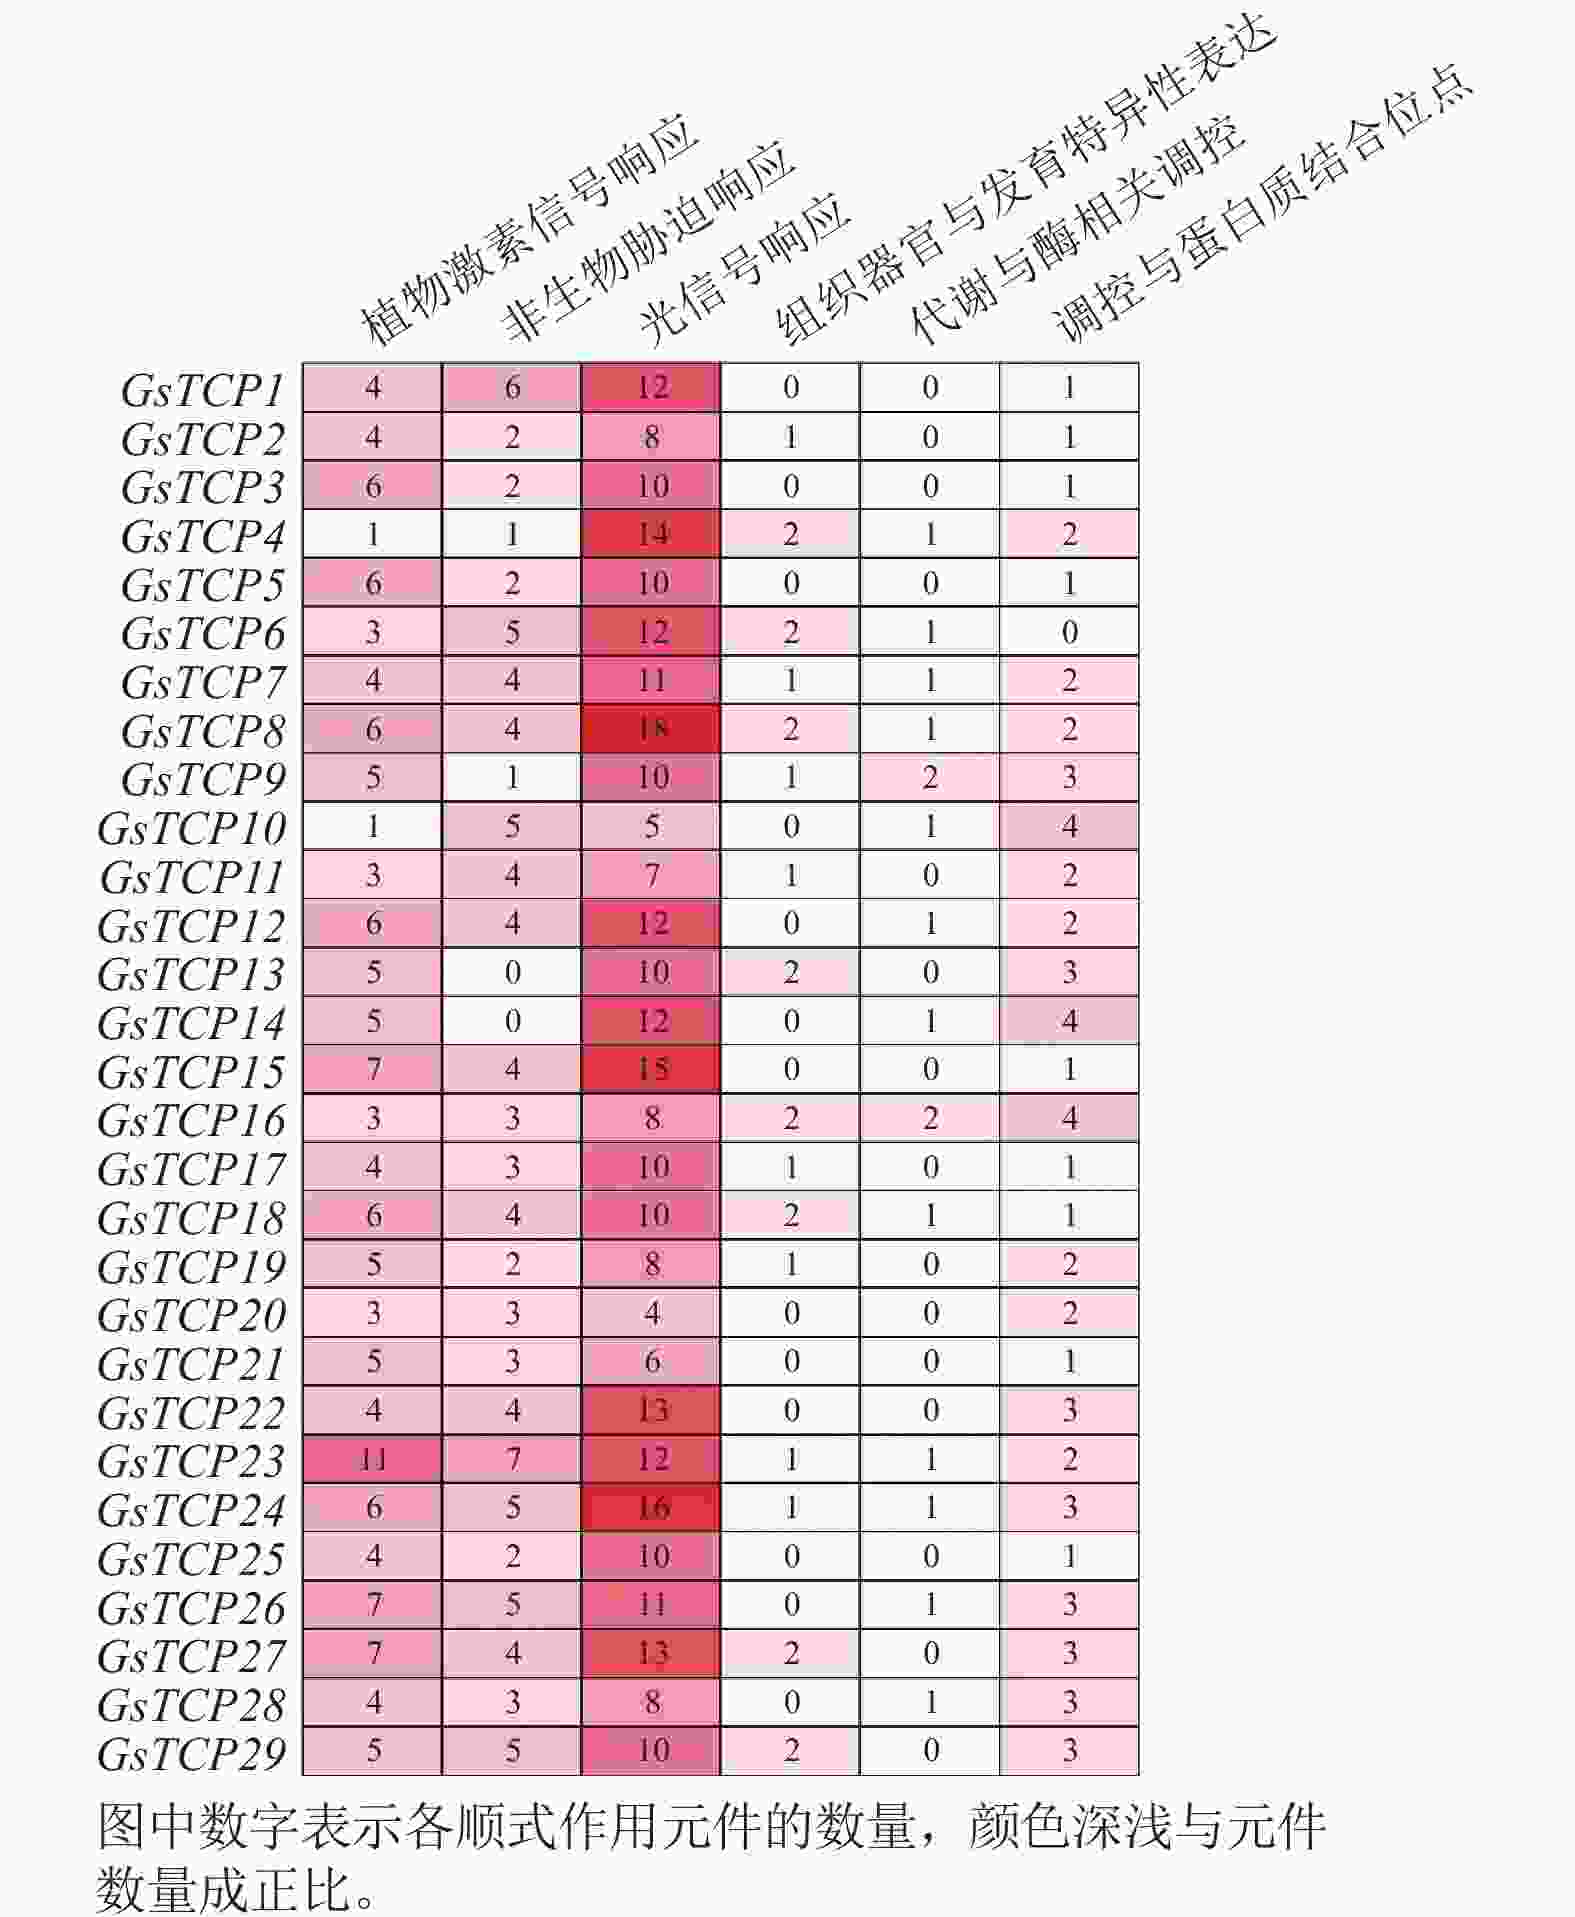
Figure 4. Analysis of cis-acting elements in the promote regions of the GsTCP family
综上所述,GsTCP家族启动子区富含多种激素与胁迫相关的顺式作用元件,且不同成员间元件的组成与分布存在差异。这一特征暗示该家族不仅参与植物的生长发育过程,还可能在整合光信号和茉莉酸信号等调控网络中发挥作用,从而在皂荚刺从细胞增殖、组织分化到后期的发育过程中实现调控。
-
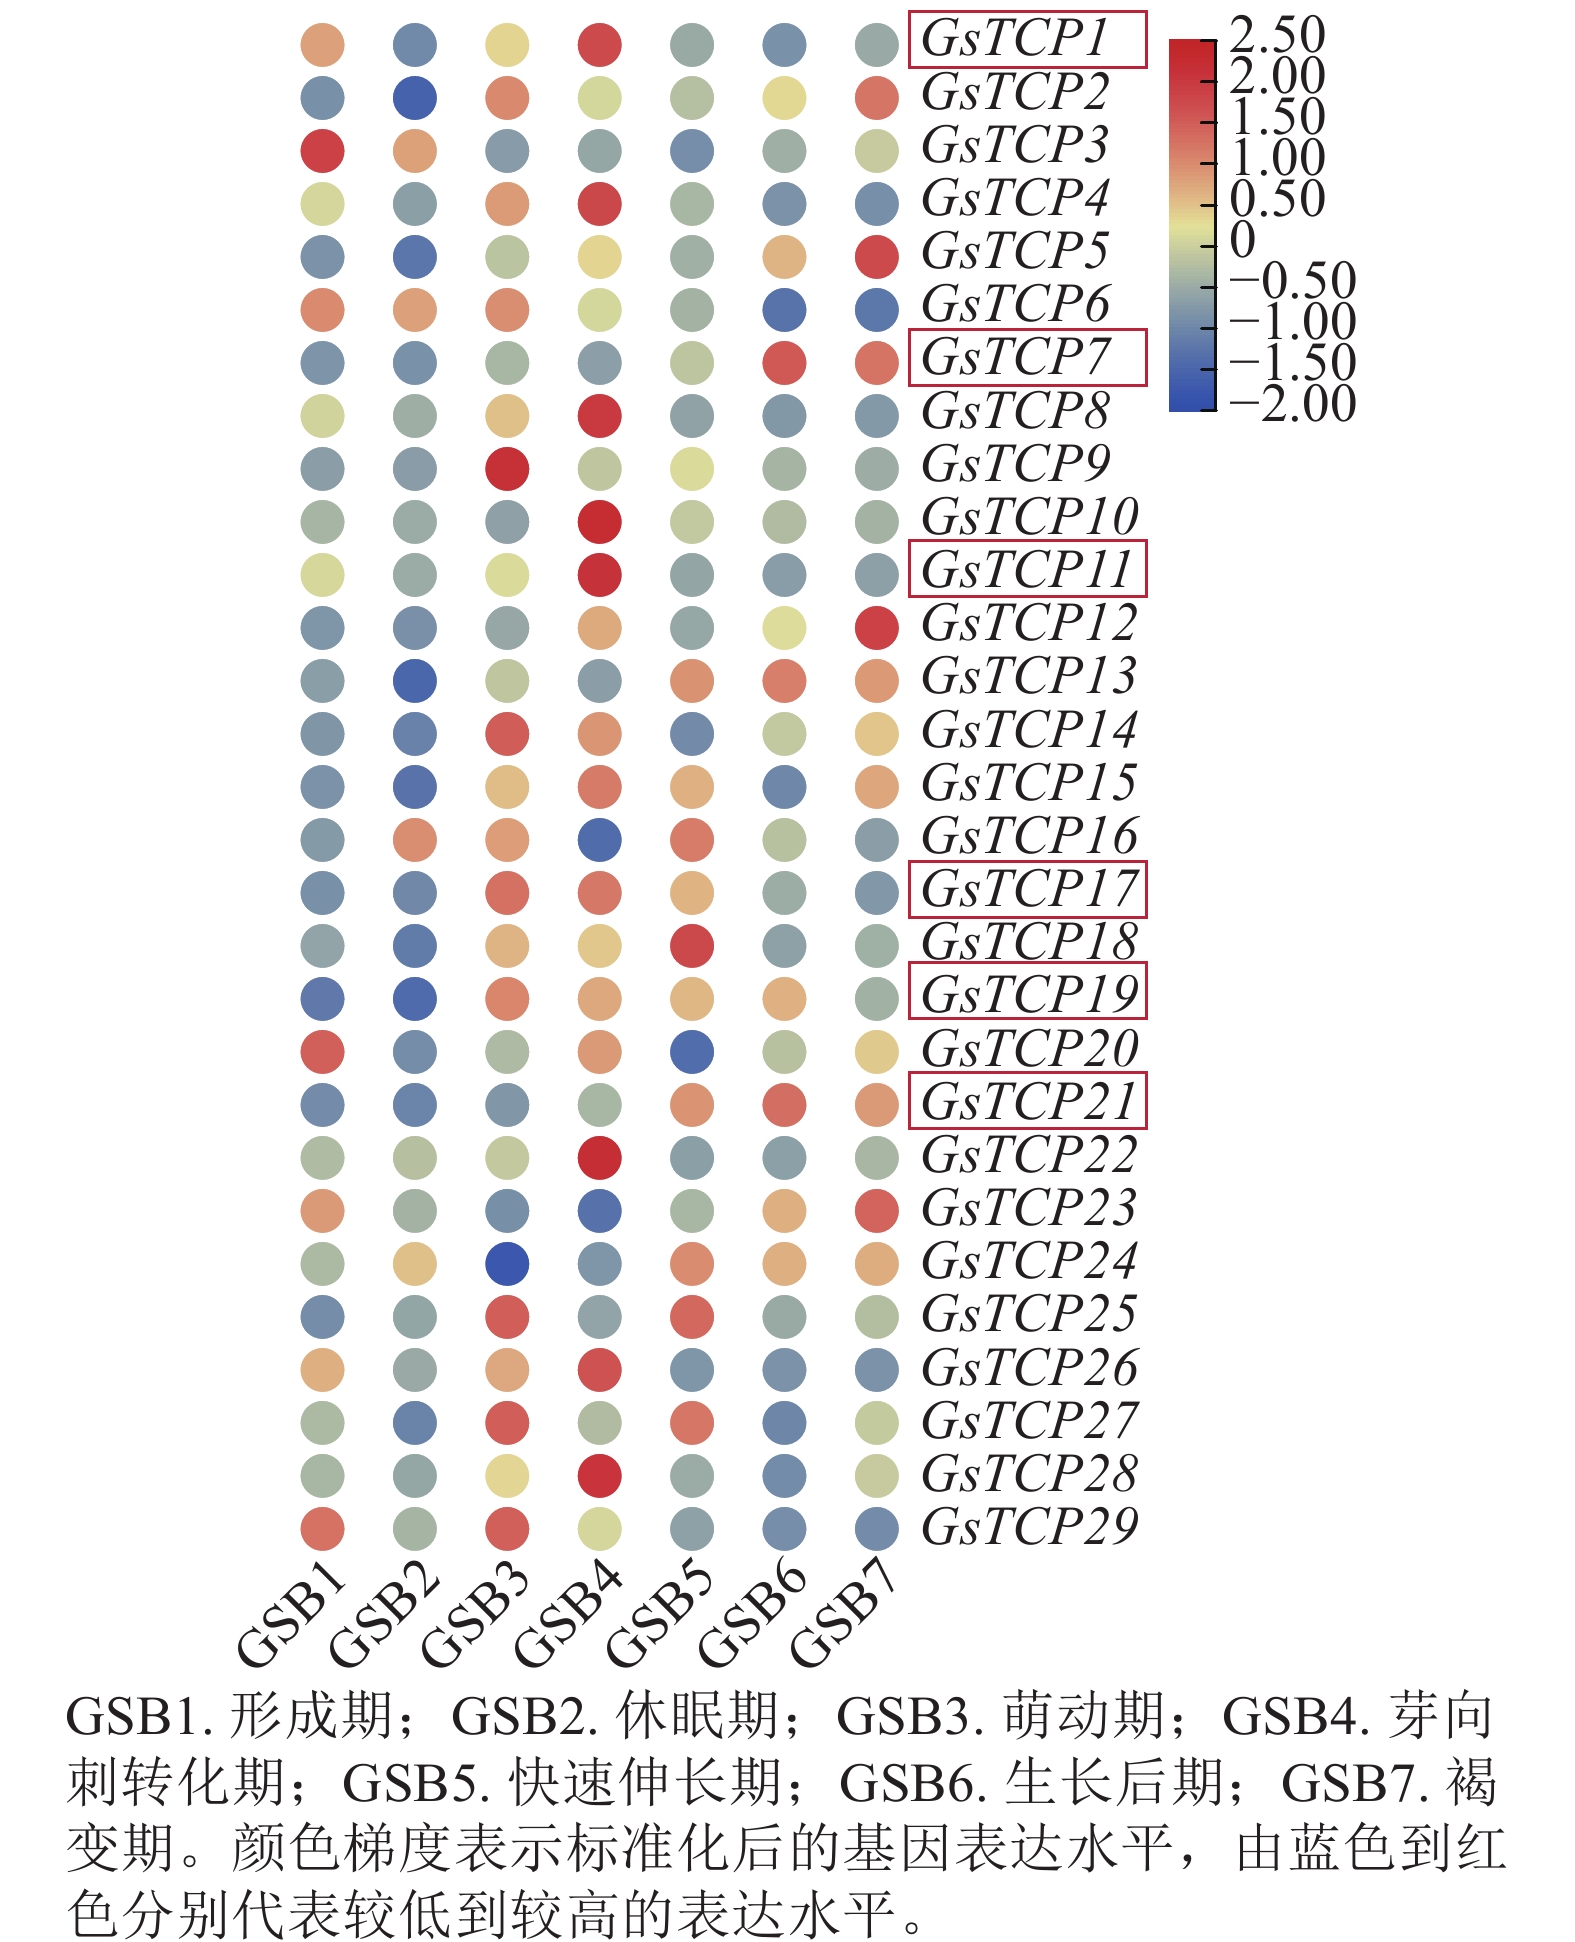
本研究基于实验室前期已发表的皂荚刺7个发育时期的转录组数据[18],对29个GsTCP成员的时序表达模式进行了分析。结果显示,多数成员在刺发育过程中维持基础转录活性,但表达水平存在明显的成员间差异(图5)。其中,GsTCP8、GsTCP12、GsTCP15及GsTCP26表达整体较低,在多个阶段几乎检测不到。与之不同,GsTCP1、GsTCP7、GsTCP11、GsTCP17、GsTCP19和GsTCP21在多个阶段均维持较高表达水平,提示其可能在细胞分裂、分化及次生代谢产物积累等核心过程中发挥关键调控功能。
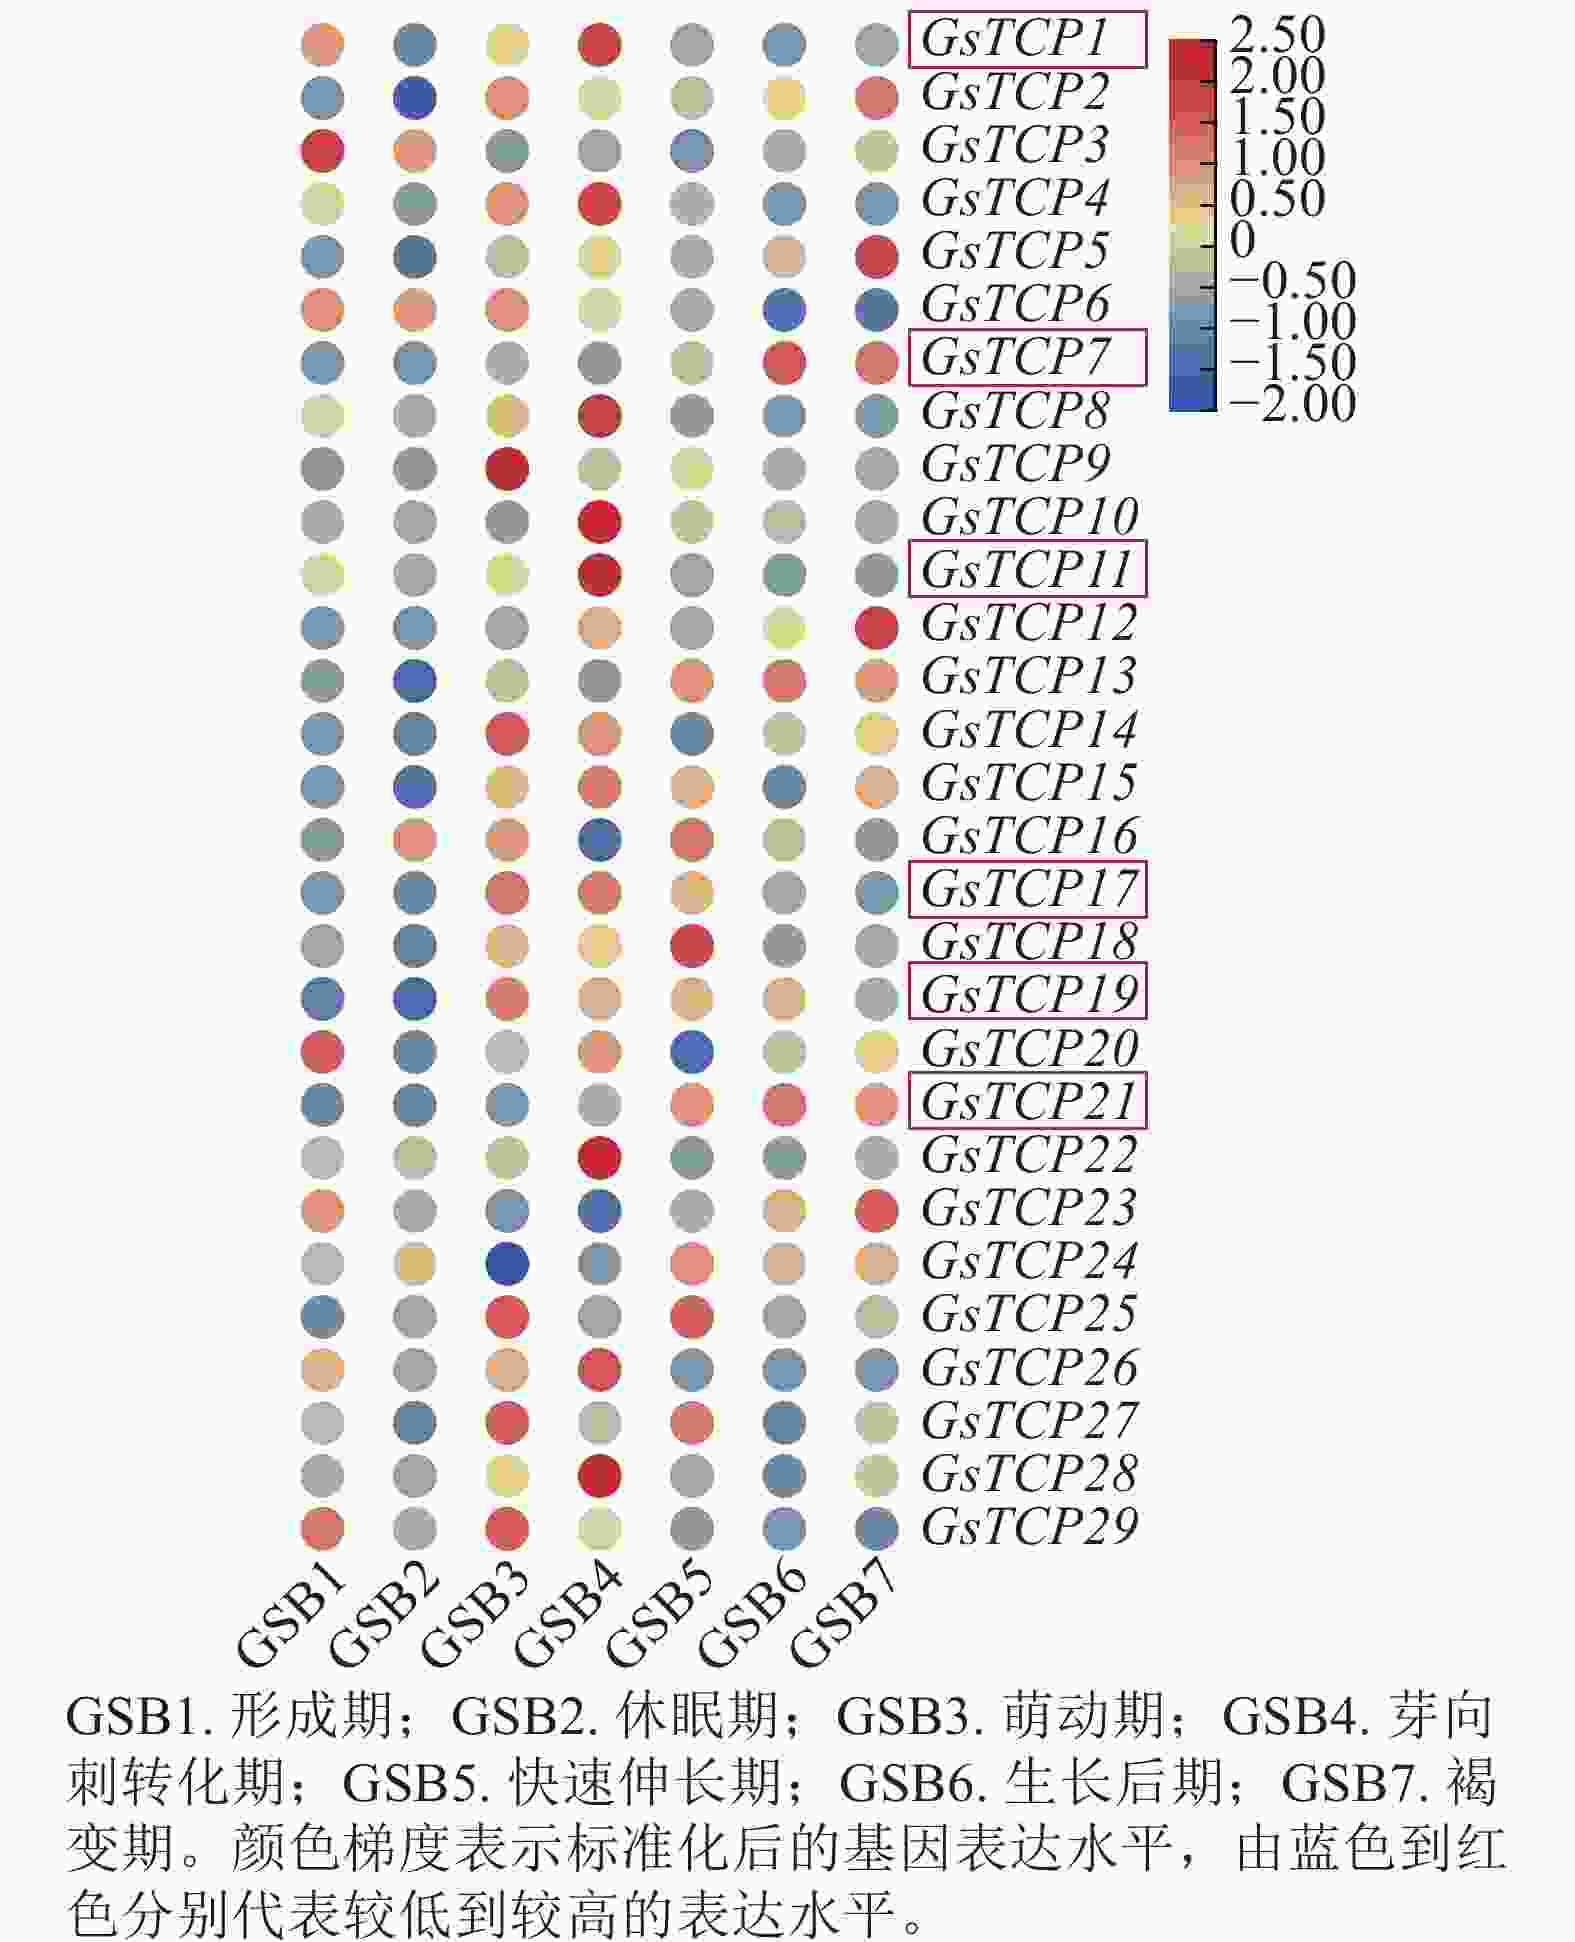
Figure 5. Expression patterns of GsTCP at different developmental stages of G. sinensis thorns
从发育阶段的动态变化角度分析,GsTCP家族成员呈现多样化的时序表达模式。大多数GsTCP基因在GSB3与GSB4阶段(推测为刺快速伸长期或组织分化活跃期)表达量达到峰值或出现显著上调,例如GsTCP17在GSB3和GSB4中表达极为突出,GsTCP9在GSB3中高表达,暗示这些基因可能精准调控皂荚刺特定发育时期的细胞活动。有趣的是,GsTCP7的表达在GSB6和GSB7阶段急剧升高,远高于其他成员在此阶段的表达水平,呈现强烈的阶段特异性激活特征,表明GsTCP7在皂荚刺发育后期(如木质化、皮层硬化或防御物质累积)中发挥核心调控作用。
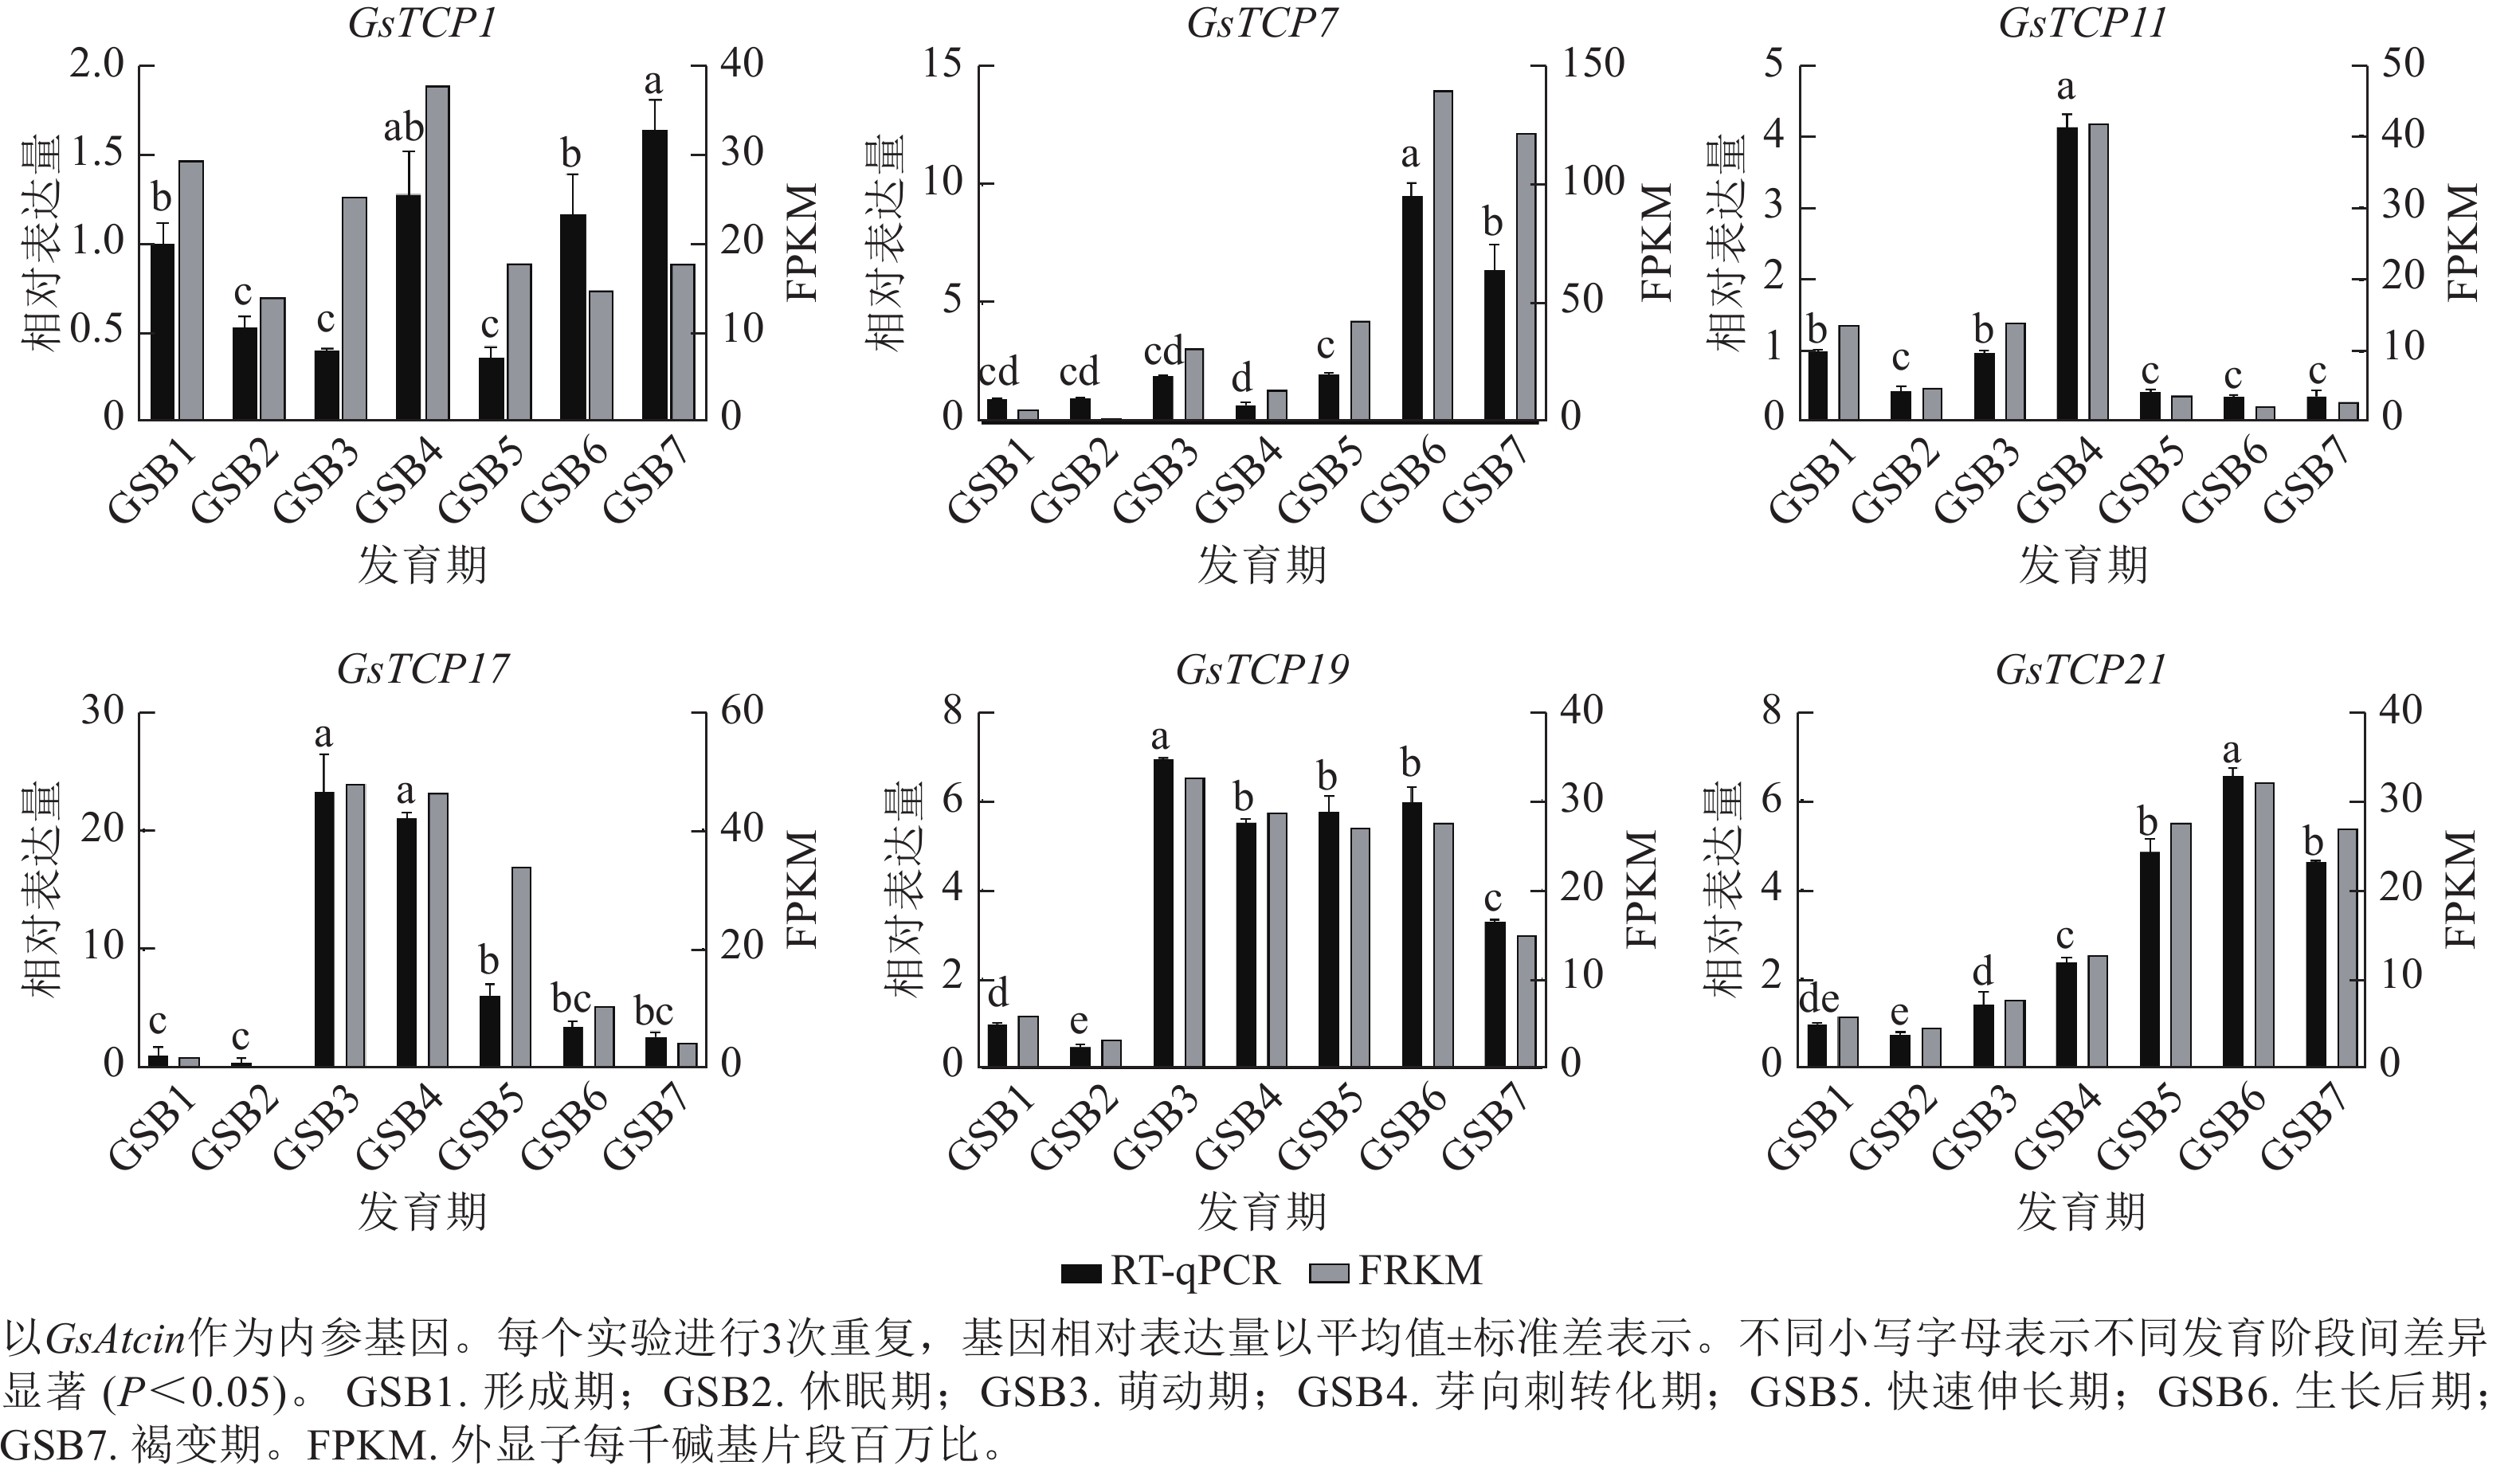
为验证参与皂荚刺发育的候选GsTCP的表达模式,基于转录组数据中在多阶段较高表达水平的筛选标准,选取了GsTCP1、GsTCP7、GsTCP11、GsTCP17、GsTCP19和GsTCP21共6个基因进行RT-qPCR分析。结果显示,其表达趋势与转录组结果高度吻合,证实了这些基因在刺发育中的高表达特征及转录组数据的可靠性(图6)。上述结果为后续深入解析GsTCP在皂荚刺发育中的生物学功能提供了可靠的数据基础。
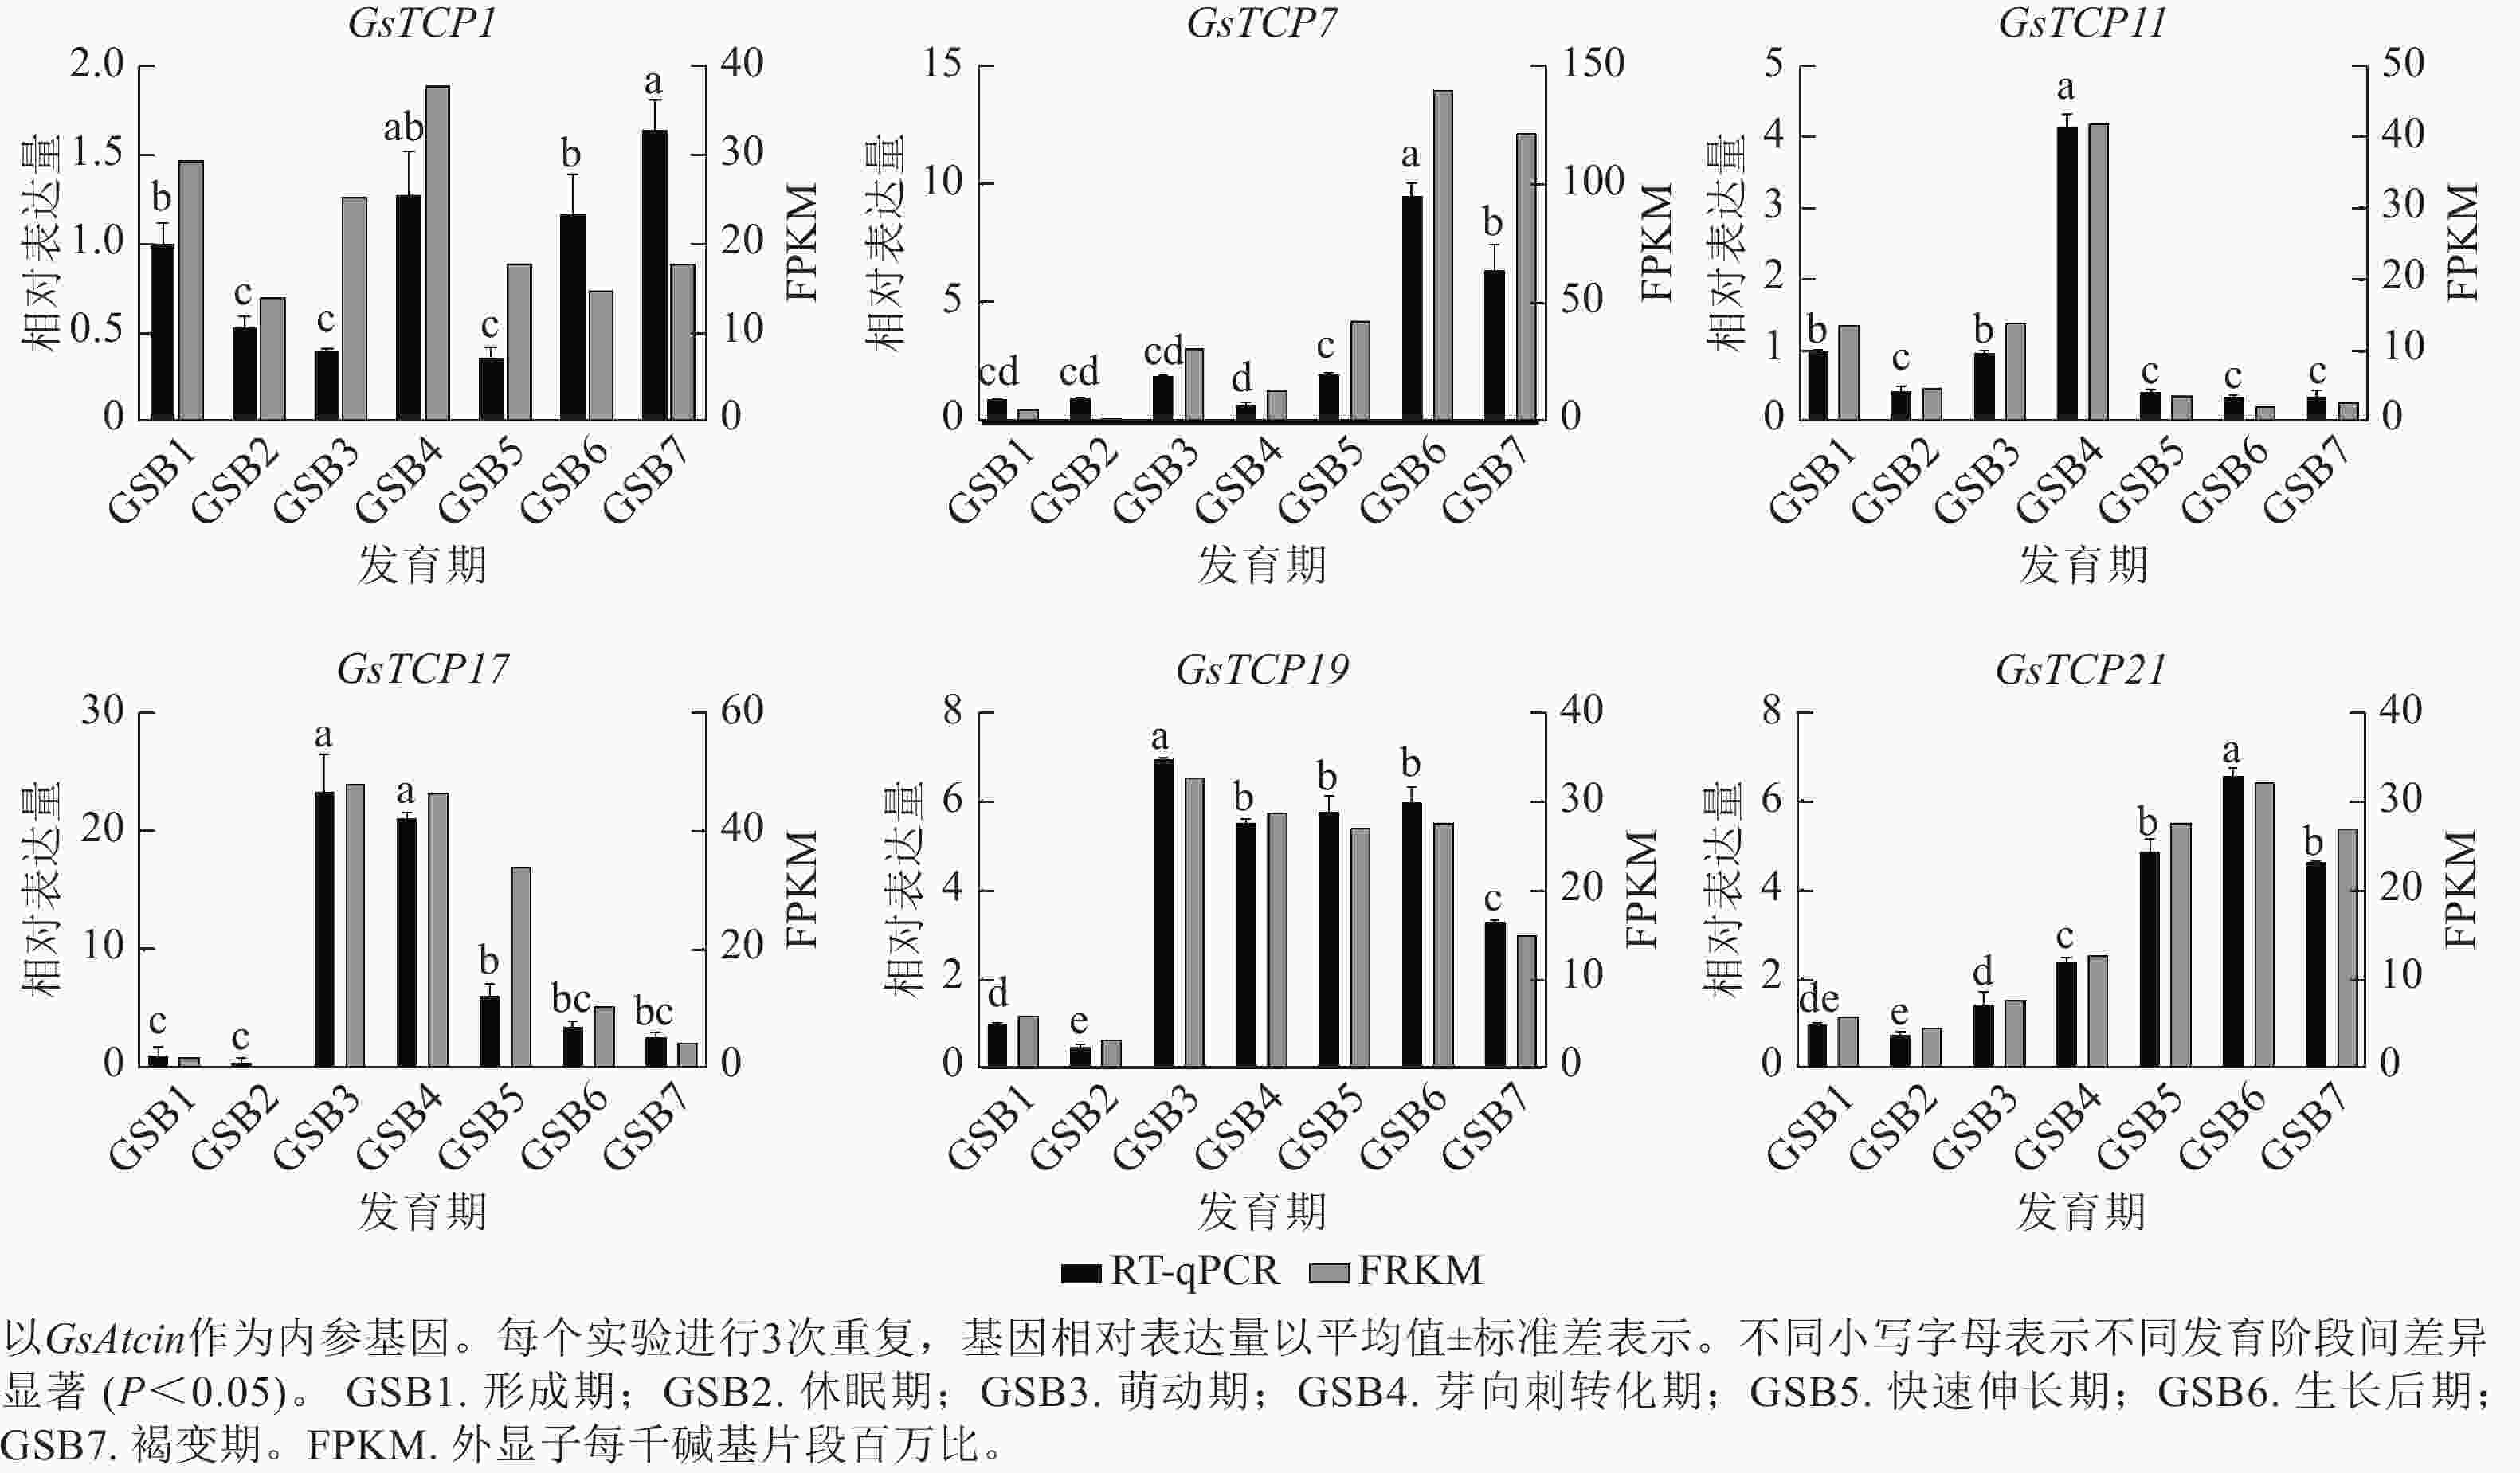
Figure 6. RT-qPCR validation of GsTCP gene family expression in G. sinensis thorns at different development stages
-
TCP转录因子家族是植物中关键调控蛋白,在生长发育、形态建成及胁迫应答中发挥核心作用。该家族已在拟南芥[11]、水稻[12]、杨树[14]等植物中被系统鉴定,但在皂荚中仍属空白。皂荚作为一种以茎源性枝刺为典型特征的经济树种,其刺发育的分子机制尚不清晰。因此,本研究基于已发表的皂荚全基因组序列[18]鉴定出29个GsTCP成员,数量少于大豆[27]、胡杨[14]等植物,略多于拟南芥[11]和水稻[12]。染色体定位显示GsTCP分布于12条染色体。共线性分析表明:皂荚与毛果杨TCP之间共线性基因对数量较多,与拟南芥也存在保守共线性关系。皂荚与同为木本植物的毛果杨共线性更为丰富,暗示木本植物间可能保留了更多保守的TCP调控模块,其中部分基因可能参与刺的发育调控。系统发育分析将GsTCP划分为Class Ⅰ (PCF类)与ClassⅡ (CYC/TB1与CIN类)两大分支,与拟南芥、水稻等物种分类一致,表明TCP家族在植物进化中高度保守。其中Class Ⅰ成员数量占优势(19个),而Class Ⅱ较少(10个),与杨树[14]、茶树[15]分布格局相似,暗示Class Ⅰ可能在木本植物进化中经历了活跃的扩增,在其生长发育调控网络中承担广泛的基础功能。值得注意的是,GsTCP17和GsTCP7均属于Class Ⅰ分支,而GsTCP9归入Class Ⅱ的CIN亚类。这3个在刺发育中差异表达的基因分属不同进化分支,提示TCP家族对刺发育的调控可能是多分支协同参与的复杂过程。
-
顺式作用元件分析为预测GsTCP的上游调控网络提供了重要线索。结果显示:GsTCP启动子区广泛富集光响应、茉莉酸响应元件及MYB转录因子结合位点等。光响应元件的高度富集与TCP参与光信号调控植物生长发育的功能一致,如拟南芥TCP成员直接参与光调控下胚轴伸长与子叶扩张[28]。皂荚刺的发育具有明显的季节性节律特征,通常在春季后启动刺转化,这一过程与光周期信号密切相关,光响应元件的富集暗示光信号可能通过调控GsTCP表达参与皂荚刺的发育。茉莉酸响应元件的广泛分布则暗示GsTCP可能参与茉莉酸介导的防御与次生代谢调控[9]。尤为重要的是,MYB结合位点的高频出现表明:GsTCP表达可能受到上游MYB层级调控[29]。在植物中,MYB转录因子是次生壁合成与木质素沉积的核心调控因子,多个MYB成员已被证明直接激活木质素合成途径关键酶基因。这与杨树中TCP23受MYB调控并参与次生壁形成的机制类似[23],多个GsTCP成员启动子区域含有MYB结合位点,这为理解皂荚刺硬化的分子调控提供了重要的思路。不同GsTCP元件组成与分布差异明显,部分成员(如GsTCP9、GsTCP19)启动子区特异性富集分生组织表达相关元件及厌氧诱导元件,提示其在特定发育阶段或胁迫下可能具有特异的调控功能[30]。综合来看,GsTCP启动子区元件的差异化组成与刺发育不同阶段的需求相吻合,为解析刺发育时序调控网络中的上游信号提供了潜在的分子靶点。
-
基因的时序表达是其生物学功能的直接体现。本研究中,多数GsTCP的表达在皂荚刺的萌动期至芽转刺期(GSB3和GSB4)达到峰值(如GsTCP9/17)。已有研究表明:TCP转录因子是植物形态建成的枢纽,不仅能激活细胞周期基因驱动细胞增殖,其经典成员BRC1更是决定腋芽分枝命运的关键因子[31]。因此,这些早期高表达的GsTCP可能驱动了皂荚腋芽向刺的转化及初期的快速伸长。随着发育进入成熟褐化期(GSB6和GSB7),由细胞分裂转向次生细胞壁加厚与木质化。此时,GsTCP7呈现出暴发式的特异性表达,这一表达模式与皂荚刺从柔嫩绿色芽状结构逐渐转变为坚硬褐色针刺的形态变化高度同步。GsTCP7在发育后期具有表达优势,是驱动皂荚刺皮层硬化及最终物理防御屏障形成的核心基因。近年研究证实,TCP可直接激活木质素合成,正向调控维管发育与次生壁沉积[32]。GsTCP17启动子区同时富集茉莉酸响应元件和MYB结合位点,因此,GsTCP17在刺发育后期可能受茉莉酸信号诱导,并与MYB转录因子协同作用,激活下游木质素合成途径,调控刺皮层细胞的次生壁加厚和木质素大量沉积。
此外,GsTCP家族内部呈现一定的时序表达调控。例如,早期激活的GsTCP9/17在芽转刺及快速伸长期达到峰值后相对表达量迅速下降,而GsTCP7则从生长后期开始显著上升并在褐化期达到顶峰,呈现出明显时序表达模式;而GsTCP19/21/24则在中后期维持平稳高表达。这种表达谱表明了GsTCP不同成员可能在早期促进皂荚刺器官生长,后期诱导成熟分化的作用机制[33]。这种时序表达,有利于皂荚刺从柔嫩芽到坚硬防御器官的精准发育,也为后续筛选皂荚刺形成的关键功能基因提供了候选的关键靶点。
-
本研究在全基因组水平系统鉴定了GsTCP家族,共获得29个GsTCP成员,GsTCP可划分为Class Ⅰ和Class Ⅱ2个亚家族,均含TCP保守结构域。共线性分析表明:该家族在木本植物间高度保守。GsTCP启动子区广泛富集光、茉莉酸响应元件及MYB结合位点,暗示其整合光周期、激素信号与内源生物钟途径调控皂荚生长发育。基于皂荚刺7个连续发育阶段的转录组数据,发现GsTCP呈时序表达模式:部分成员(如GsTCP9/17)在萌动与芽转刺期上调表达,可能主导腋芽细胞增殖与形态建成;GsTCP7在褐化成熟期暴发式高表达,可能驱动刺次生壁加厚与木质化。综上,本研究阐释了GsTCP的基因组与演化特征,解析了其在刺时序发育中的动态调控,为刺形成机制解析及分子育种提供了一定的理论支撑。
Identification of TCP gene family in Gleditsia sinensis and expression analysis at different developmental stages of thorns
doi: 10.11833/j.issn.2095-0756.20260268
- Received Date: 2026-05-12
- Accepted Date: 2026-07-22
- Rev Recd Date: 2026-07-19
- Available Online: 2026-09-16
-
Key words:
- Gleditsia sinensis /
- TCP transcription factor /
- thorn /
- development
Abstract:
| Citation: | RONG Kaijing, LIU Jiahao, AN Lijun, et al. Identification of TCP gene family in Gleditsia sinensis and expression analysis at different developmental stages of thorns[J]. Journal of Zhejiang A&F University, 2026, 43(5): 935−944 doi: 10.11833/j.issn.2095-0756.20260268

|
 DownLoad: