



-
金线莲Anoectochilus roxburghii别名金线兰、鸟人参,为兰科Orchidaceae开唇兰属Anoectochilus单子叶植物,为国家二级濒危保护植物[1]。金线莲含有丰富的金线莲苷[2]、多糖、黄酮类化合物、强心苷类、氨基酸、有机酸、甾体化合物、生物碱等生物成分[3],其味甘性平,有清凉解毒、滋阴降火、消炎止痛、降血糖、降血压、利尿、保肝的作用[4]。
在自然环境中,金线莲种子的萌发需要相关真菌伴生,自然萌发率低且环境适应性差[5],加之人工过度采挖,使得金线莲野生资源日趋减少。目前生产上主要通过组织培养繁育种苗[6]。类原球茎(PLBs)是兰科植物组织培养过程中,由原球茎和体细胞诱导形成的类似原球茎的结构,是金线莲组织培养中种苗再生的核心结构。同时,类原球茎生长与分化是受基因调控和激素信号协同作用的相对稳定的动态过程,其高效诱导与稳定分化是突破自然繁殖限制、实现人工规模化育苗的关键生物学基础。有研究表明:石斛属Dendrobium中乙烯响应因子(ERF)类转录因子DoERF5过表达可极大促进类原球茎再生,并上调创伤诱导脱分化同源基因DoWIND、无茎尖分生组织基因DoSTM,以及参与细胞分裂素生物合成的DoIPT和细胞分裂素响应因子DoARRs的表达水平[7]。由此可见,兰科植物类原球茎的再生与发育依赖于多激素信号通路的协同调控,这一机制在不同兰科植物中具有一定保守性。
植物生长素响应因子(ARF)是生长素信号传导过程中的关键因子[8]。生长素作为一种植物激素,在植物生长发育调控中发挥重要作用,其调控范畴涵盖侧根发生、顶端优势、维管组织分化、茎伸长、胚胎模式建成、果实成熟、脱落、衰老及向性反应等[9]。ARF与生长素/吲哚乙酸(Aux/IAA)这2个关联的基因家族,在生长素应答基因的表达调控及植物发育过程中具有不可或缺的作用[10]。ARF具有与生长素响应元件(AuxREs)的结合能力,可通过激活或抑制生长素响应基因(如Aux/IAA、GH3和SAUR等)的表达[11],影响植物生长发育。绝大多数ARF蛋白包含3个结构域:N末端为高度保守的B3型DNA结合结构域,中间为具有转录激活或抑制活性的Auxin_resp结构域,C端为Aux/IAA结构域[12];其中,Aux/IAA结构域可调控ARF与AuxRE的结合,并调控下游生长素响应基因的表达模式。鉴于生长素信号是调控金线莲生长发育与离体繁殖的核心通路,而ARF是该信号通路的核心转录因子,因此本研究选取ARF基因家族开展金线莲发育机制解析。同时,类原球茎作为金线莲离体繁殖的核心结构,其增殖、分化及再生过程也可能受到复杂转录因子网络与激素信号的协同调控,而ARF基因家族在此过程中或发挥关键调控作用。
目前,金线莲全基因组测序已完成,但对其ARF转录因子家族的系统研究仍属空白,尤其是全基因组层面ARF家族成员的鉴定及其在类原球茎生长发育中的表达规律尚不明确。鉴于此,本研究基于金线莲全基因组及转录组数据,采用生物信息学方法系统筛选并鉴定金线莲ARF (ArARF)家族成员,明确其基因组水平的分布特征;同时分析ArARF在不同生长阶段(5、8、10、13、20 d)及不同部位(上半部分“芽”与下半部分膨大区)的表达模式,揭示其在类原球茎发育进程中的表达规律,为解析ArARF家族基因调控金线莲类原球茎形成、生长及分化的分子机制提供关键基础。
-
本研究以金线莲为试验材料。选取金线莲茎段诱导的不同生长阶段类原球茎为样本,按整体、上部分、下部分划分取样,设3次重复,用于转录组测序。基础数据来源于浙江农林大学中药资源团队前期金线莲全基因组测序结果及本次转录组测序数据。
-
基于上述基因组和转录组测序结果,初步筛选ArARF转录因子候选基因;利用美国国家生物技术信息中心(NCBI)开放阅读框查找工具(ORF Finder),找出与其对应的氨基酸序列,并利用NCBI-CDD和SMART在线分析工具,分析蛋白的保守结构域。利用TBtools软件One Step Build a ML Tree工具对金线莲、拟南芥Arabidopsis thaliana、玉米Zea mays和水稻Oryza sativa ARF蛋白序列进行比对,Bootstrap重复值为5 000,采用最大似然法(ML)构建发育树,并利用iTOL在线工具美化。
-
利用ProtParam在线网站对ArARF转录因子的蛋白长度、分子量、理论等电点、脂溶指数、亲疏水性等理化性质进行分析;利用Cell-PLOC2.09对筛选到的金线莲ARF蛋白进行亚细胞定位预测。
-
利用在线软件GSDS 2.0获得金线莲ArARF外显子-内含子结构。使用MEME预测ArARF蛋白的保守基序,再用TBtools软件绘制可视化图片,并对ArARF蛋白保守基序进行分析[13]。
-
利用SOPMA二级结构在线预测软件对ArARF蛋白二级结构进行分析。使用SWISS-MODEL进行蛋白三级结构预测[14]。
-
根据基因ID,以金线莲基因组注释文件中提取ArARF家族成员的染色体定位信息,整理后利用TBtools软件绘制染色体定位图[15]。
-
通过TBtools软件,从ArARF上游2 000 bp中提取启动子序列[16]。使用PlantCARE数据库对提取的序列进行顺式作用元件分析。
-
基于金线莲类原球茎不同生长时期(5、8、10、13、20 d)及不同部位(10、13、20 d类原球茎上半部分“芽”与下半部分膨大区)的转录组数据,检索35个ArARF的表达值(每百万映射读数中每千碱基转录本的片段数,FPKM),并使用TBtools软件中的Heat Map模块绘制差异表达热图。
-
针对筛选出的5个在“芽”与膨大区间差异表达的ArARF基因,采用Primer Premier软件设计特异性引物,以Actin为内参基因,进行引物合成(表1)。荧光定量反应体系为20 μL (ddH2O 7 μL;PowerTrack™ SYBR Green Master Mix 10 μL;上、下引物各1 μL;cDNA 1 μL)。反应程序:95 ℃预变性10 min,95 ℃变性10 s,60 ℃退火30 s,72 ℃延伸32 s,40个循环数。每个样品3个生物学重复。
表 1 ArARF基因RT-qPCR引物序列
Table 1. Primer sequences for RT-qPCR of ArARF
基因名称 正向引物 (5′→3′) 反向引物 (5′→3′) ArARF3 ATGAATGGAAGAAGCCTGAGATTGC GCTGACCTGCCTGCTCTGAAT ArARF4 GCATAGCAGTTCCACCAGAAGTAGG TCATCGCCAACCAGCATCATATCG ArARF10 ATGCTTGTGCTGGTGGAATGGT AGGCTTGTCTTGCGAGTCTGAG ArARF24 CTCCTCCTCCTCCTCCTCCTCATA CGGACACGCTTAGTCACGGTAG ArARF32 AAGCACGCAACCAACACAATTCTT AACAGAACTGAATCGCCAGCCTTA -
从表2可知:共鉴定到35个金线莲ArARF基因(ArARF1~ArARF35),ArARF蛋白可编码179~1 163个氨基酸,分子量为20.46~129.45 kDa。14个ArARF蛋白等电点为7~9,表明这些蛋白均为碱性蛋白,且均为亲水性蛋白,其余21个等电点为4~7。亚细胞定位预测表明:所有ArARF蛋白定位在细胞核中,这一核定位与其作为转录因子的功能相契合。作为转录因子,ArARF蛋白需在细胞核内与靶基因启动子等顺式作用元件结合,从而调控相关基因的转录表达,参与到生长素信号转导以及众多植物生长发育相关的调控过程中。值得注意的是,只有ArARF33同时定位在细胞核和叶绿体中。
表 2 ArARF蛋白理化特性
Table 2. Protein physiochemical properties of ArARF
基因 氨基酸数/个 分子量/kDa 等电点 脂溶指数 亲水系数 保守结构域 ArARF1 729 79.59 8.56 65.62 −0.568 B3、PHA03247 ArARF2 662 73.29 5.68 71.31 −0.457 B3、Auxin_resp、Aux_IAA ArARF3 650 73.53 6.00 74.66 −0.506 B3、Auxin_resp、Aux_IAA ArARF4 649 73.21 6.34 75.07 −0.480 B3、Auxin_resp、Aux_IAA ArARF5 857 94.90 6.29 69.61 −0.490 B3、Auxin_resp、Aux_IAA ArARF6 844 94.23 5.98 65.94 −0.541 B3、Auxin_resp、Aux_IAA ArARF7 833 92.79 6.50 73.93 −0.481 B3、Auxin_resp、Aux_IAA ArARF8 695 77.09 6.28 76.13 −0.371 B3、Auxin_resp ArARF9 726 79.39 6.20 77.59 −0.343 B3、Auxin_resp ArARF10 714 79.10 6.85 69.92 −0.436 B3、Auxin_resp ArARF11 658 73.71 6.86 75.71 −0.397 B3、Auxin_resp ArARF12 538 58.99 6.55 80.24 −0.129 B3、Auxin_resp ArARF13 300 33.26 8.19 68.33 −0.284 B3 ArARF14 399 44.20 6.86 74.34 −0.245 B3、Auxin_resp ArARF15 403 44.79 8.05 73.90 −0.321 B3、Auxin_resp ArARF16 450 49.64 8.51 70.93 −0.311 B3、Auxin_resp ArARF17 479 53.89 9.45 72.28 −0.392 B3、Auxin_resp ArARF18 293 33.22 8.98 73.65 −0.377 B3 ArARF19 179 20.46 5.38 106.26 0.084 B3 ArARF20 244 27.24 8.83 58.89 −0.572 B3 ArARF21 913 100.66 7.19 71.61 −0.554 B3、zf-CW ArARF22 881 97.21 8.10 63.47 −0.646 B3、zf-CW ArARF23 315 35.01 5.96 69.71 −0.423 B3、AP2 ArARF24 374 41.07 7.76 63.18 −0.558 B3 ArARF25 342 37.17 9.48 79.27 −0.382 B3、AP2 ArARF26 349 38.71 8.35 57.88 −0.674 B3 ArARF27 334 36.29 9.60 69.85 −0.420 B3、AP2 ArARF28 226 25.62 4.93 94.96 −0.127 B3 ArARF29 906 100.84 5.84 79.72 −0.446 B3、Auxin_resp、Aux_IAA ArARF30 802 90.26 6.03 74.01 −0.495 B3、Auxin_resp ArARF31 796 89.47 5.62 75.80 −0.430 B3、Auxin_resp、Aux_IAA ArARF32 1082 121.92 5.79 80.73 −0.379 B3、Auxin_resp、Aux_IAA ArARF33 217 25.14 9.98 77.33 −0.841 RRM_NIFK、PABP- 1234 ArARF34 1053 118.67 5.88 77.43 −0.480 B3、Auxin_resp、Aux_IAA ArARF35 1163 129.45 6.33 77.76 −0.528 B3、Auxin_resp、Aux_IAA -
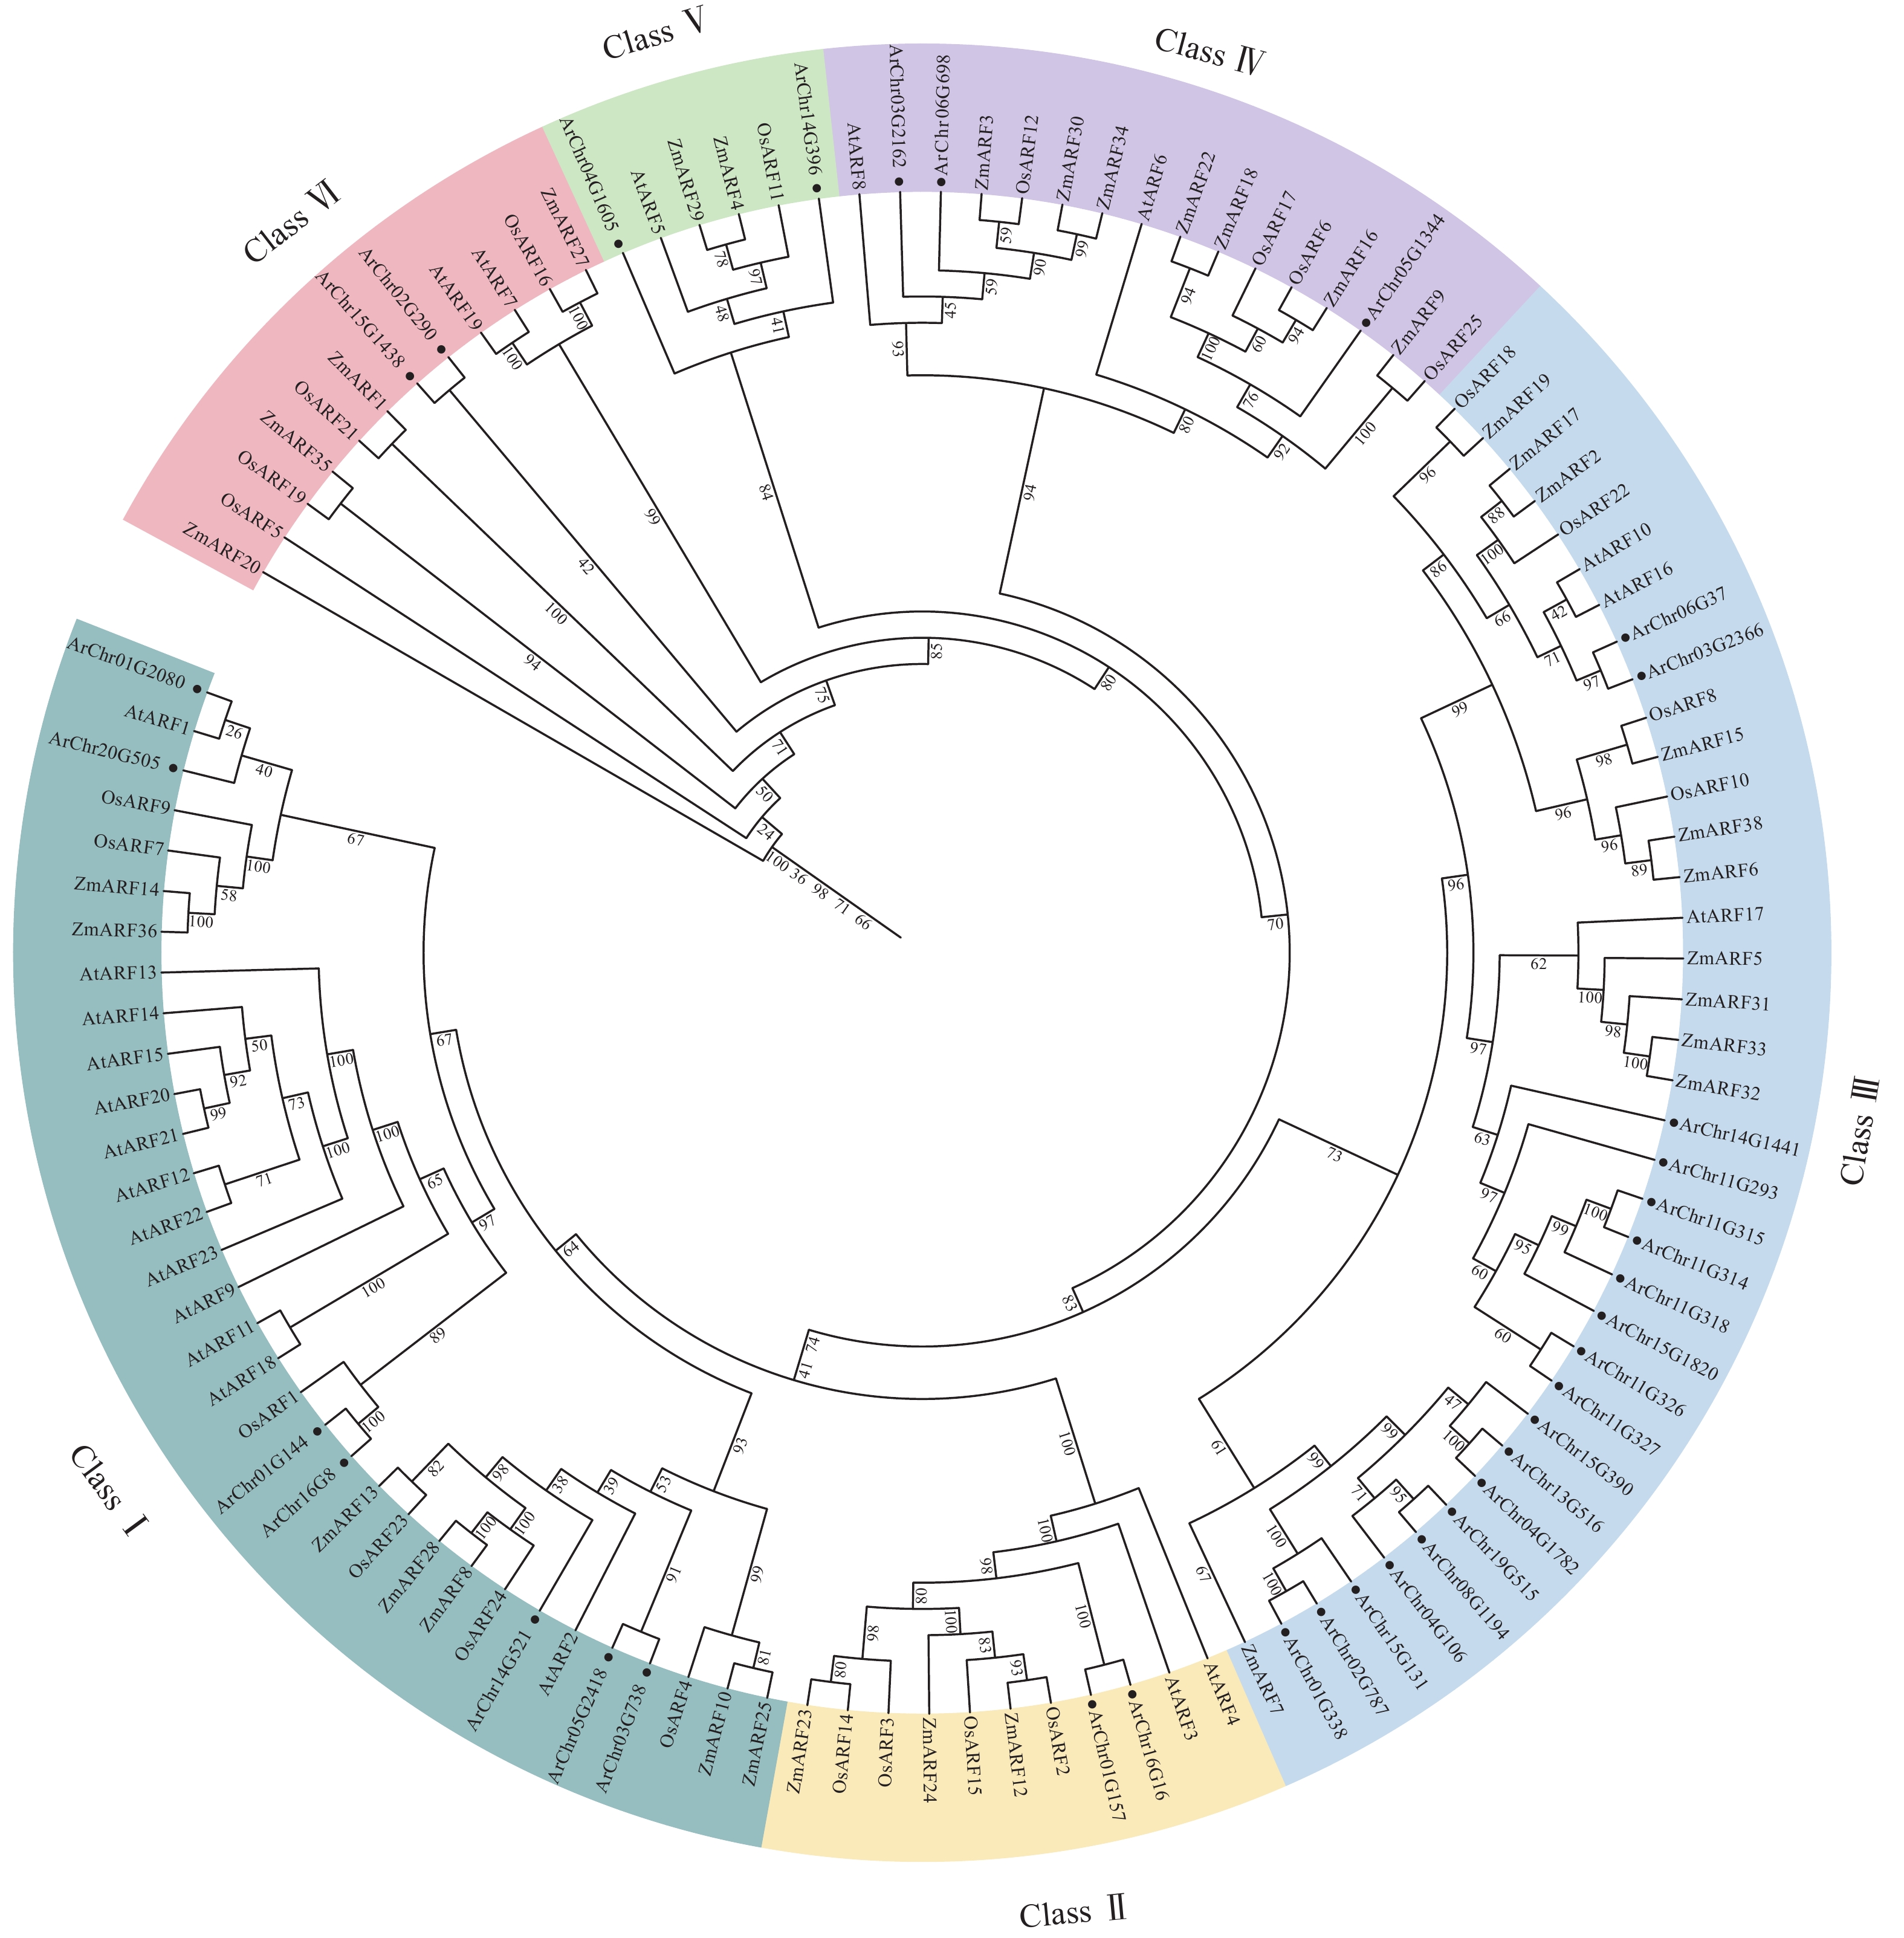
为了进一步研究ArARF的进化关系,将金线莲与拟南芥AtARF、玉米ZmARF、水稻OsARF基因共同构建系统进化树,并根据拟南芥AtARF基因家族的分类方法将其分为6个分支(图1)。其中,Class Ⅰ包含7个ArARF基因,Class Ⅱ包含2个,Class Ⅲ包含19个,Class Ⅳ包含3个,Class Ⅴ包含2个,Class Ⅵ包含2个。系统发育分析发现:金线莲中多个ArARF家族成员和拟南芥的同源基因进化距离相对较近,表明ARF家族在这2个物种中的功能可能具有一定的保守性。在Class Ⅲ亚族中,存在1个分支包含ArARF12~ArARF19,而Class Ⅵ亚族中的ArARF34、ArARF35未发现高度同源序列,推测上述基因可能在物种分化中具有重要作用。
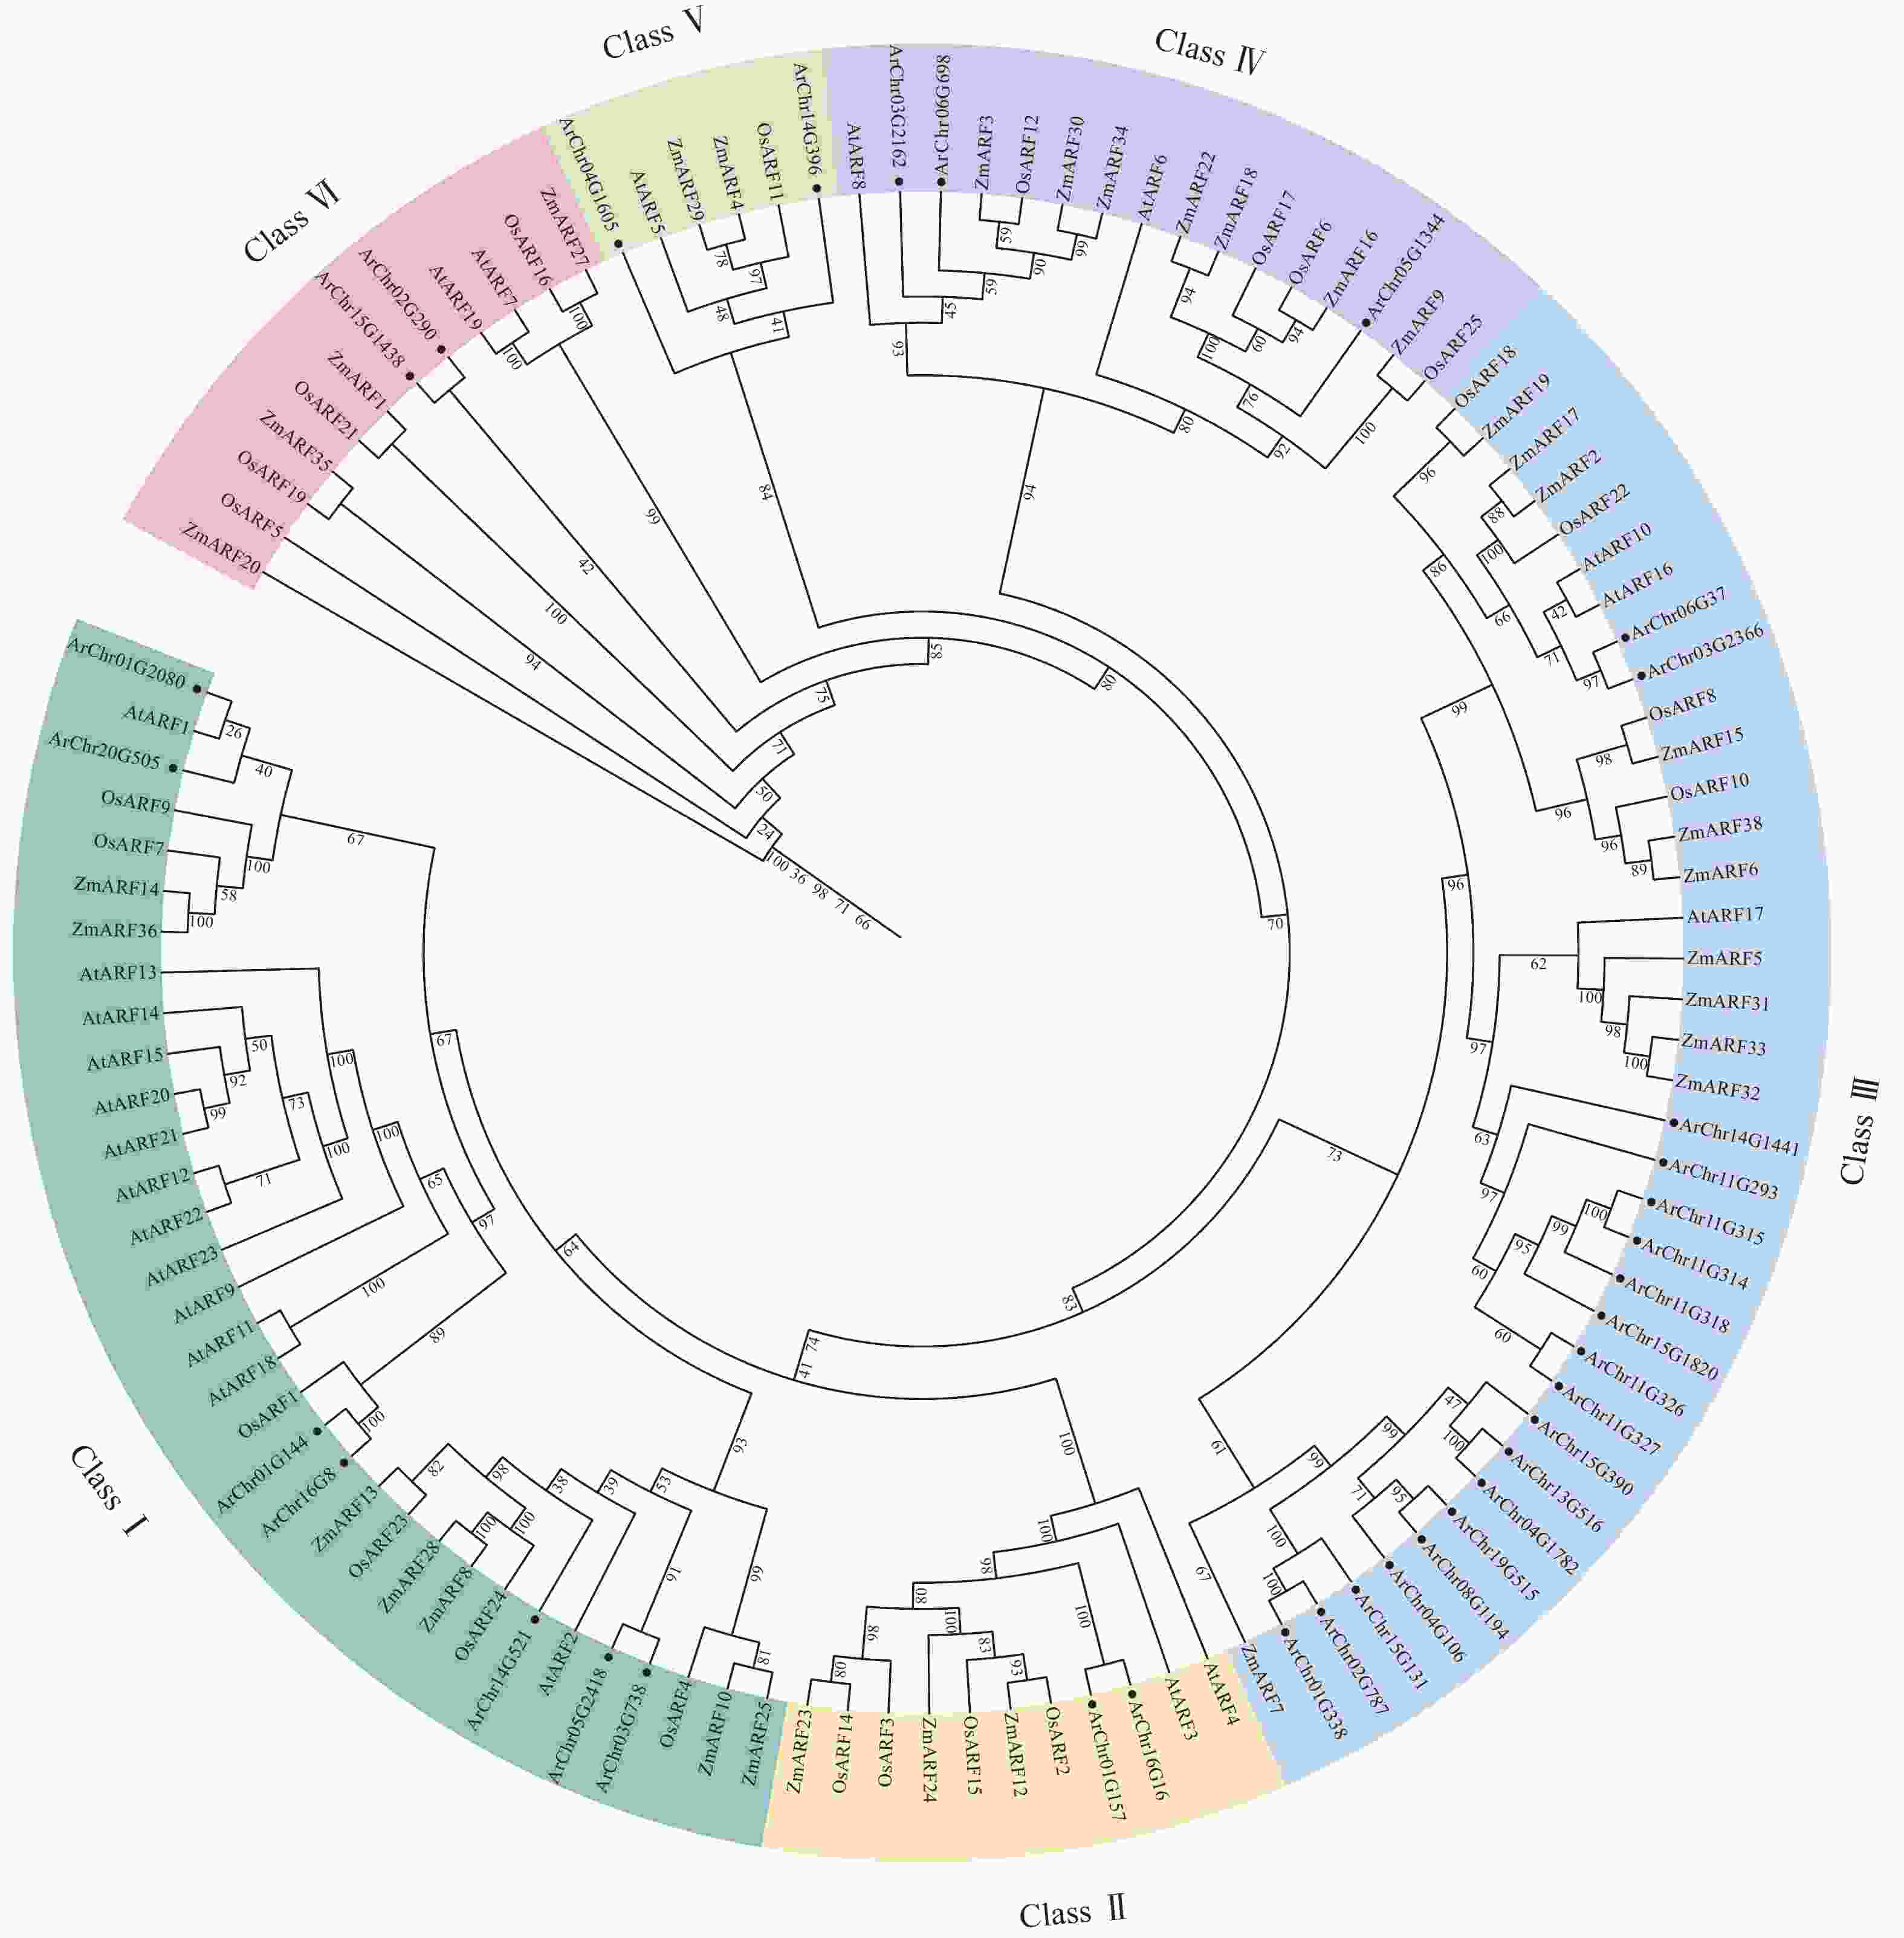
图 1 金线莲ArARF蛋白家族系统进化树
Figure 1. Phylogenetic tree of ArARF protein family in A. roxburghii
-
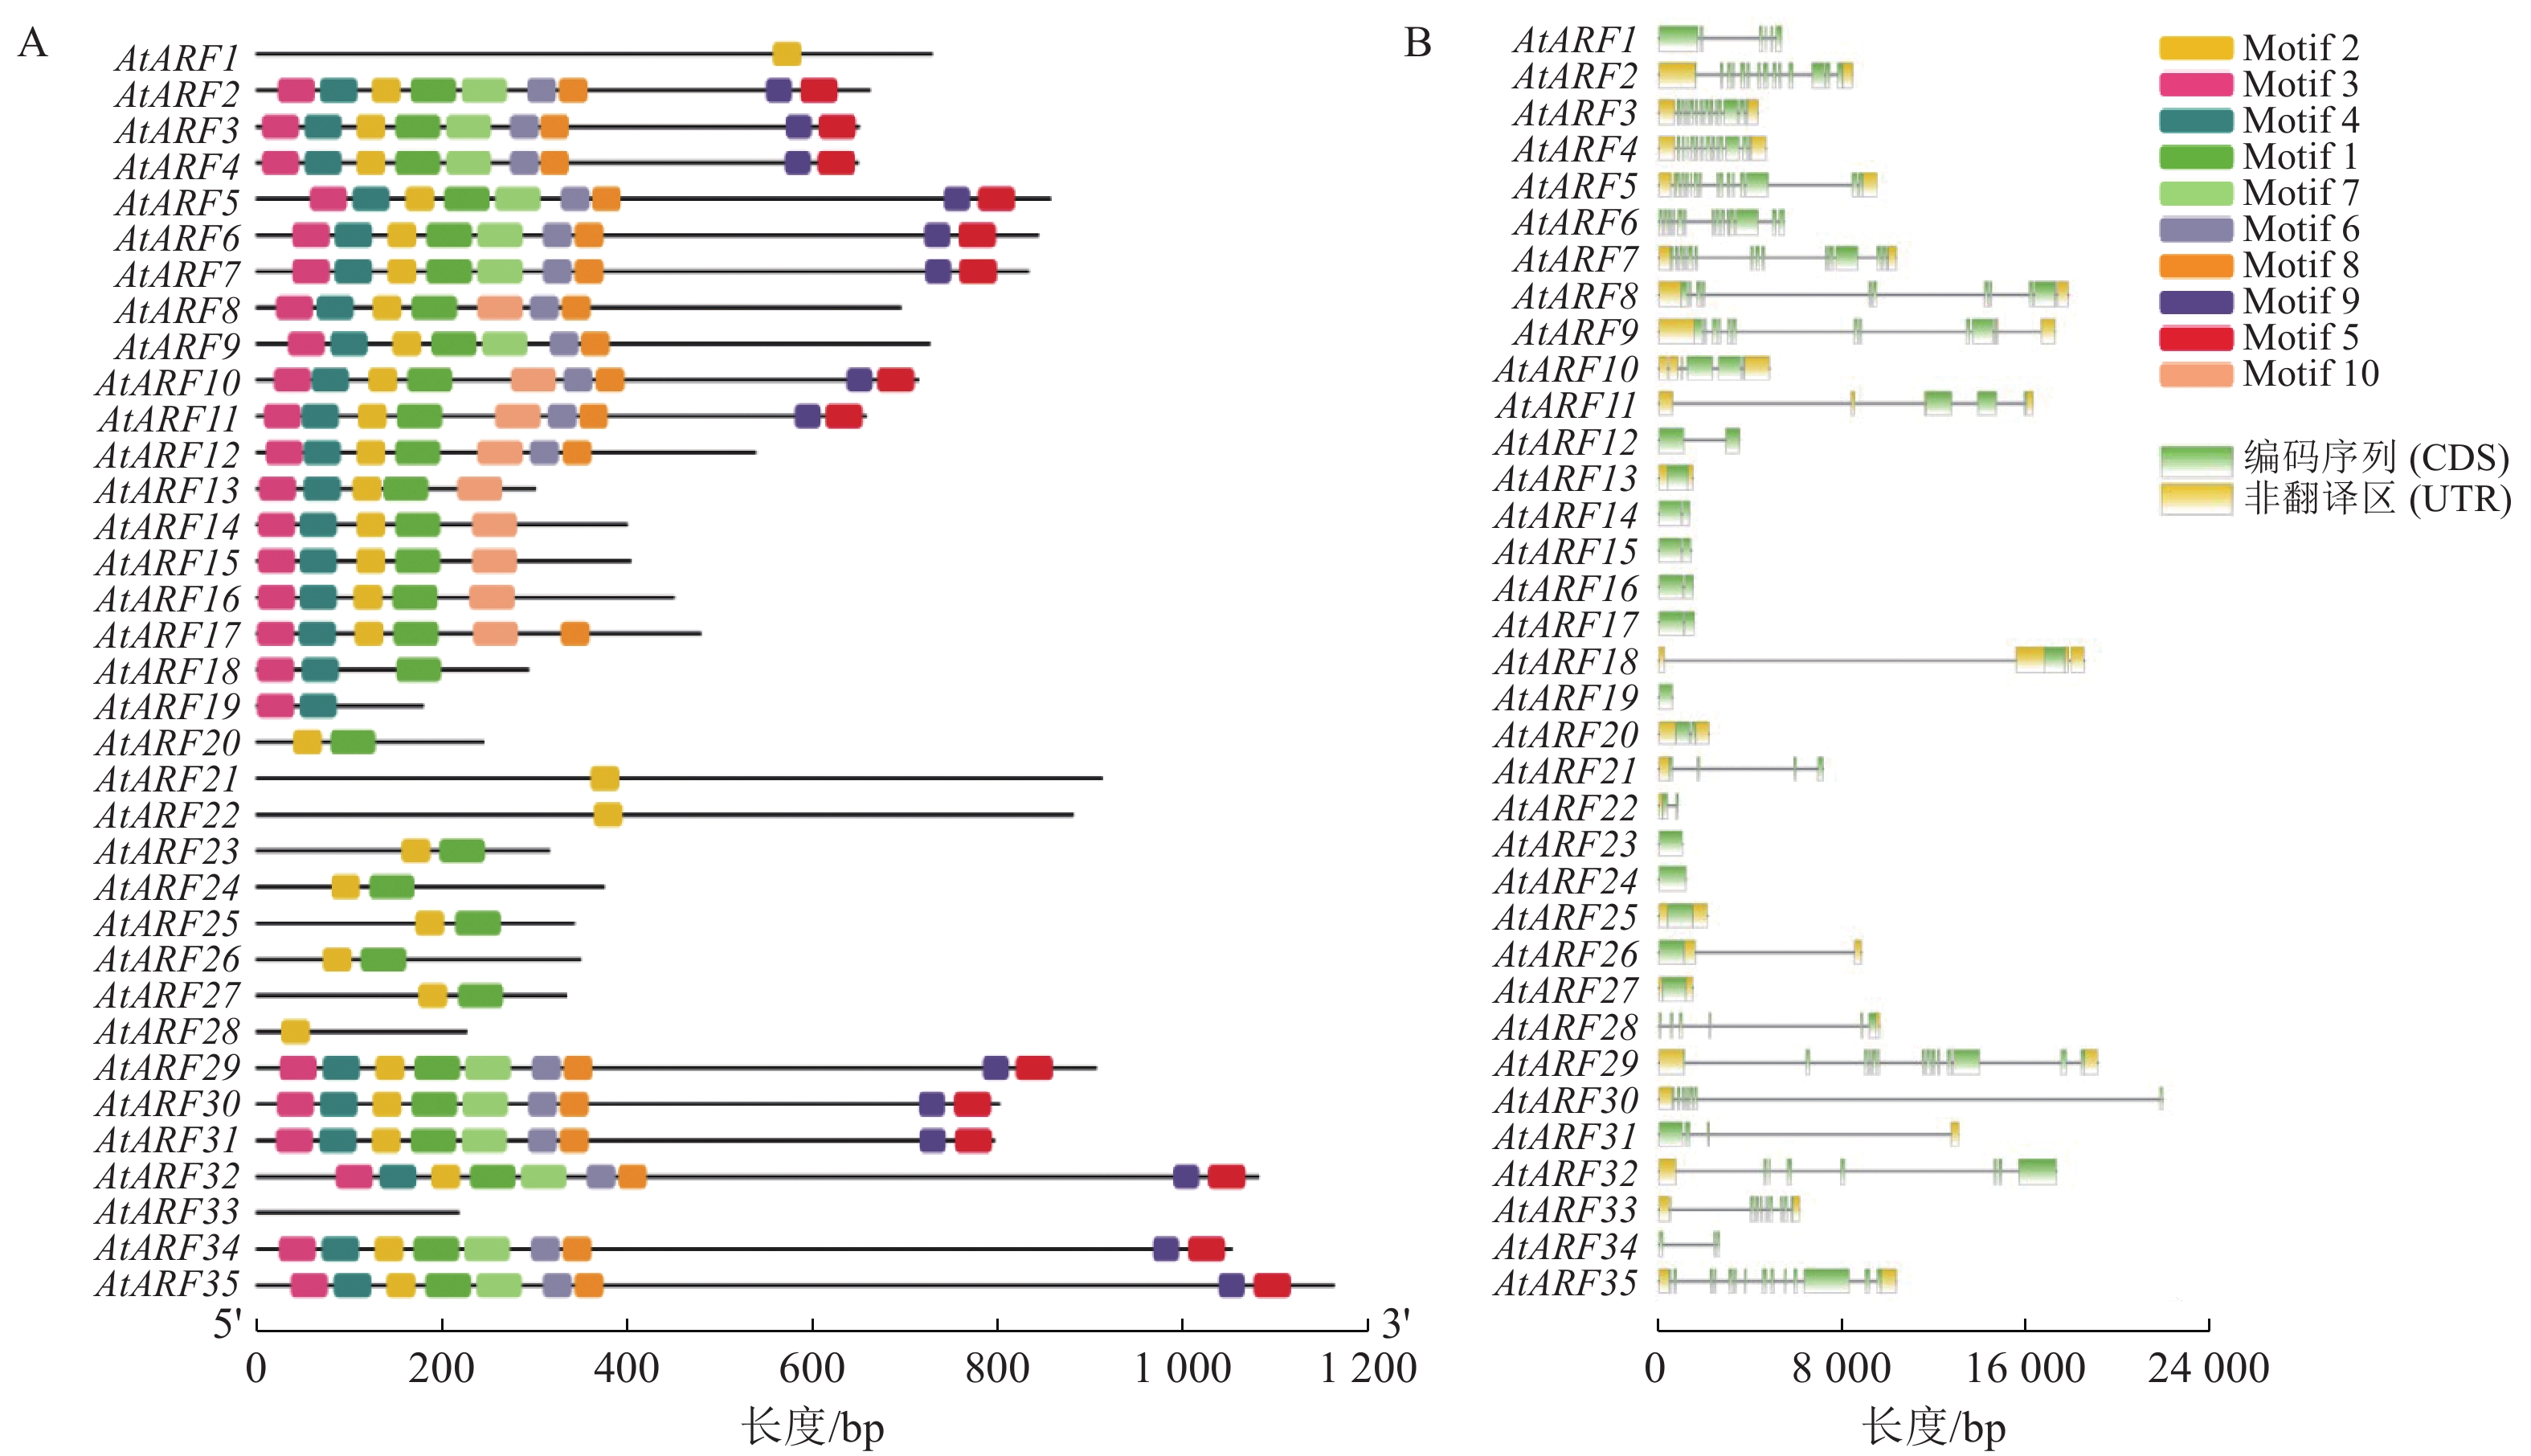
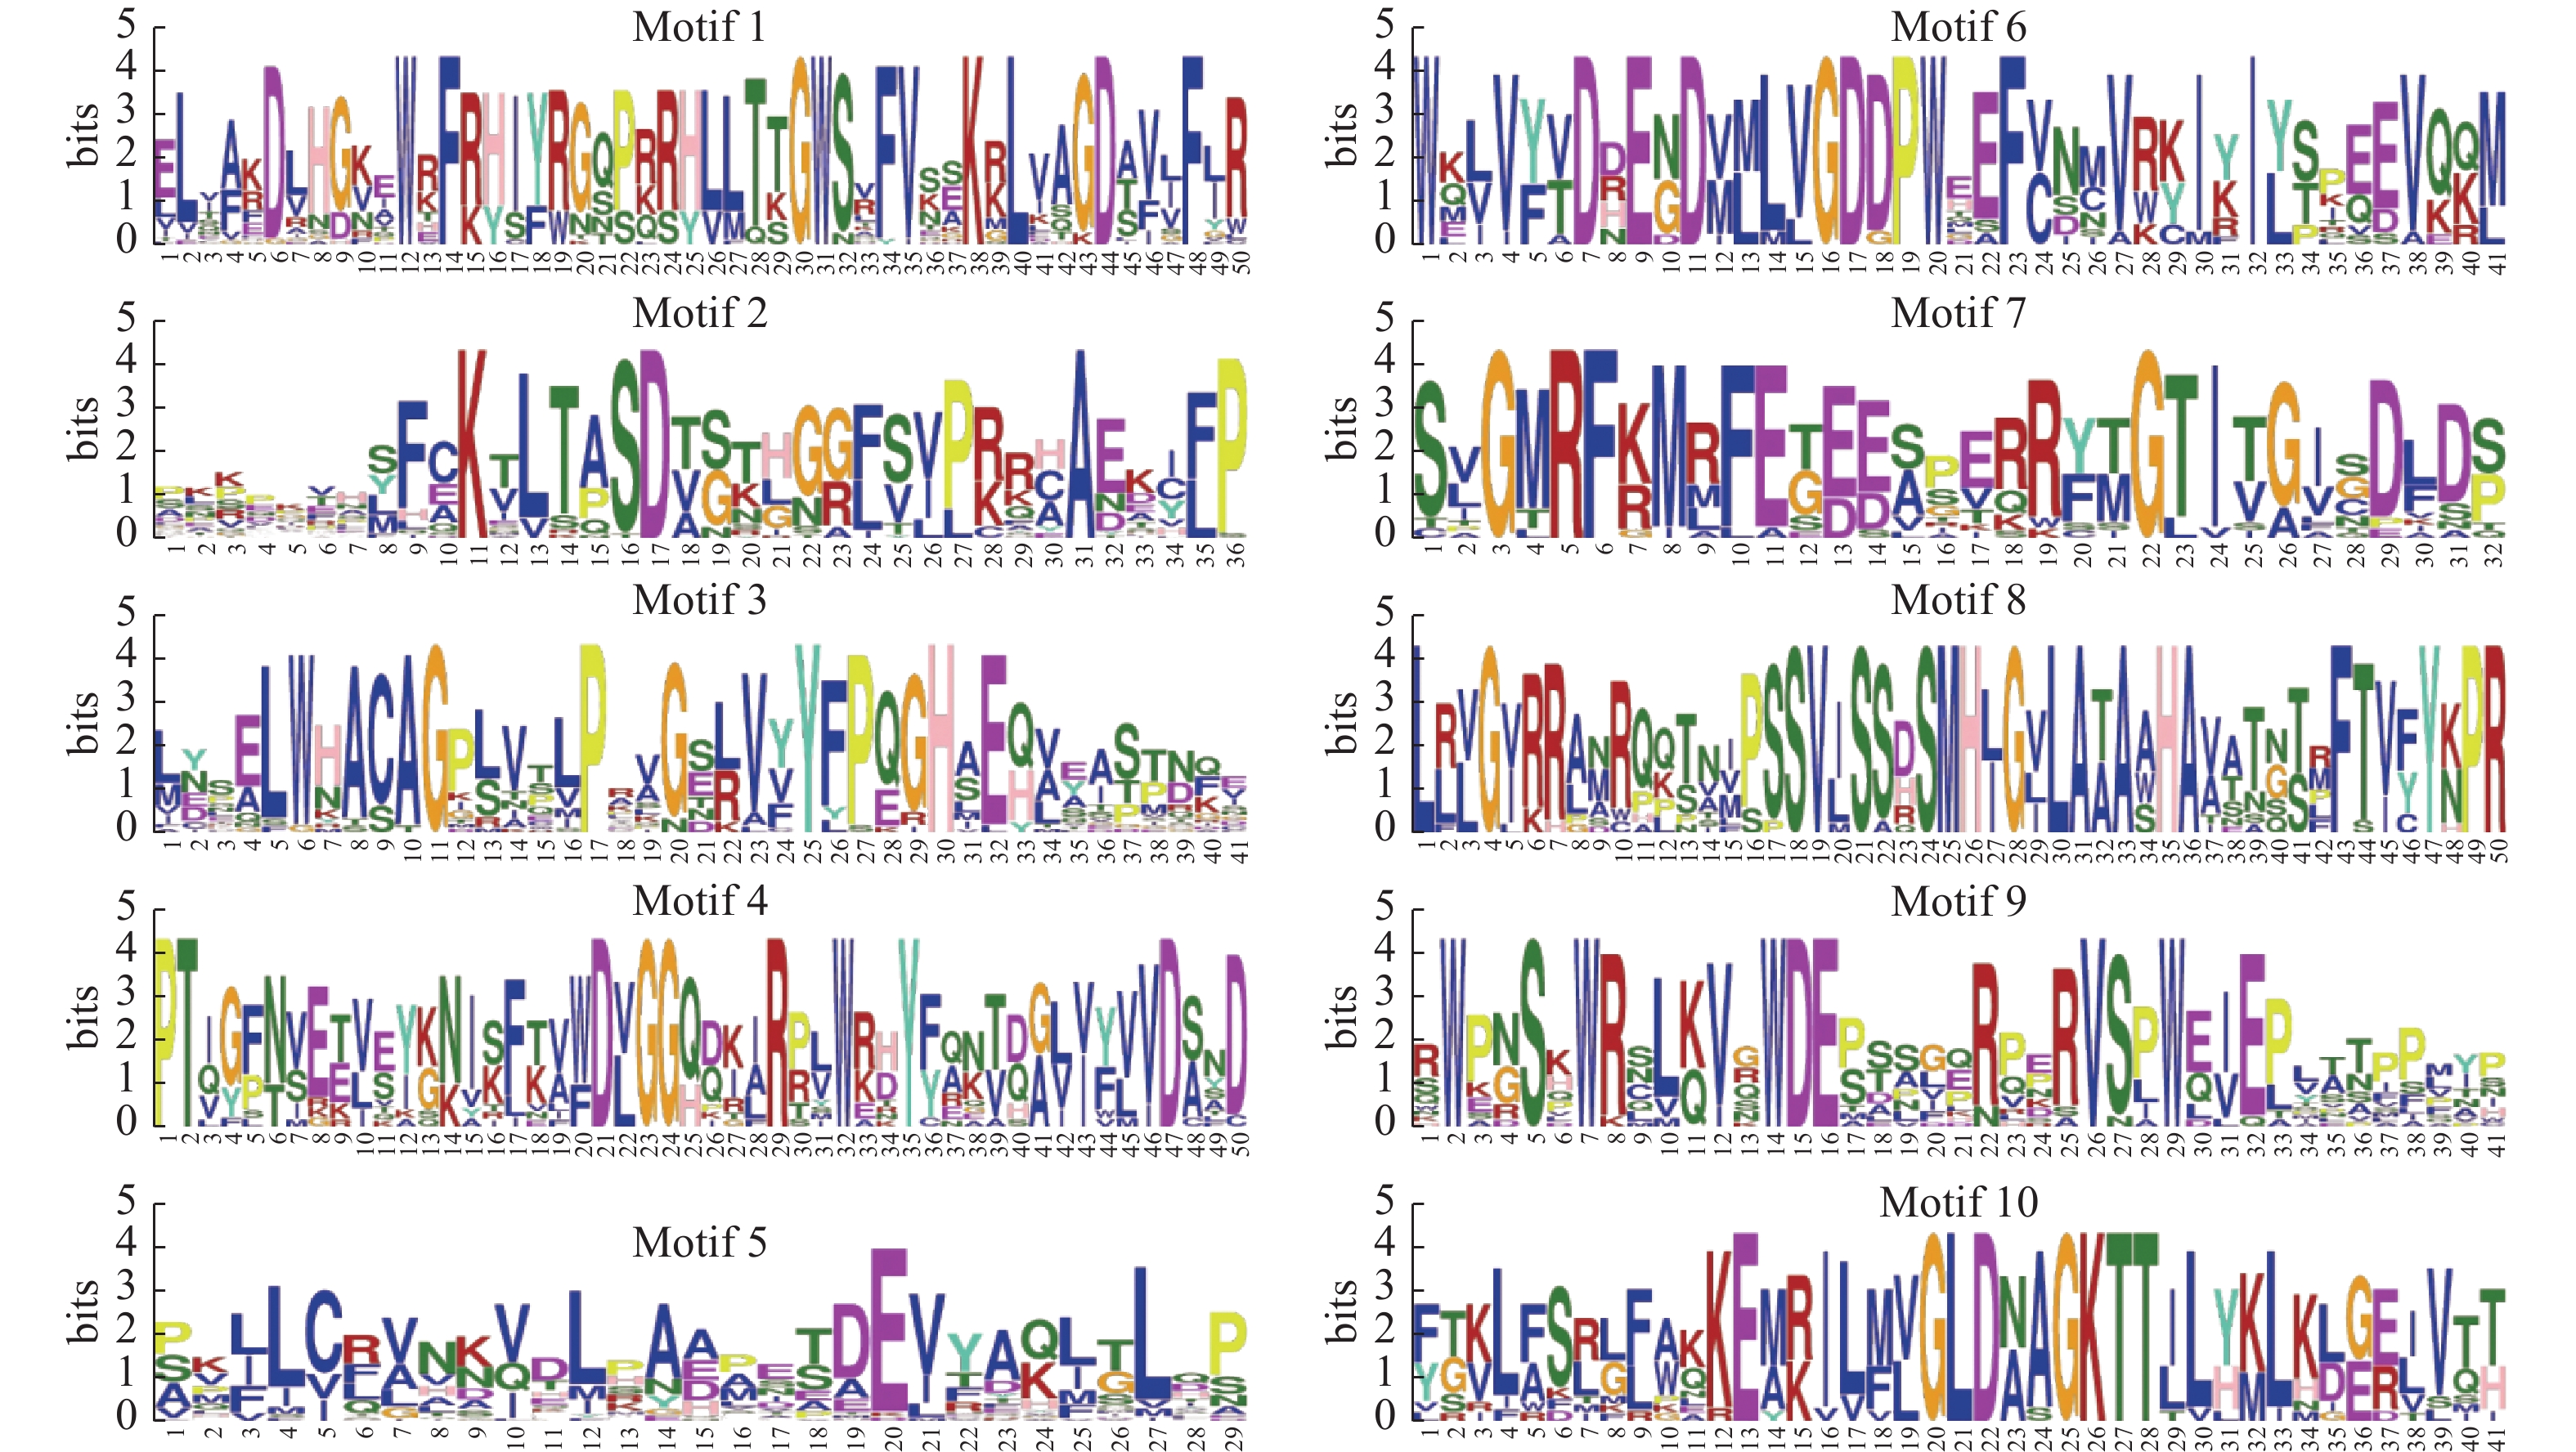
为全面解析ArARF蛋白的结构特征和家族成员蛋白氨基酸序列的保守基序,利用MEME软件分析35个ArARF基因家族成员,最大Motif检测数设置为10 (图2和图3)。由图2A可知:ArARF家族成员含有1~9个数量不等的基序,14个ArARF蛋白(ArARF2、ArARF3、ArARF4、ArARF5、ArARF6、ArARF7、ArARF10、ArARF11、ArARF29、ArARF30、ArARF31、ArARF32、ArARF34和ArARF35)都拥有9个相同的基序,即Motif 1~Motif 9,且ArARF2~ArARF7属于同一亚族,ArARF10、ArARF11属于同一亚族,ArARF29~ArARF32属于同一亚族,ArARF34、ArARF35属于同一亚族,表明这14个ArARFs存在相似的分子功能。所有ArARF蛋白均含有B3结构域(Motif 1/Motif 3/Motif 6和Motif 8),说明这4个基序在ArARF蛋白序列中分布最广、保守程度最高,也佐证了筛选出的ArARF转录因子属于ARF基因家族成员。同时Motif 2在除ArARF33外的基因中均有分布,表明这个基序可能在ArARF基因核心功能的实现中发挥关键作用。ArARF33未检测出保守基序,这一现象可能是该基因在进化过程中发生了基序丢失,或其功能结构域与家族中其他成员存在明显差异,导致未被现有Motif预测方法捕获。从功能角度推测,此类不含保守Motif的ArARF可能在金线莲生长发育(如类原球茎形成或分化)中承担特殊调控角色。
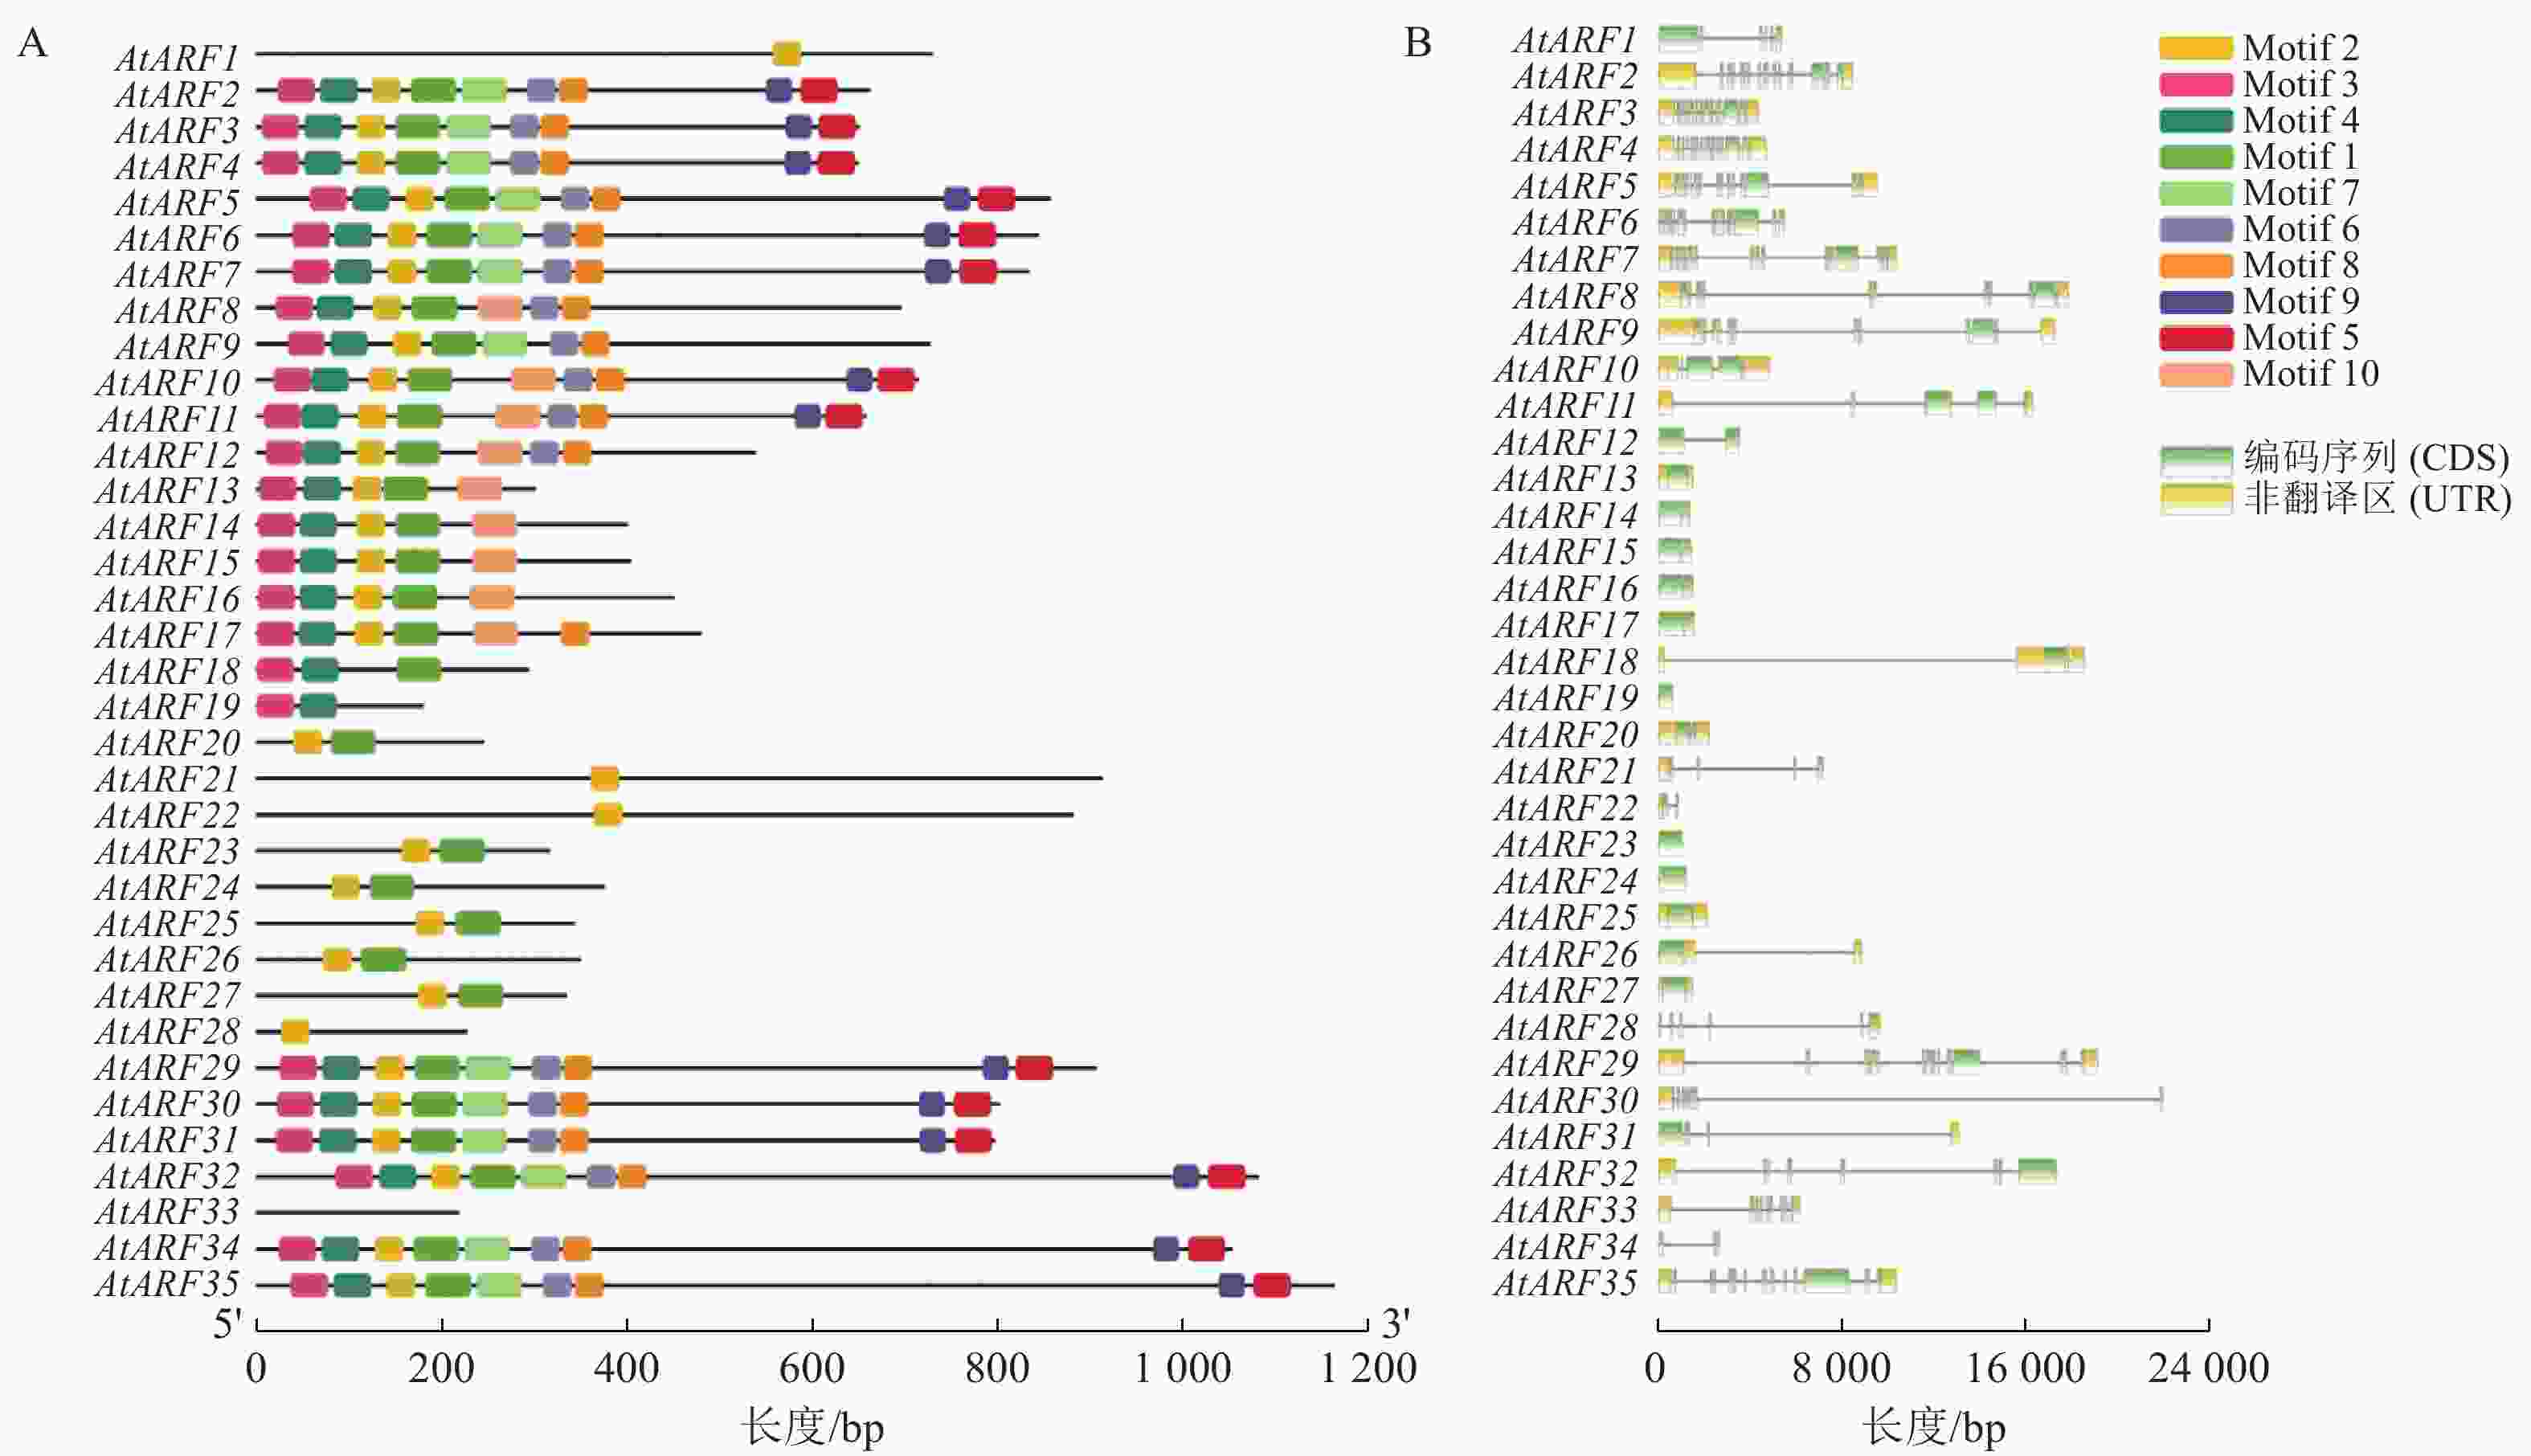
图 2 金线莲ArARF蛋白保守基序的分布(A)和基因结构(B)
Figure 2. Conserved motif distribution (A) and gene structures (B) of ArARF proteins in A. roxburghii
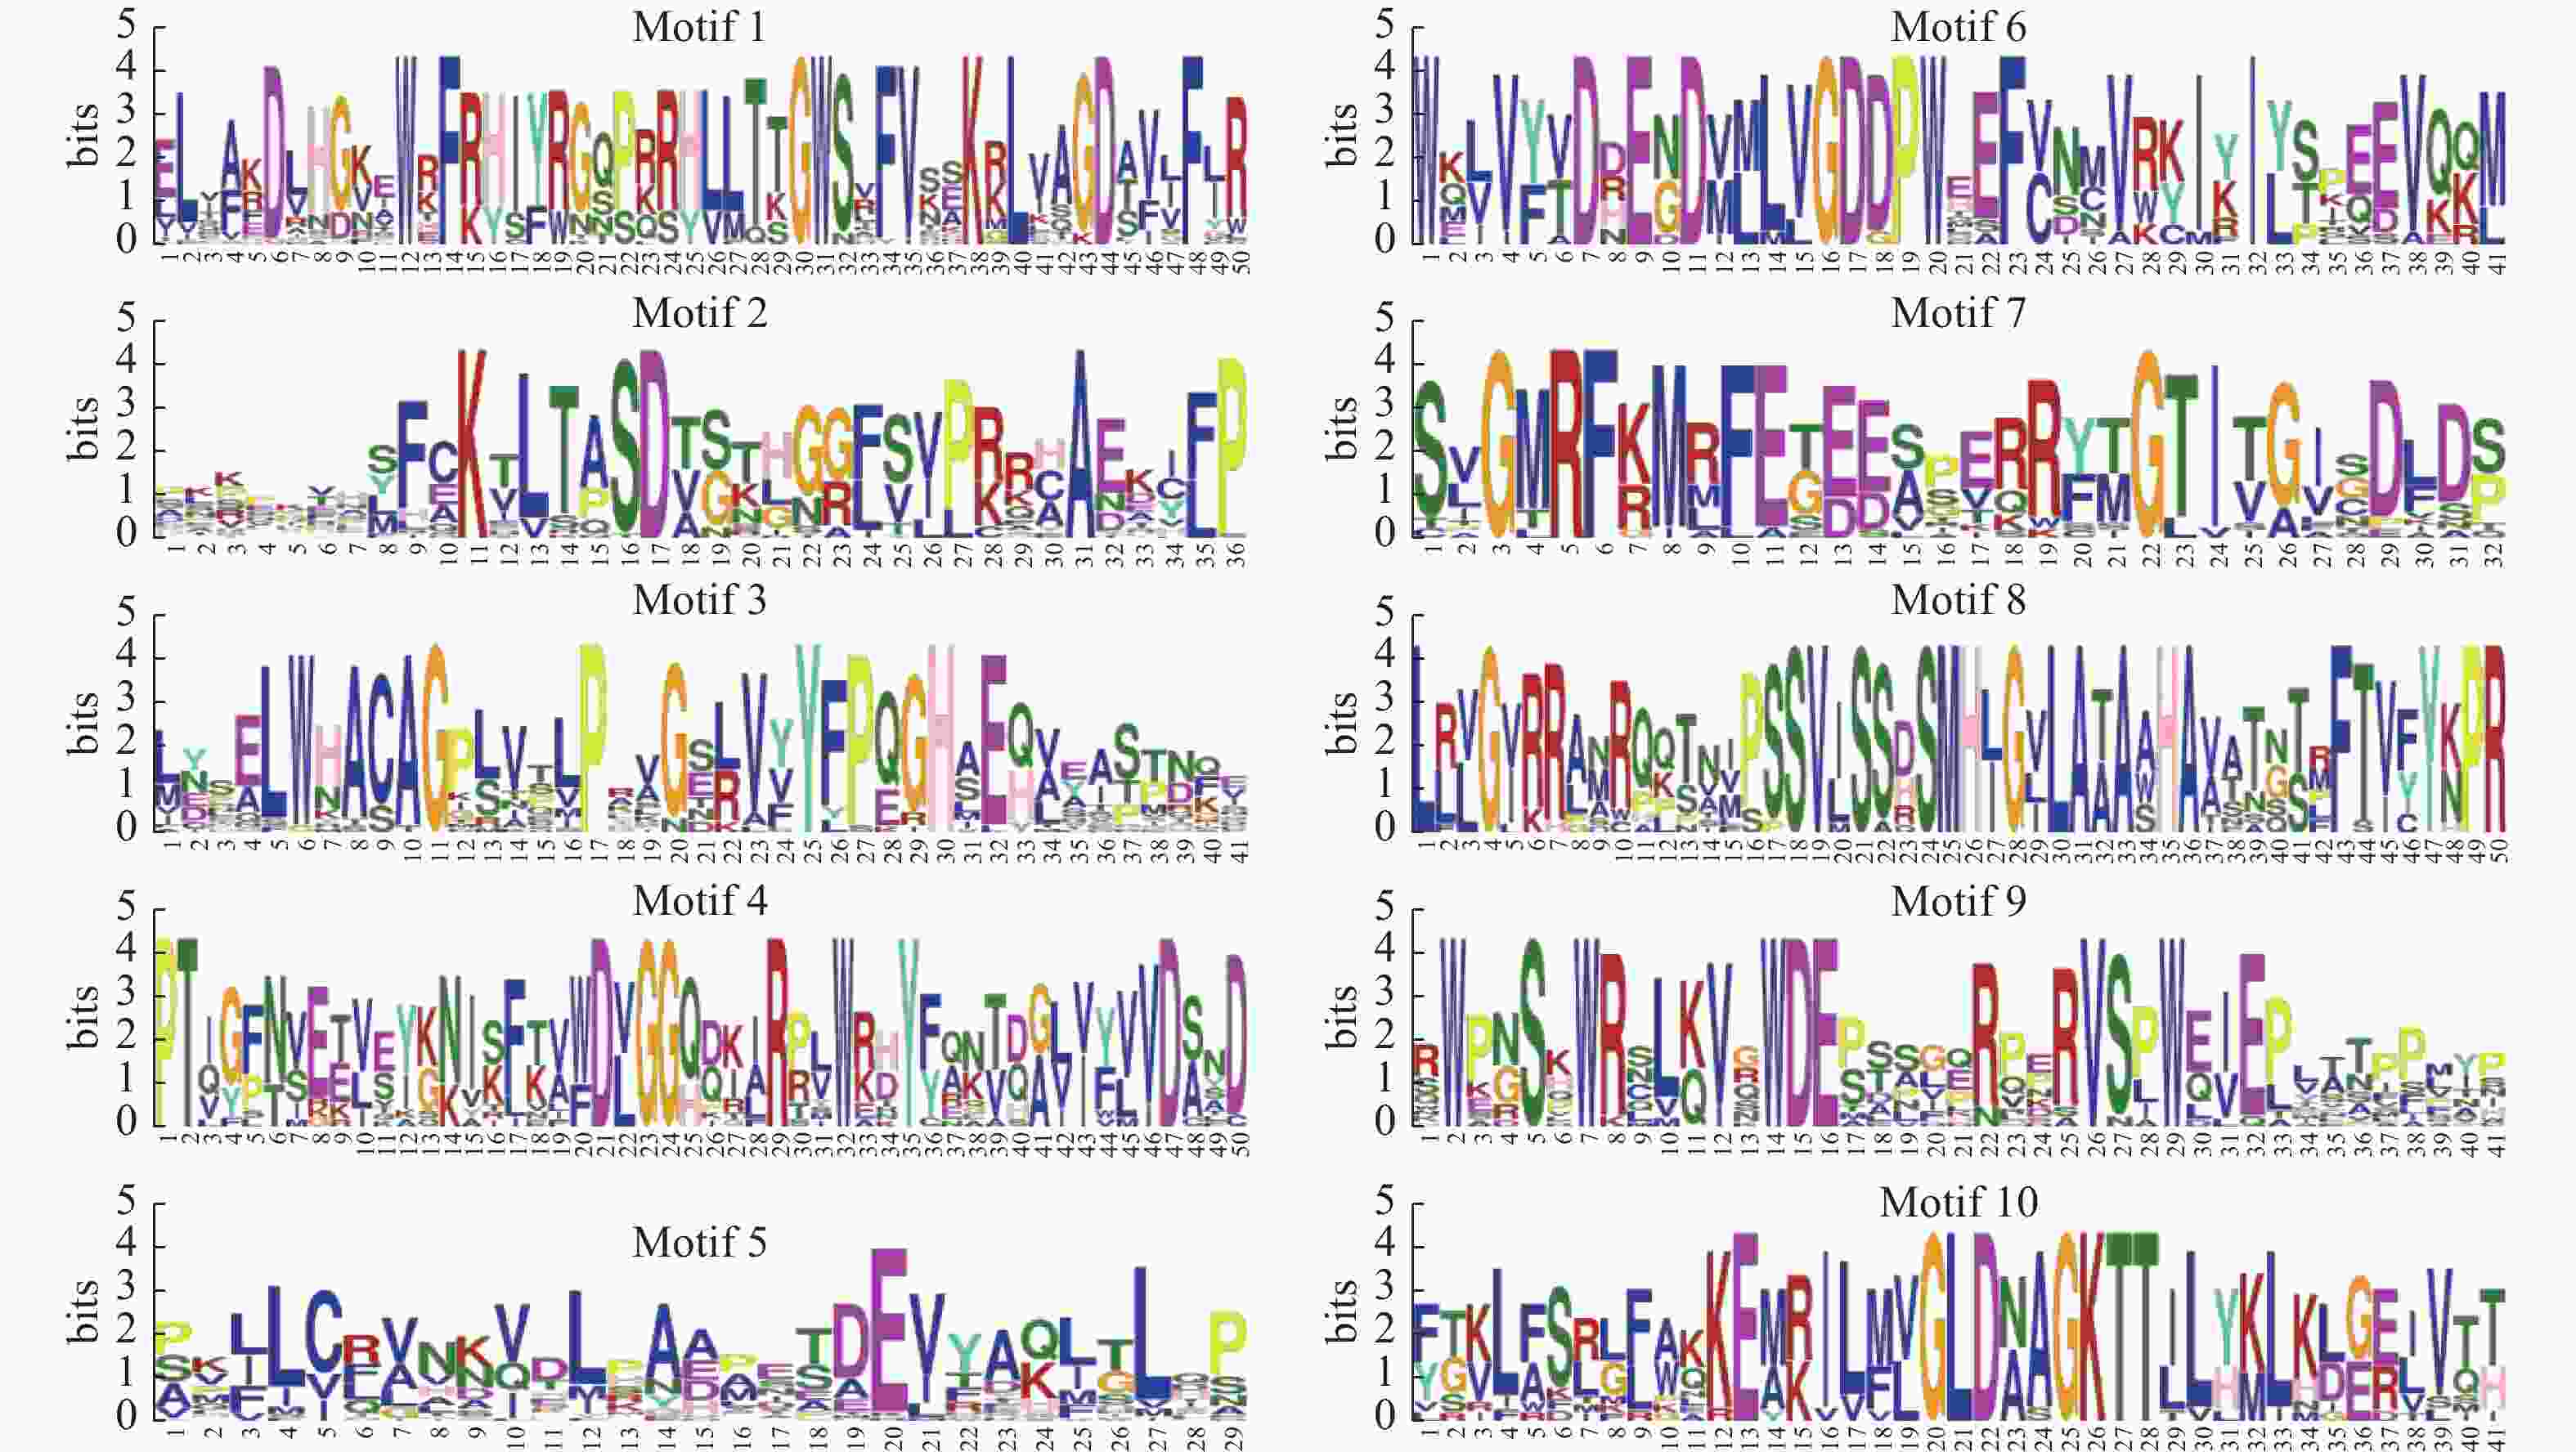
图 3 金线莲ArARF家族Motif分析
Figure 3. Motifs of the ArARF gene family in A. roxburghii
进一步对ArARF家族成员的基因结构(图2B)进行分析发现:所有基因都包含编码序列(CDS)和非翻译区(UTR)。外显子-内含子排列规则,表明这些基因的转录调控可能较为精细,功能更保守。
-
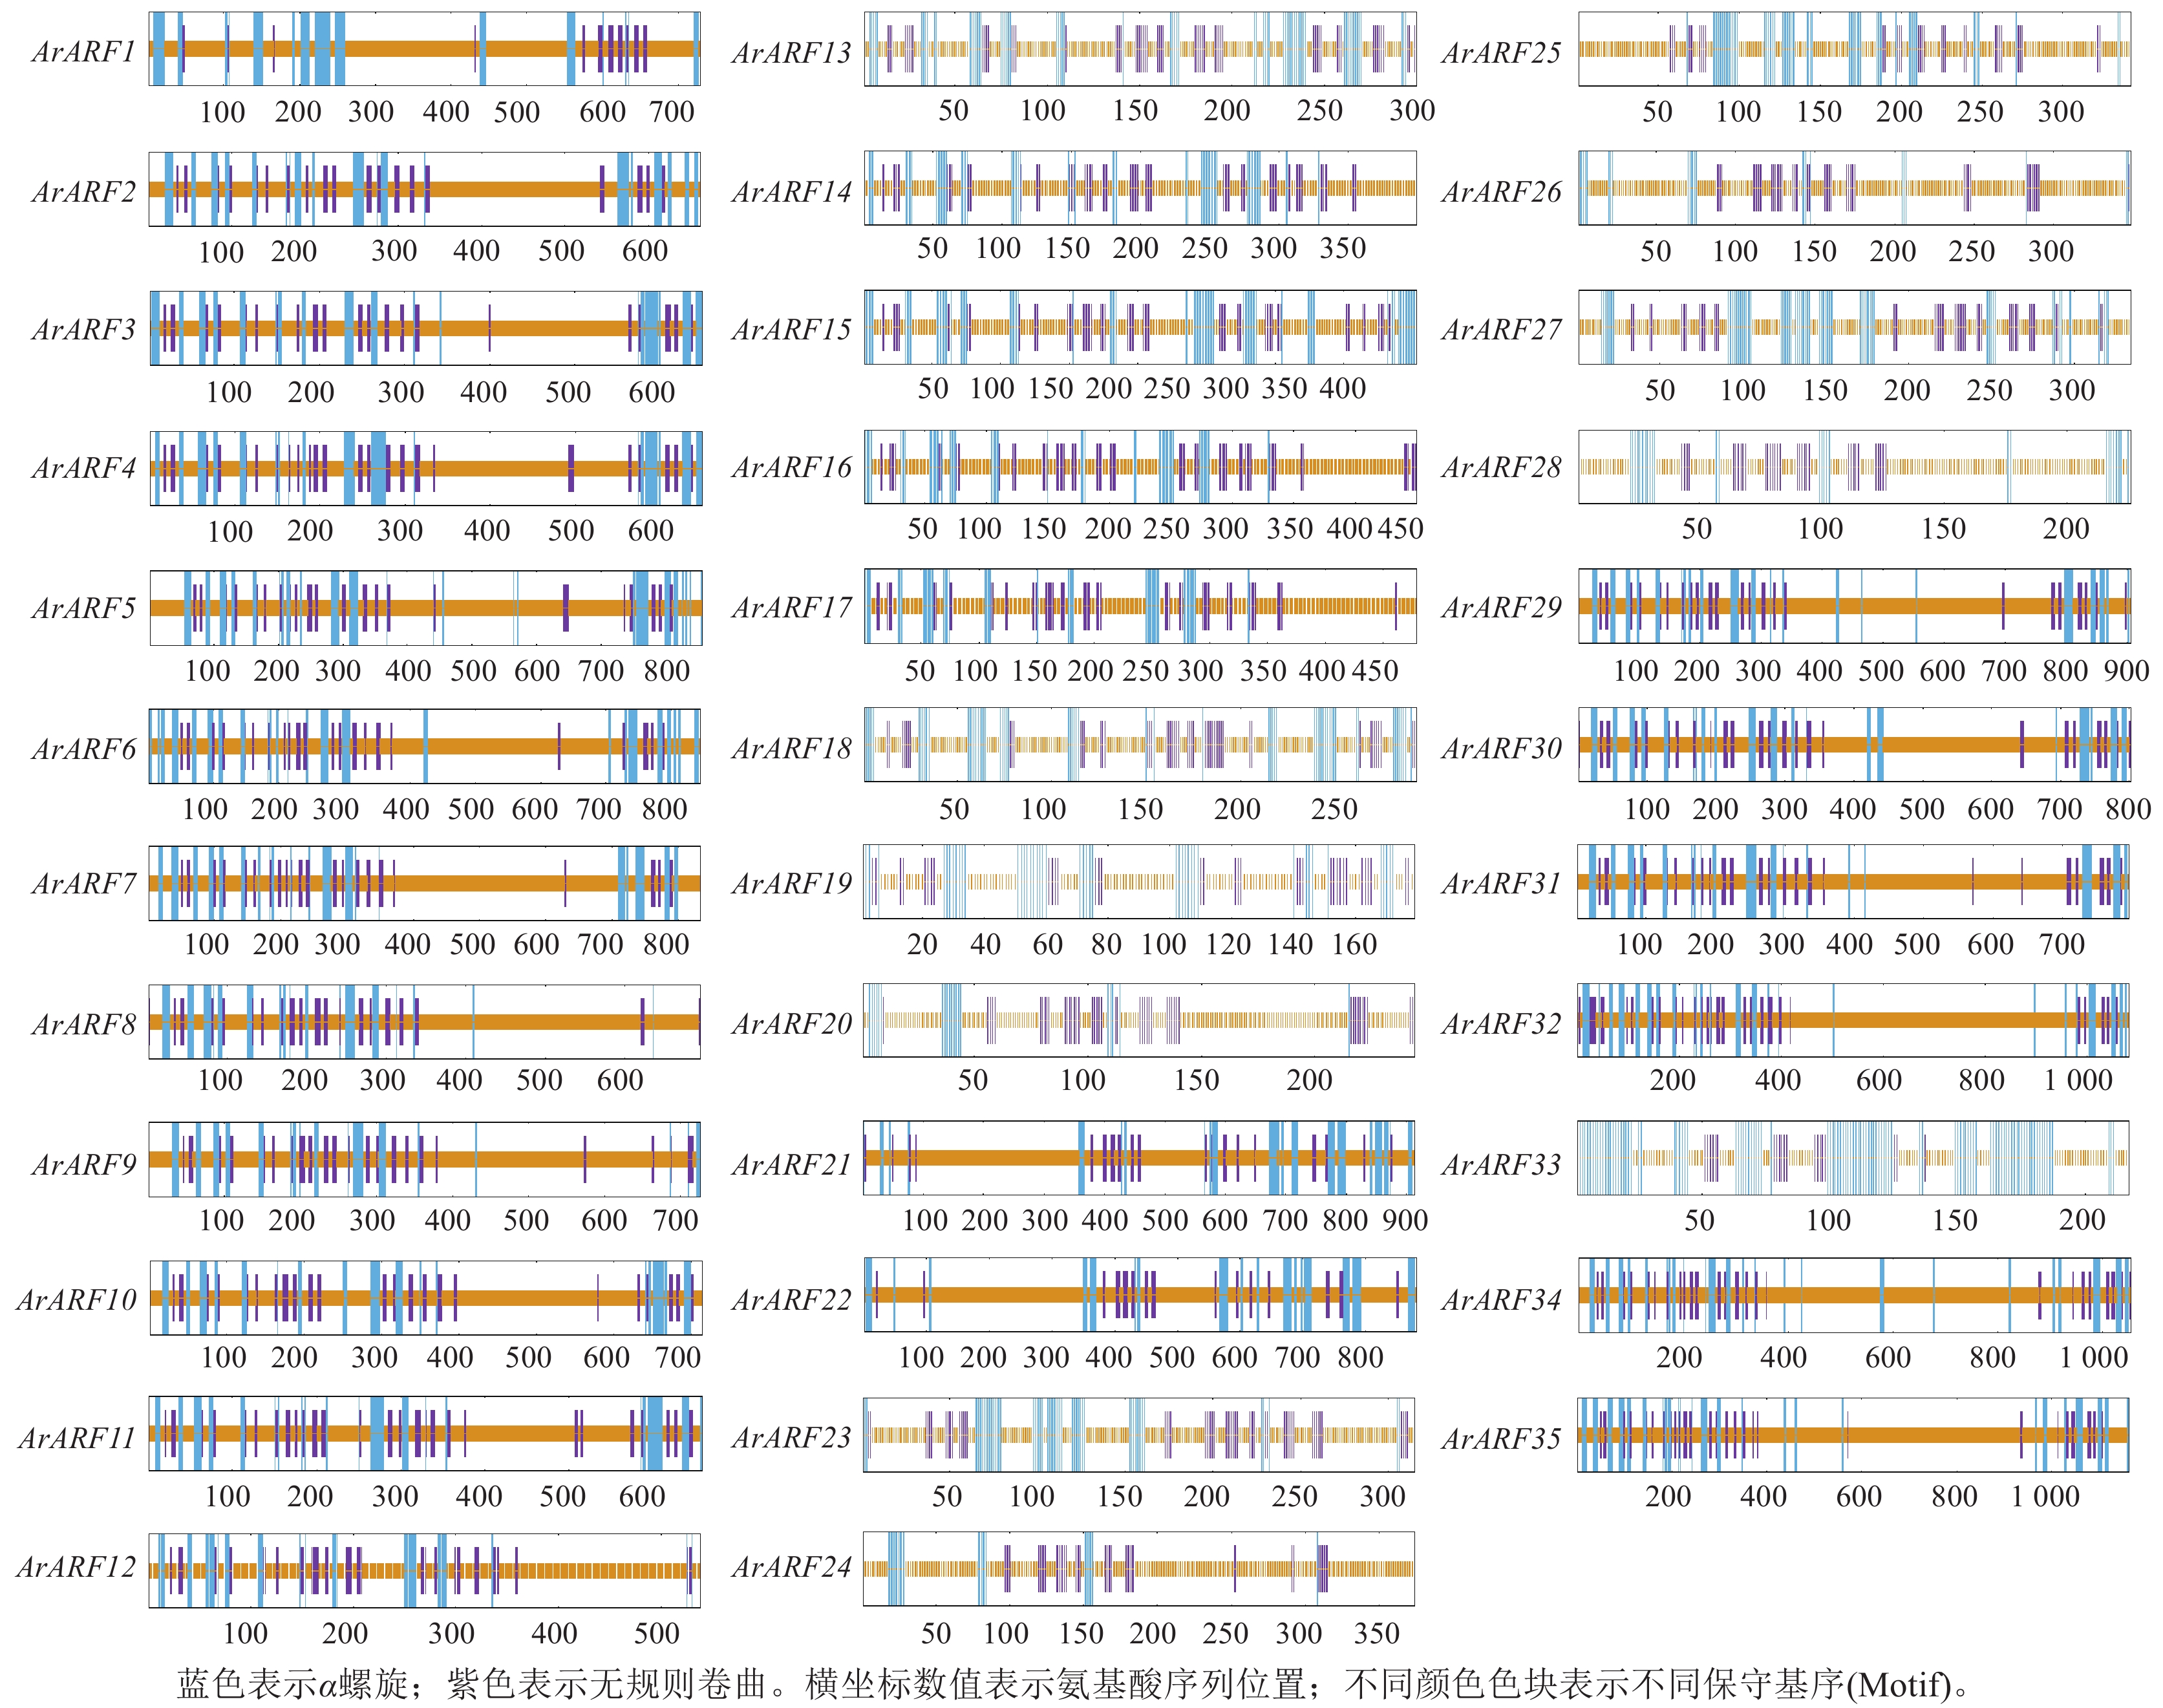
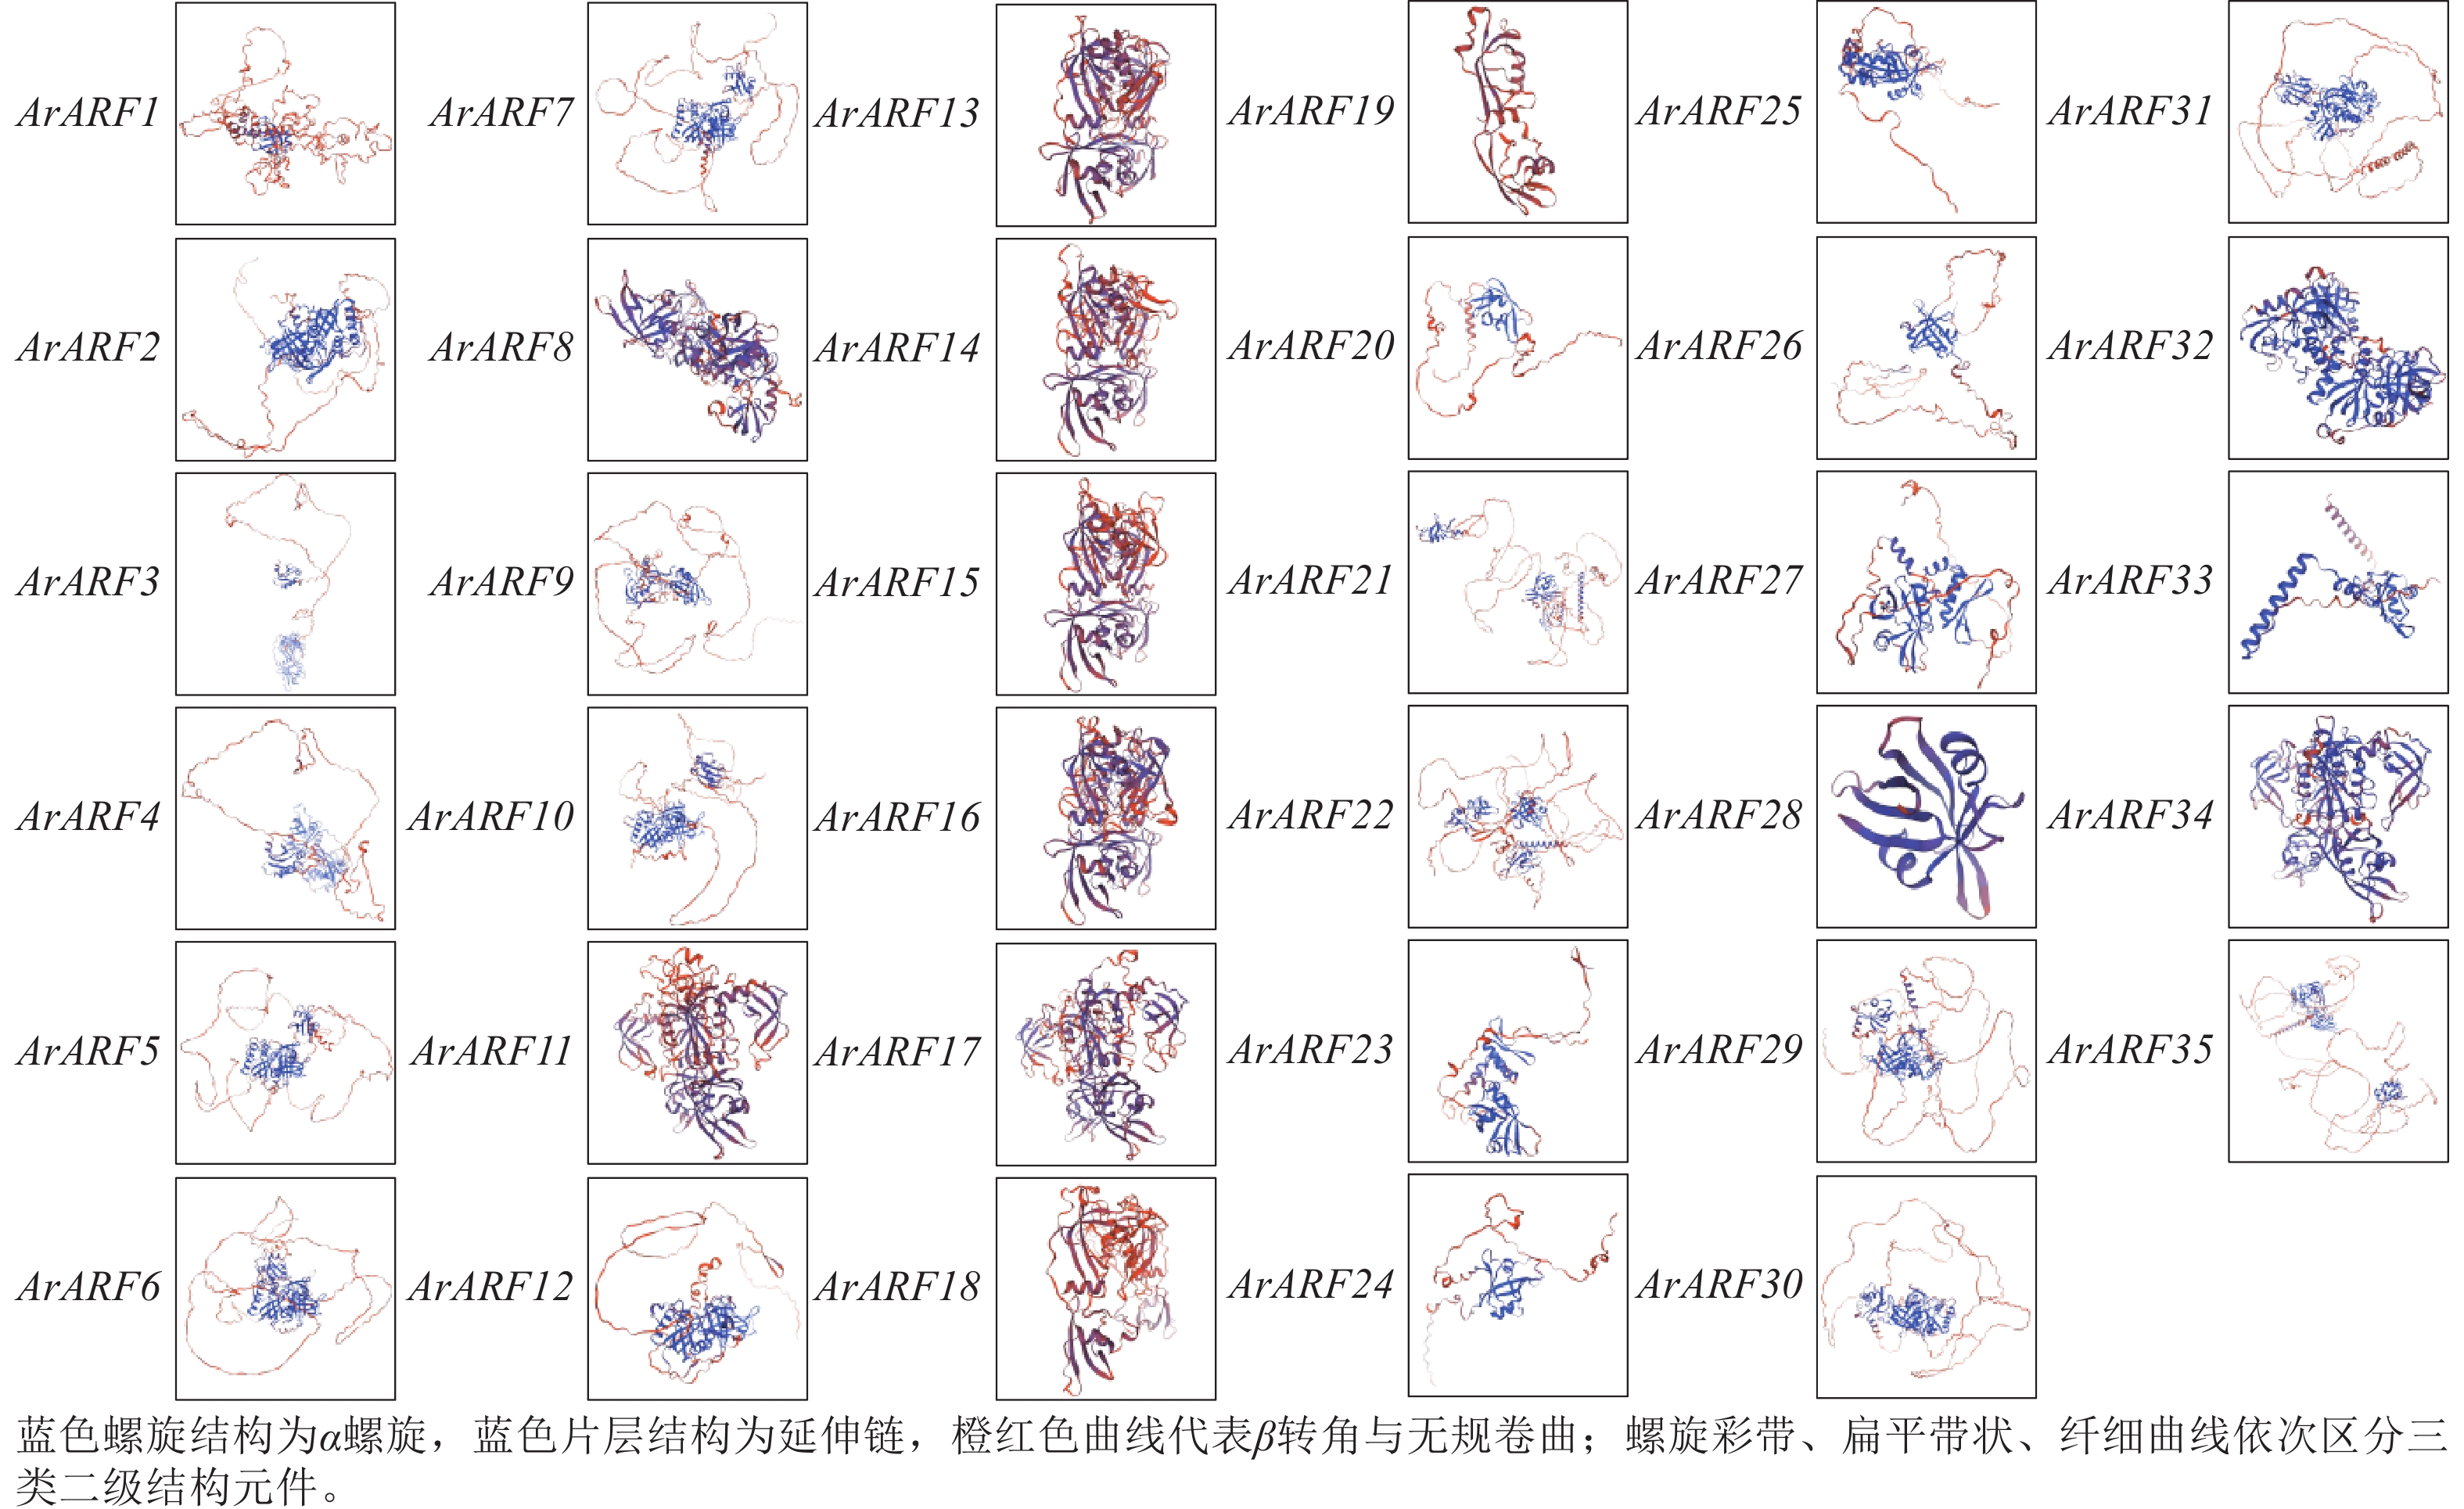
对ArARF蛋白二级结构预测(图4)表明:ArARF蛋白家族成员的二级结构相似度较高,主要包含α螺旋和无规则卷曲。对金线莲ArARF编码蛋白三级结构进行建模,不同亚家族成员蛋白质的α螺旋、延伸链、β转角和无规卷曲的比例差异较大(图5)。系统发育树中聚集在一起的ArARF基因的编码蛋白具有相似的三级结构。
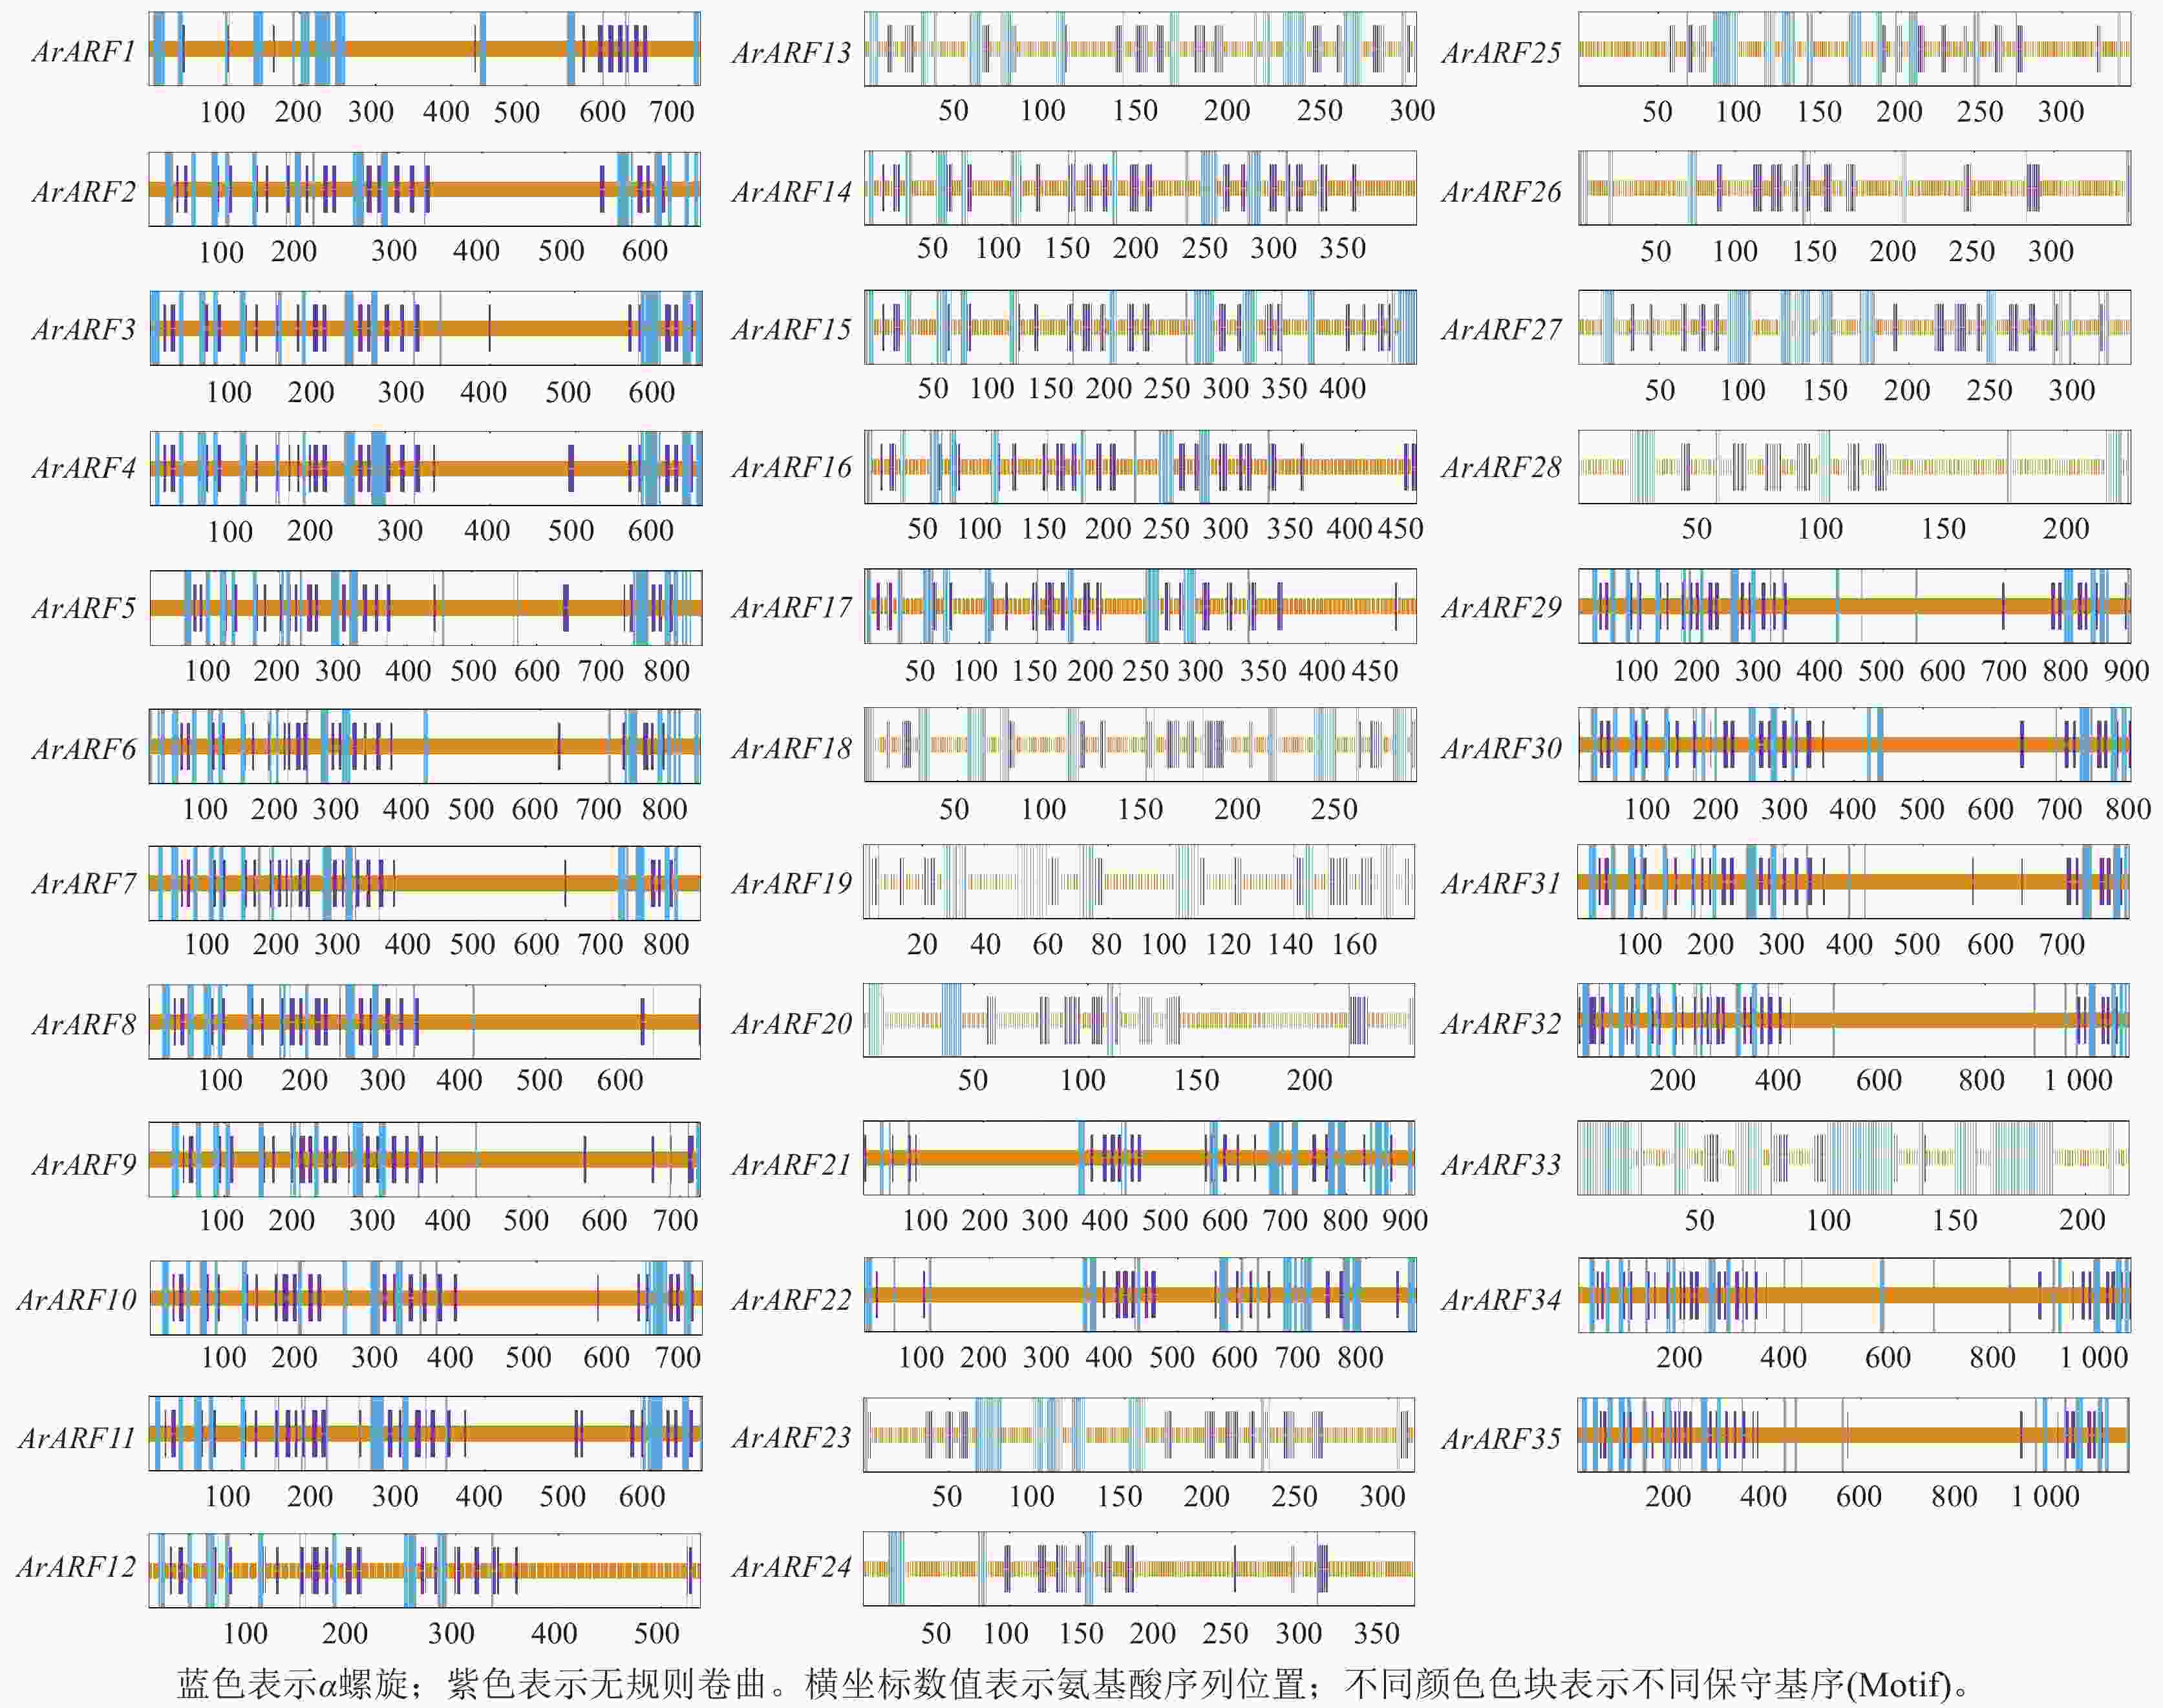
图 4 金线莲ArARF蛋白的二级结构预测
Figure 4. Secondary structure prediction of ArARF proteins in A. roxburghii
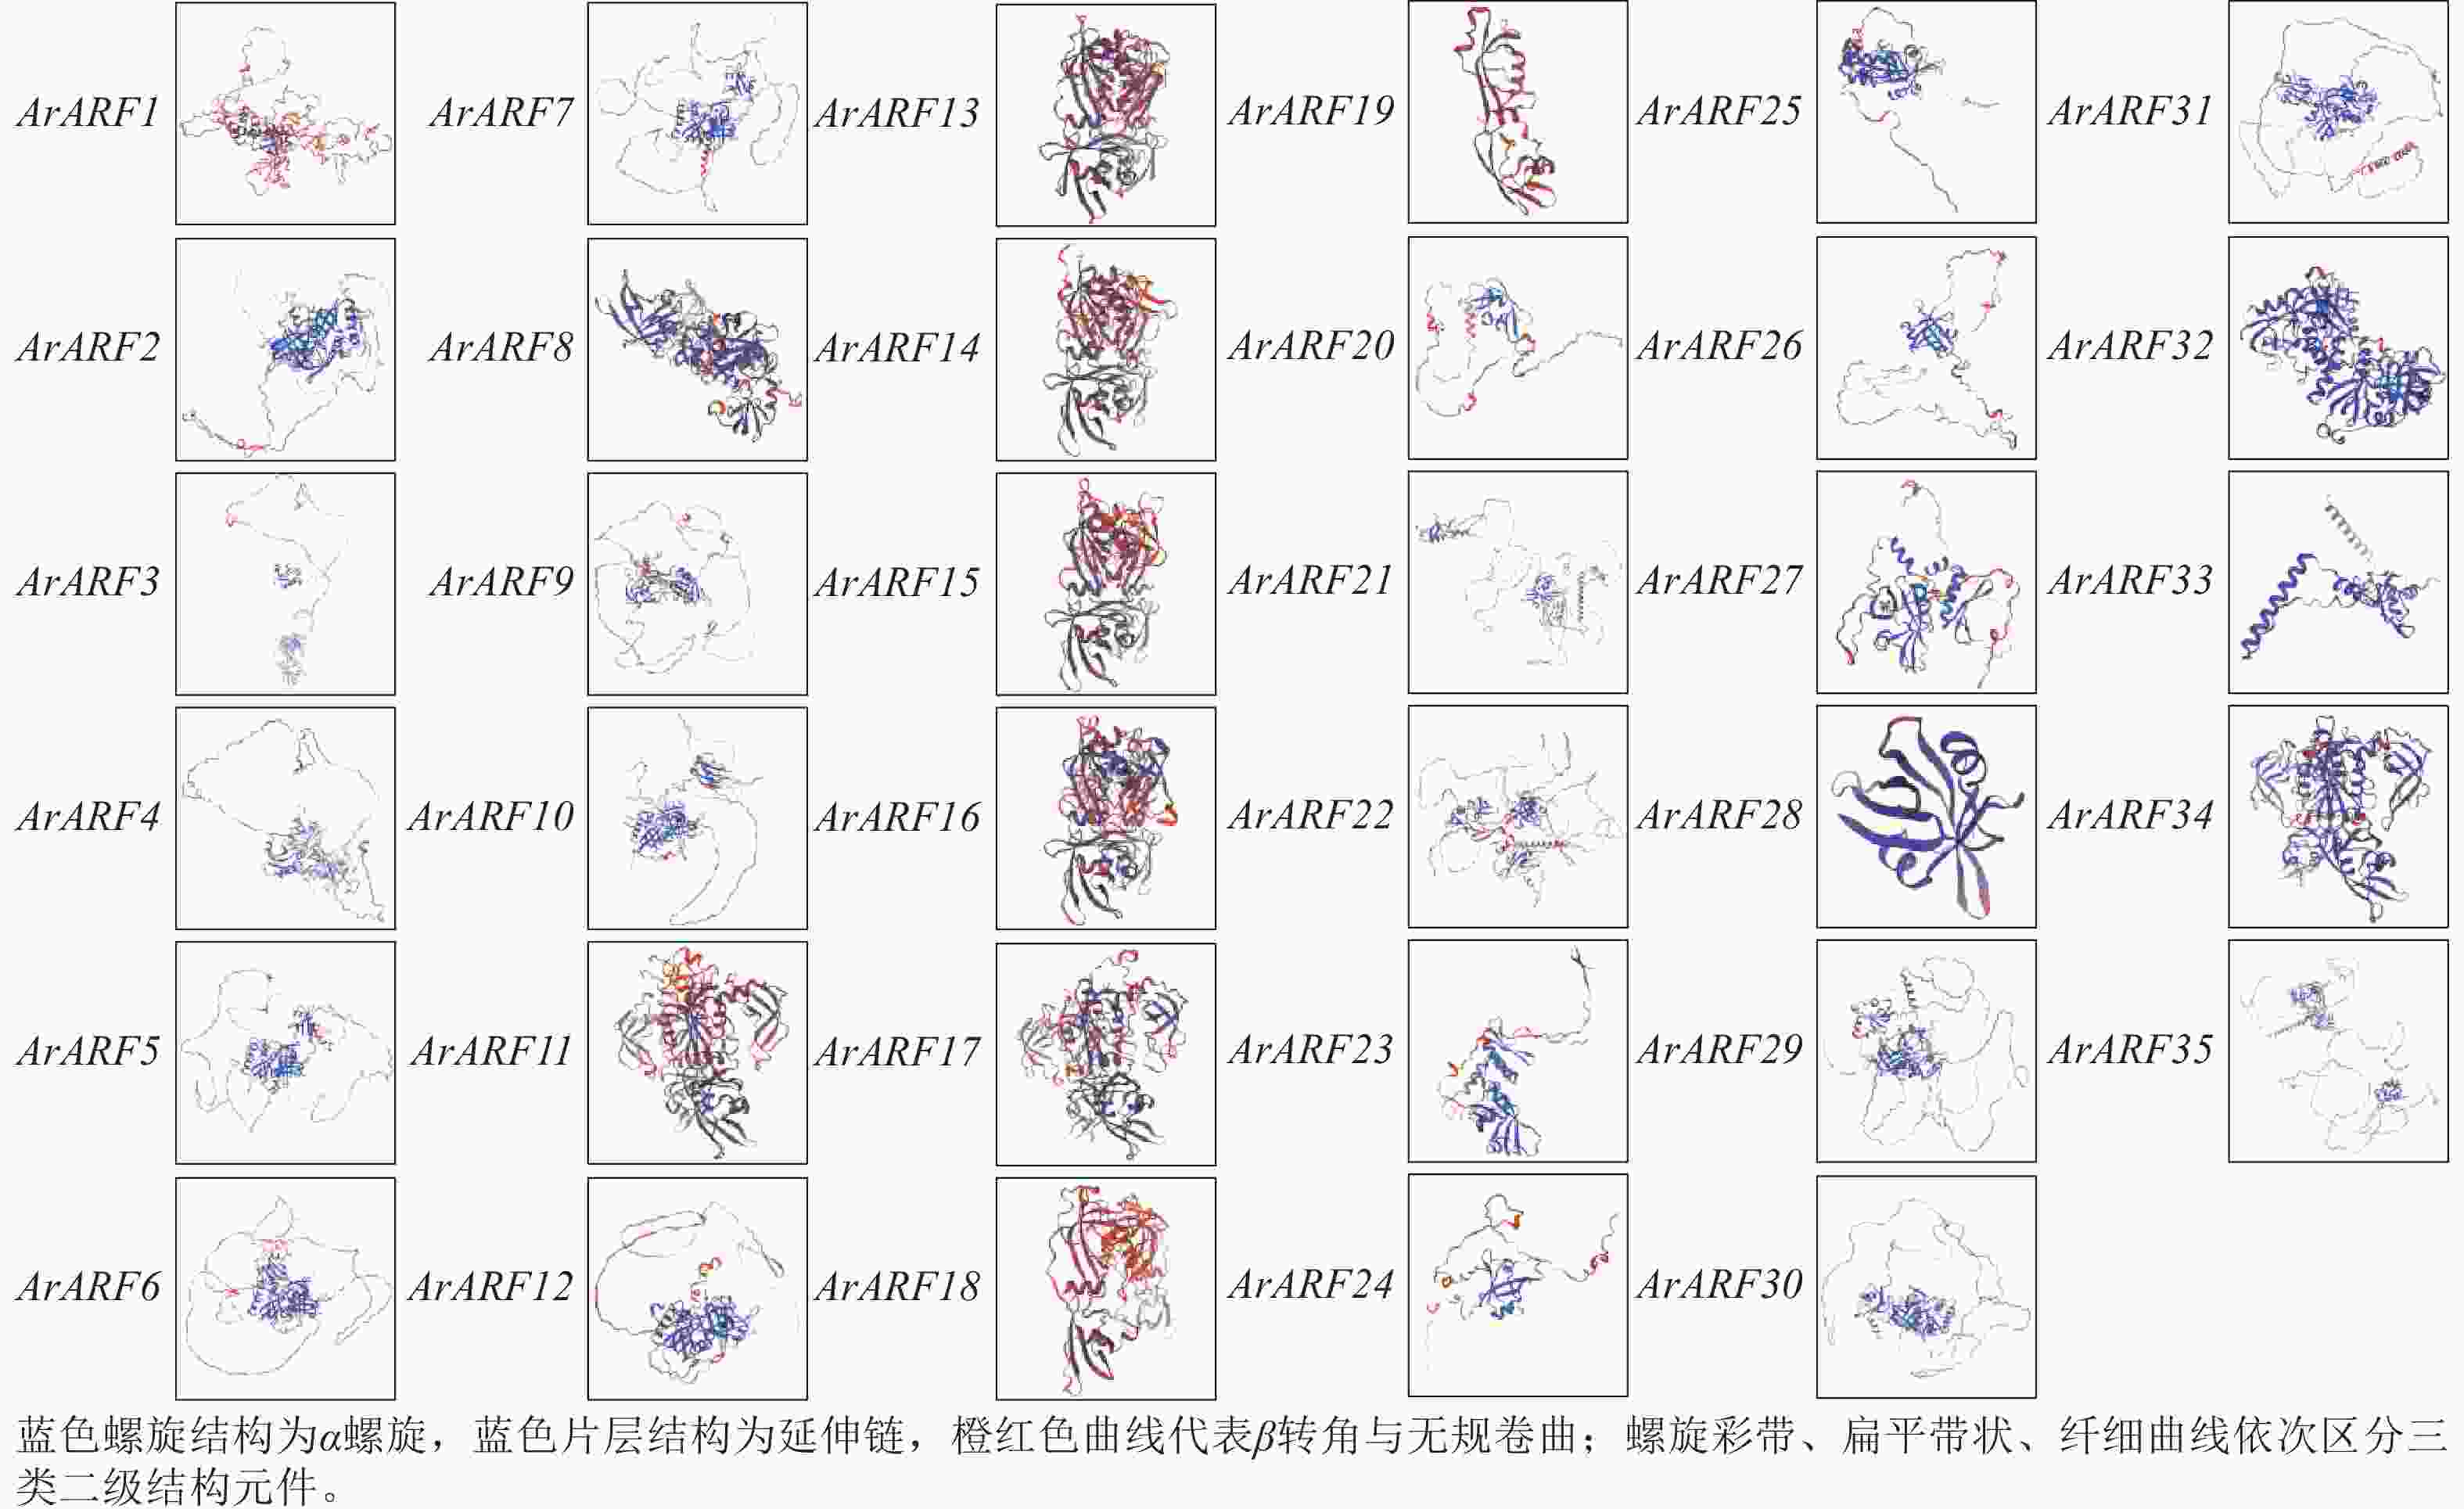
图 5 金线莲ArARF蛋白的三级结构预测
Figure 5. Tertiary structure prediction of ArARF proteins in A. roxburghii
-
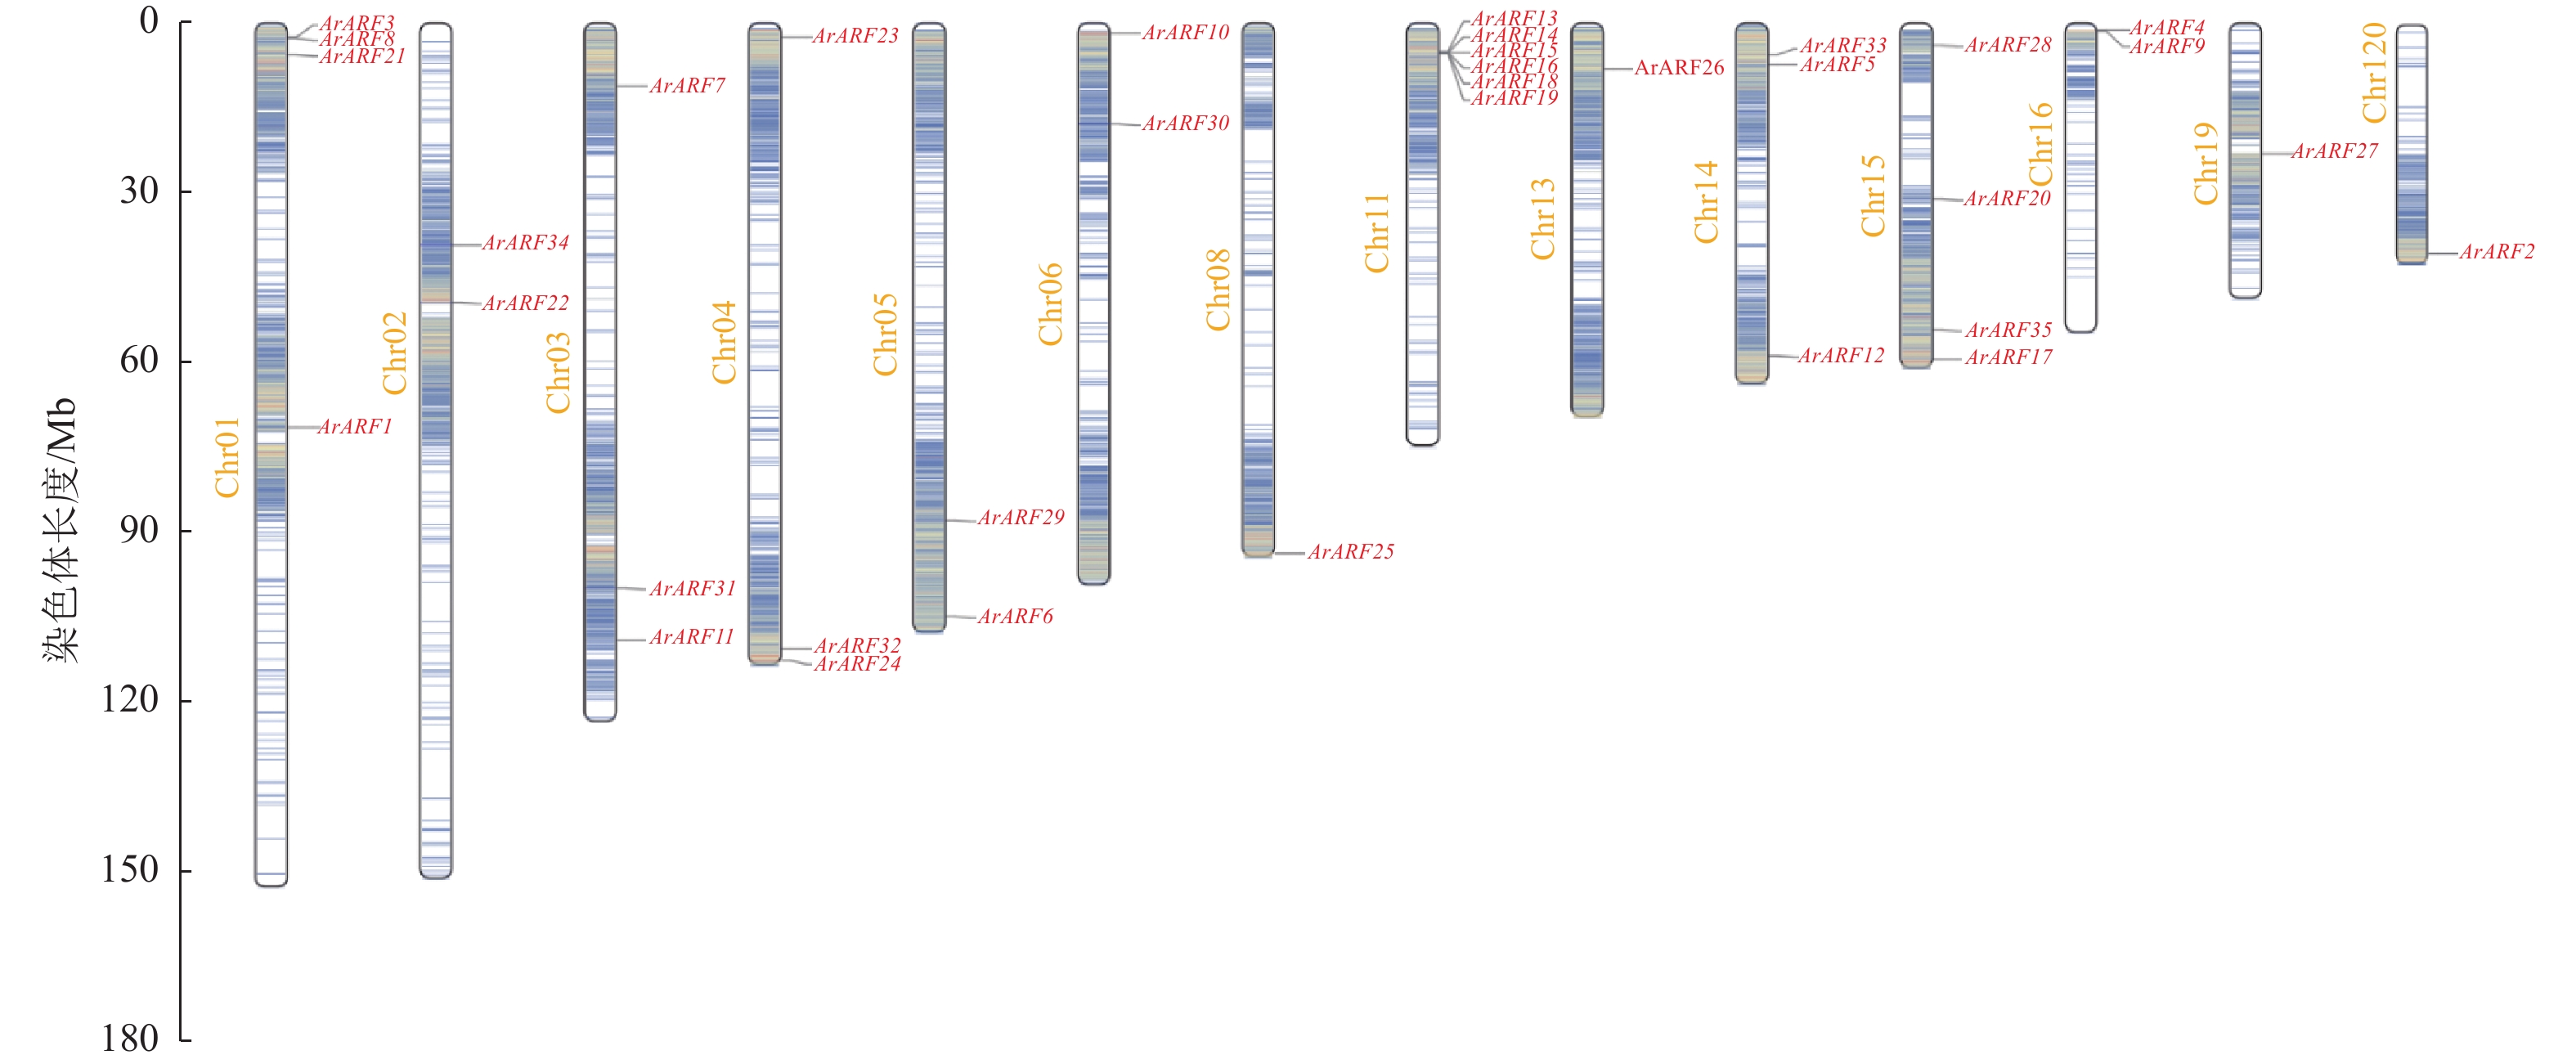
根据金线莲20条染色体的注释信息,对35个ArARF基因进行染色体定位分析,发现这35个基因分布在14条染色体上(图6)。整体上35个ArARF基因在染色体呈现出两端分布。其中1、15号染色体各包含4个基因,2、5、6、16号染色体各包含2个基因,3、4、14号染色体各包含3个基因,8、13、19、20号染色体各包含1个基因,11号染色体上基因最多,包含6个基因。ArARF13、ArARF14、ArARF15、ArARF16、ArARF18、ArARF19这6个基因在11号染色体同一位置聚集,且这6个基因都属于Class Ⅲ亚族,说明这6个ArARF基因符合基因簇的特征,属于ARF基因簇。并且,它们可能来自同一祖先基因的扩增产物,ArARF基因簇可能通过共享生长素响应元件(如AuxREs或MYB/MYC结合位点),在生长素信号或环境刺激下同步上调或下调表达,高效响应发育需求,如金线莲类原球茎的分化。同时也说明这一现象很可能源于基因串联重复事件。基因串联重复可降低单个基因突变对表型的影响,保障基因组的稳定性,基因串联重复可通过剂量效应提升mRNA和蛋白质的合成量,从而强化ArARF基因的核心功能。
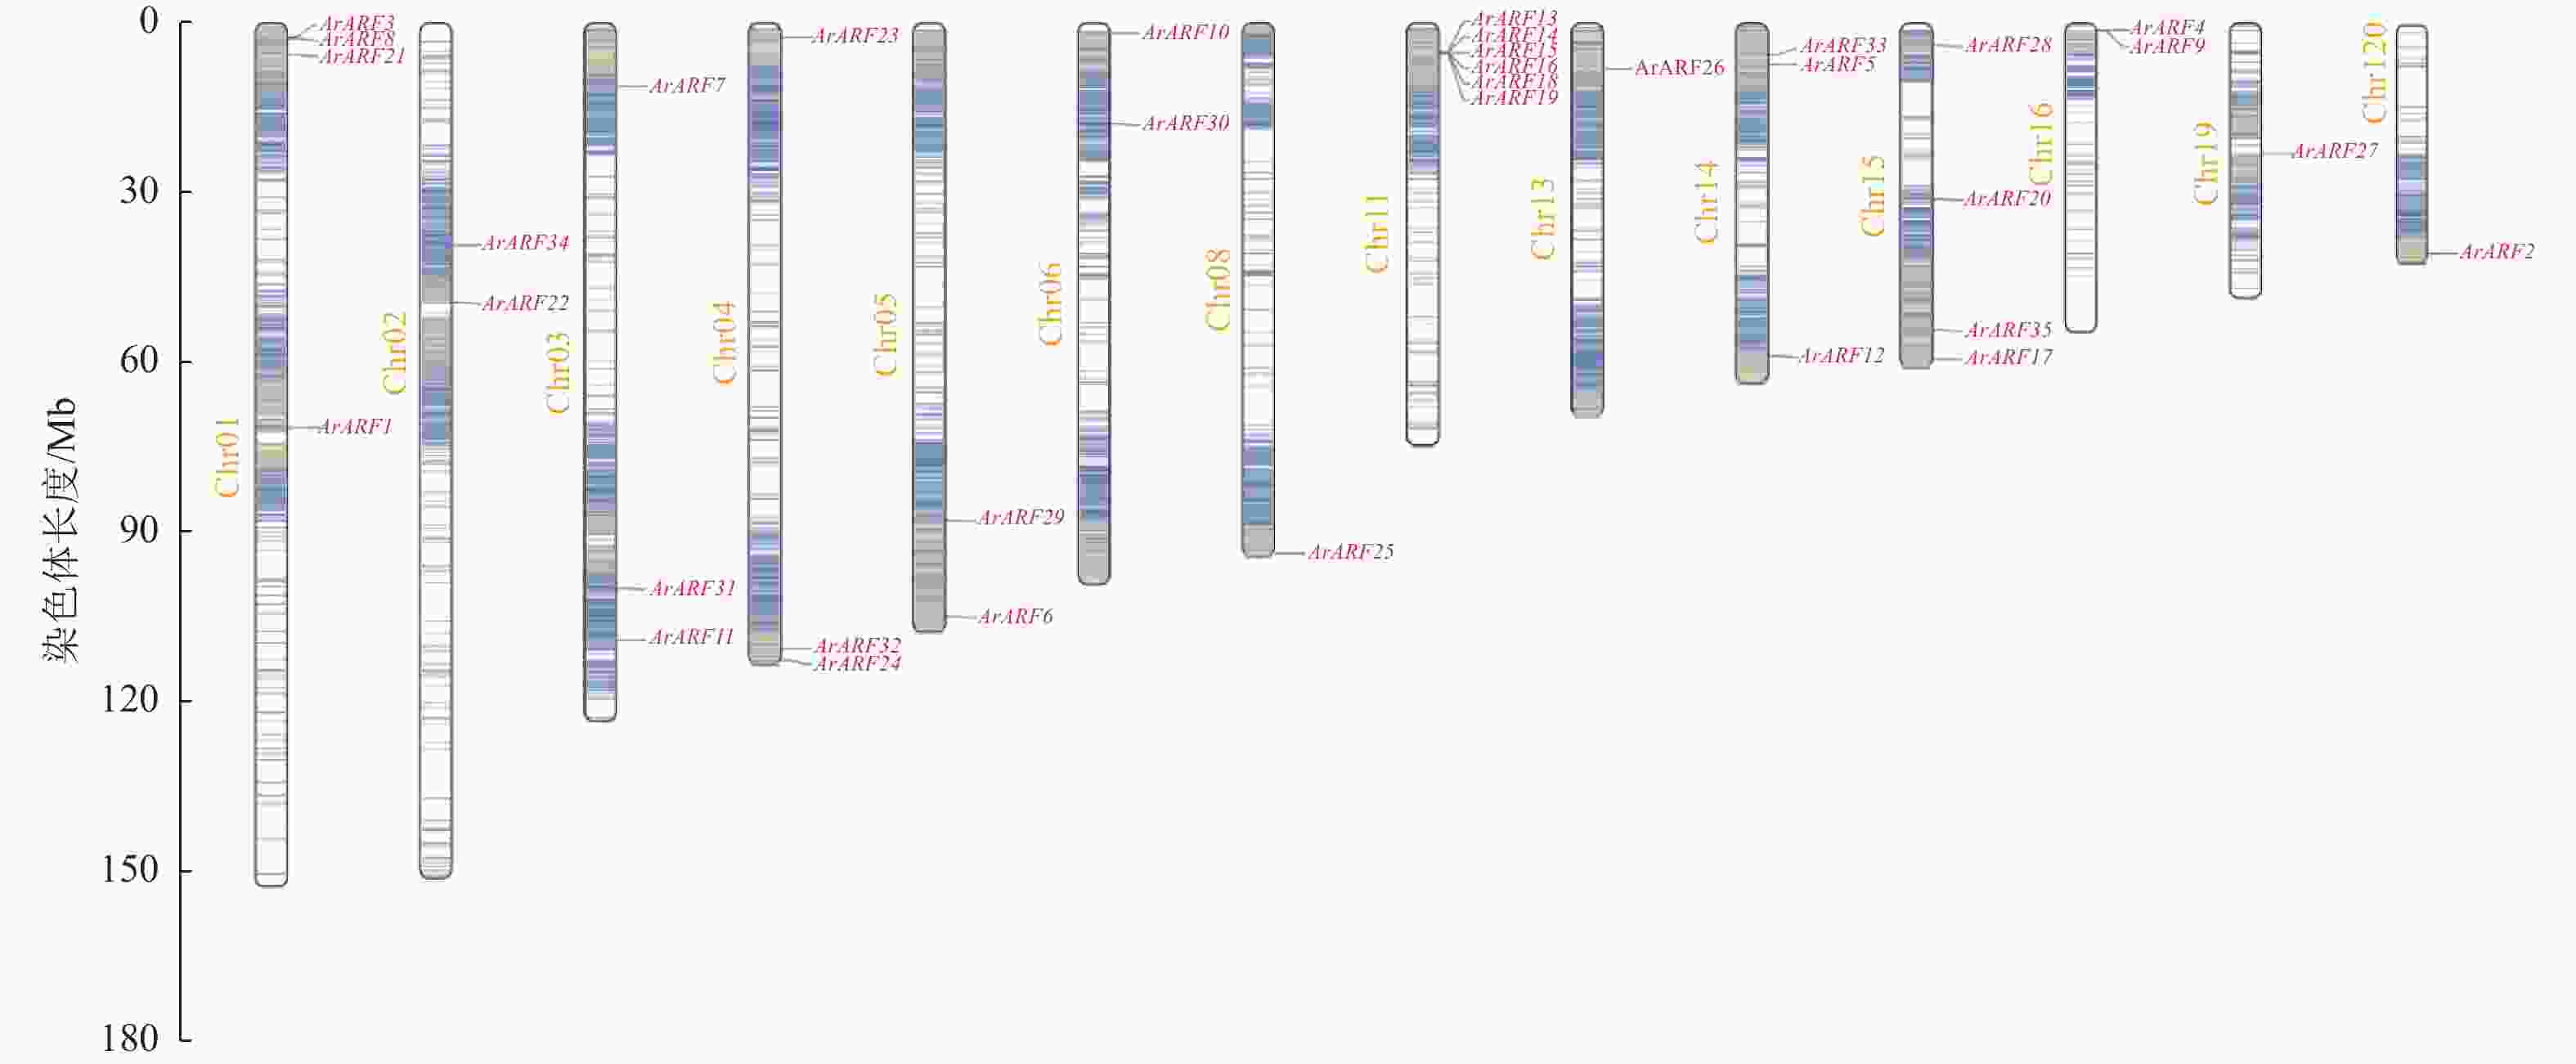
图 6 金线莲ArARF基因在染色体上的分布
Figure 6. Distribution of ArARF genes on chromosomes in A. roxburghii
-
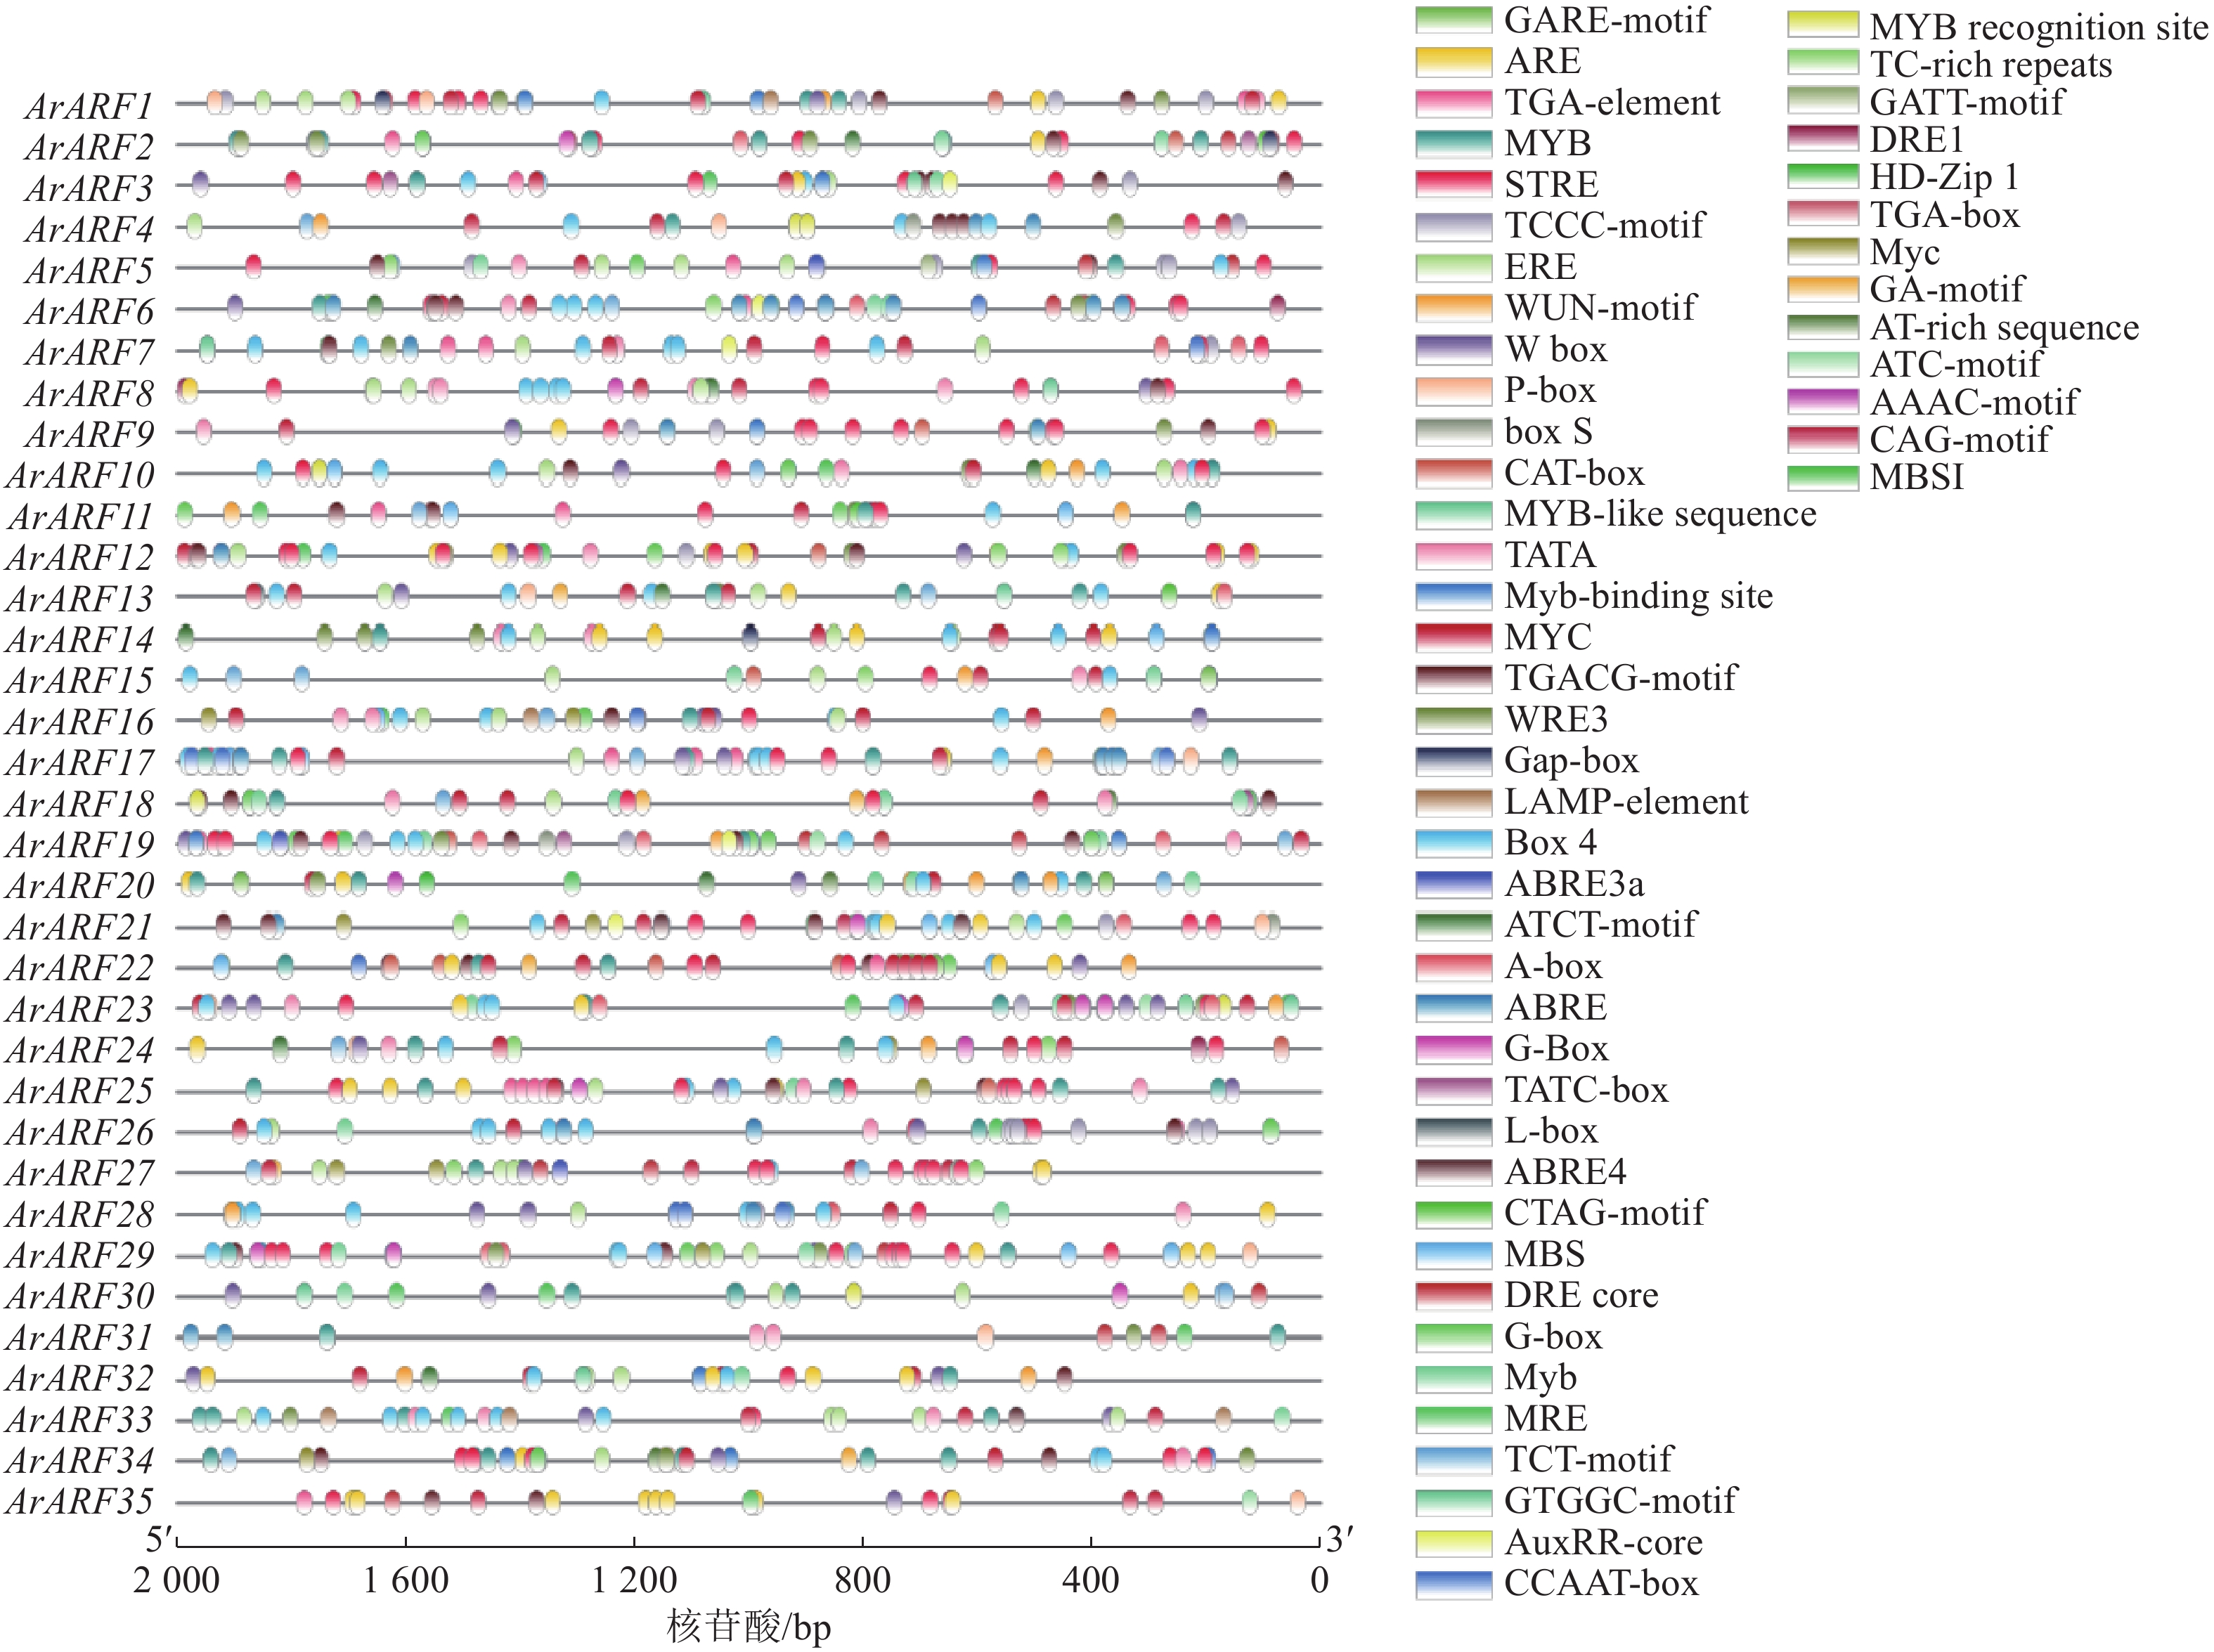
将ArARF起始密码子上游2 000 bp序列提取并上传至PlantCARE网站,共鉴定出52种顺式作用元件(图7)。进一步统计发现:不同ArARF启动子特异调控元件数量存在差异,如ArARF31含有最少的启动子元件结合位点,为12个,ArARF19含有最多的启动子元件结合位点,为56个。
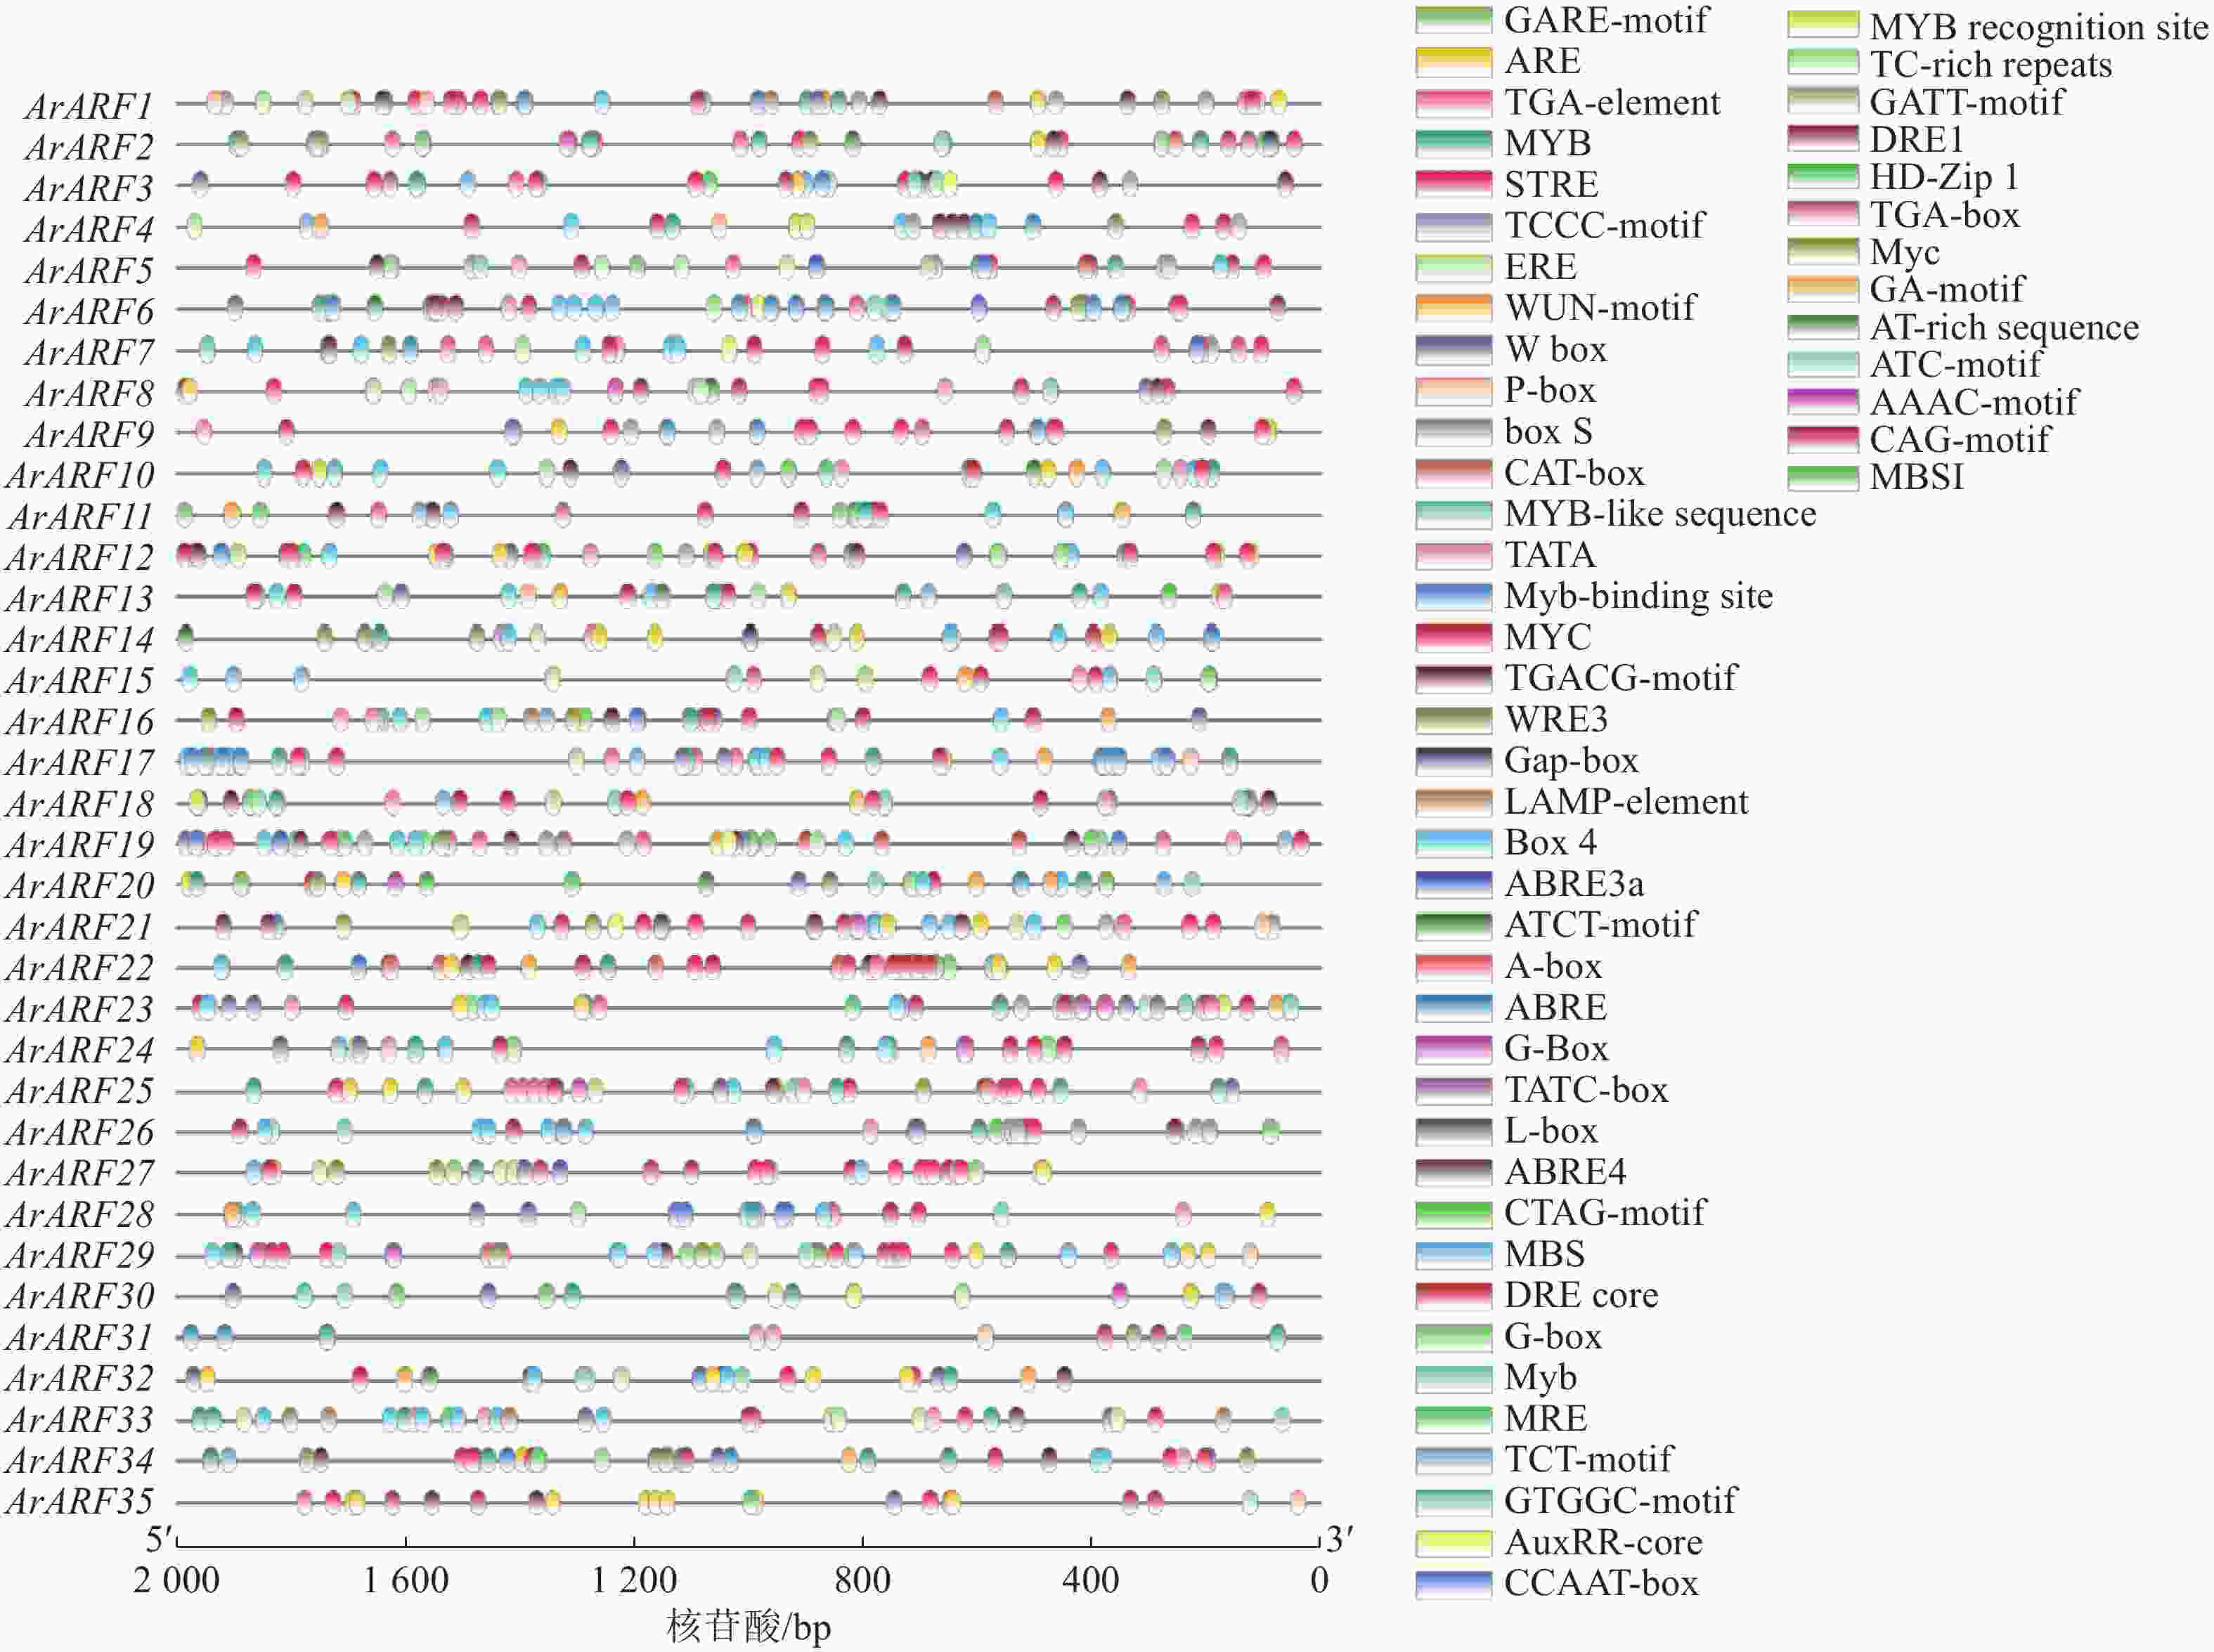
图 7 金线莲ArARF基因家族启动子区顺式作用元件分析
Figure 7. Analysis of cis-acting elements in promoters of ArARF gene family in A. roxburghii
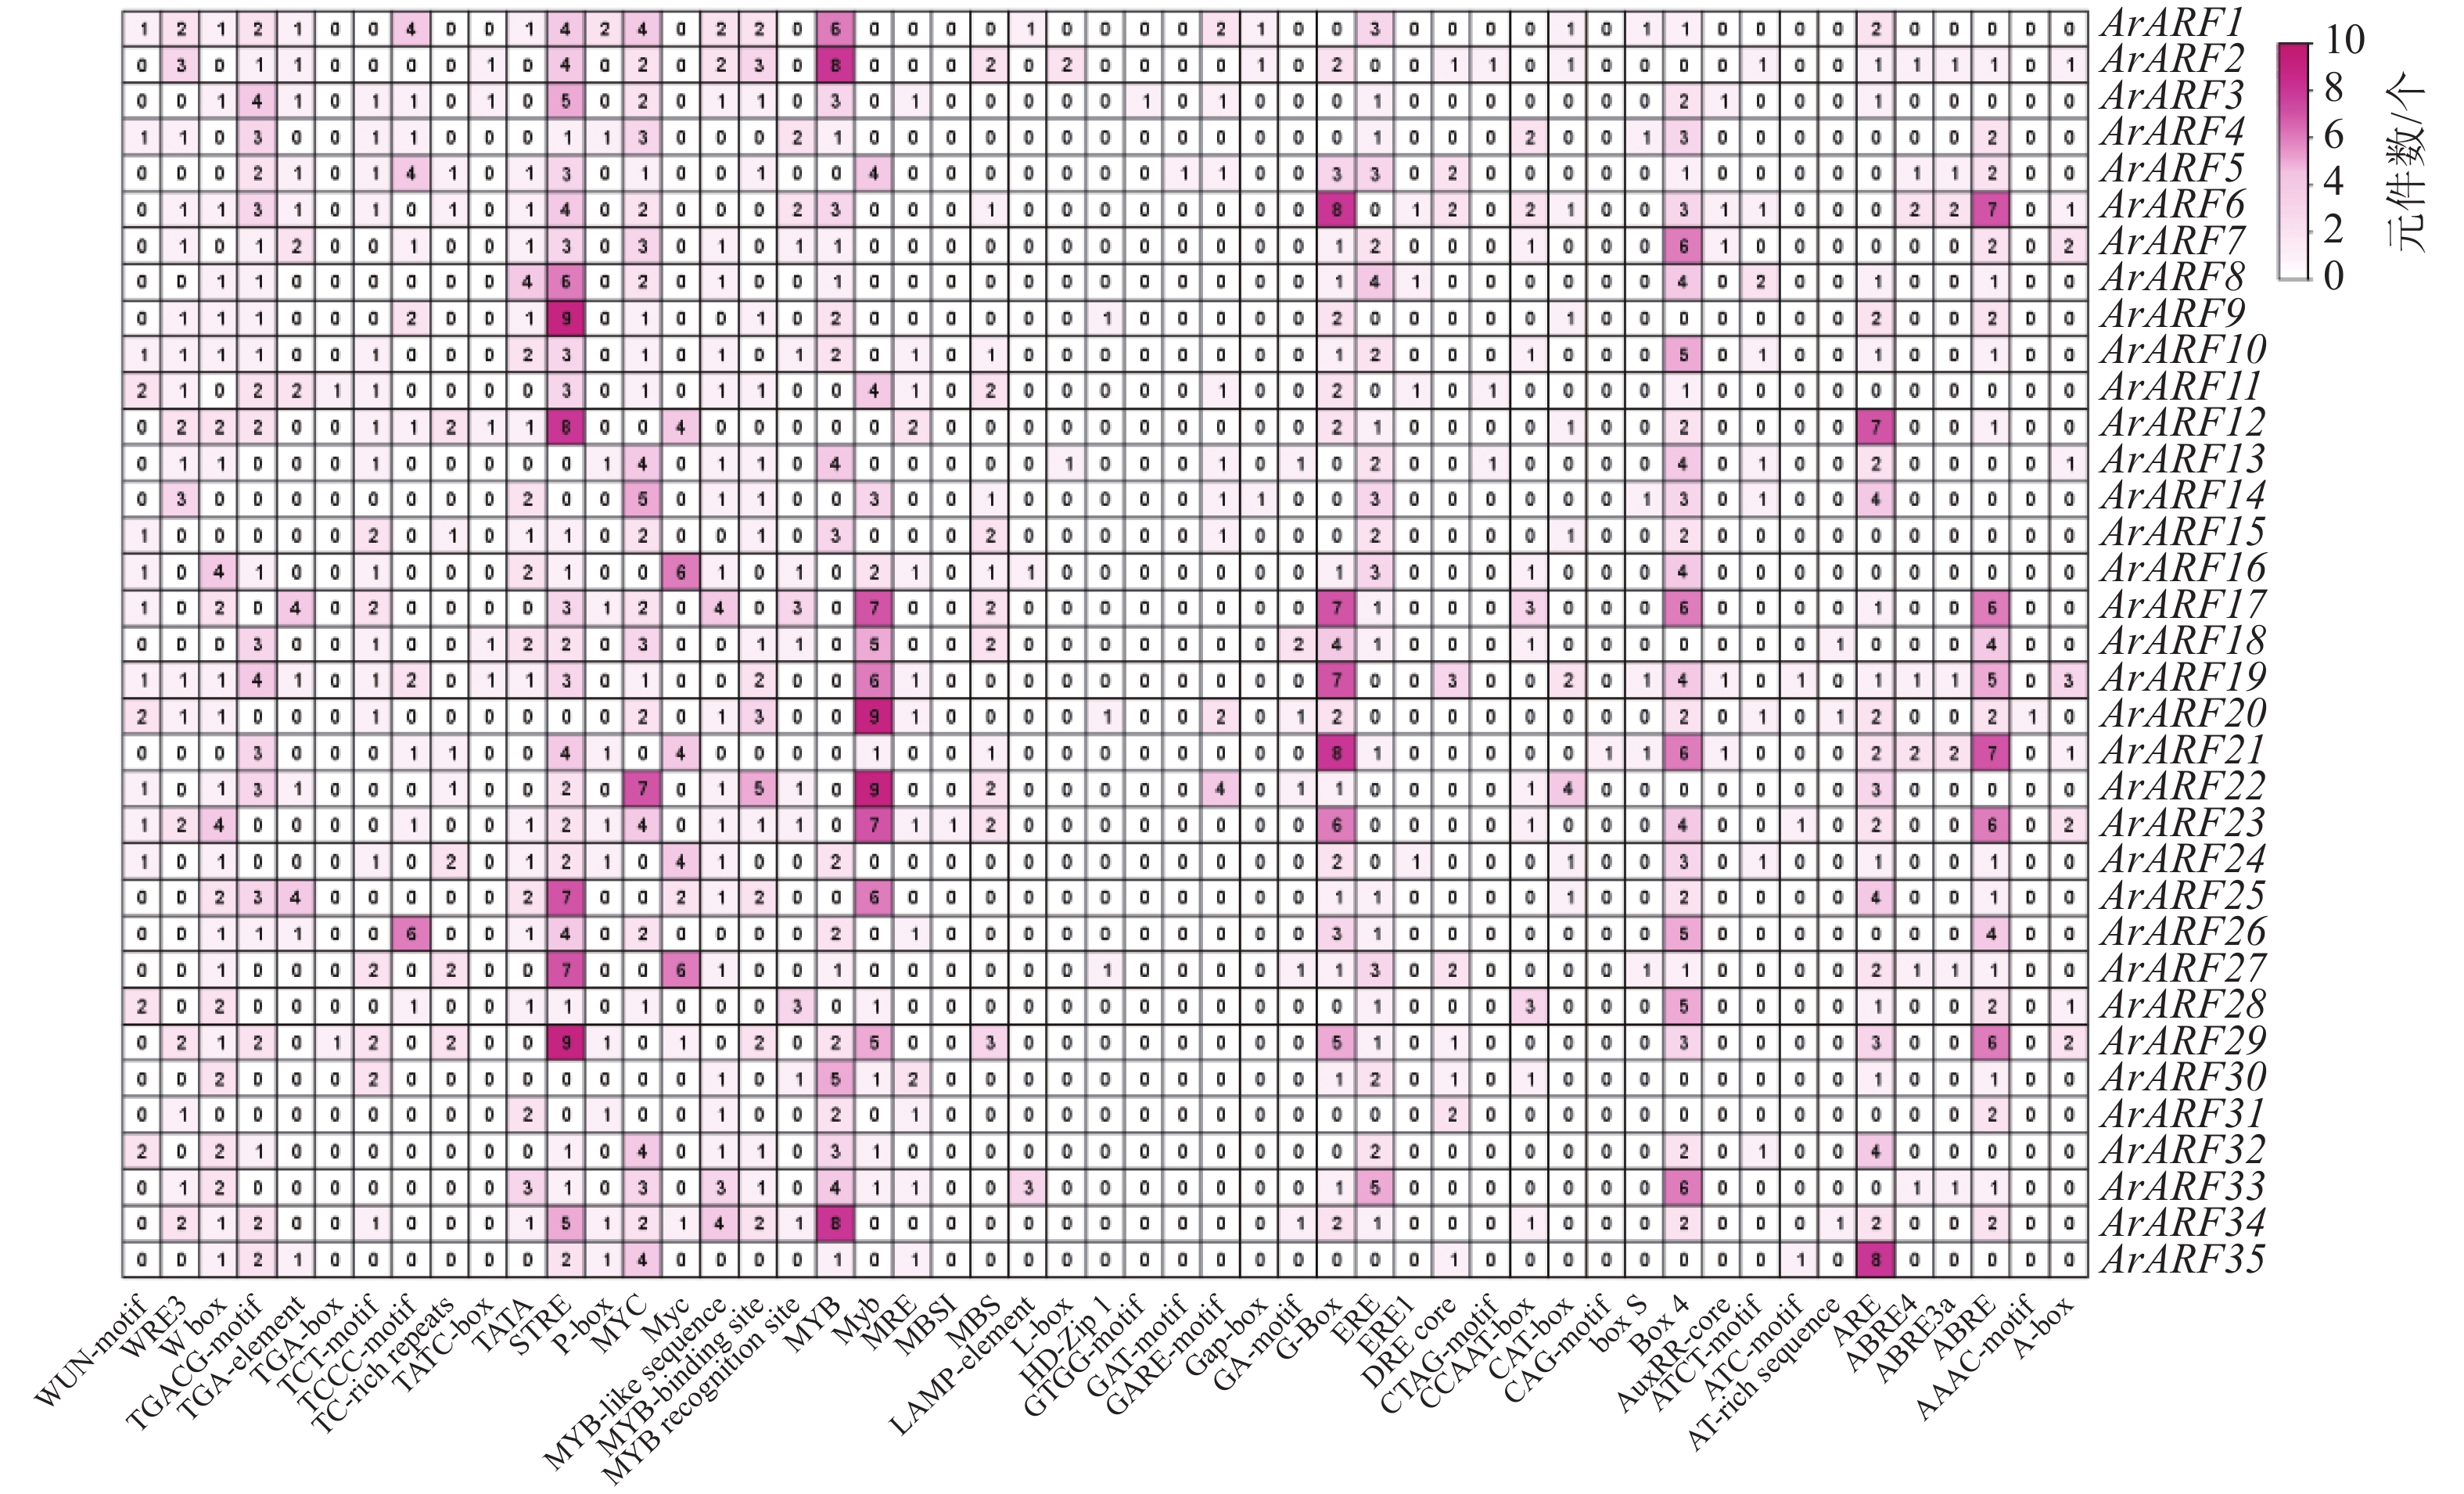
顺式作用元件预测结果显示:除了保守的TATA-box、CCAAT-box和光响应等元件,ArARF启动子还存在其他特异的调控元件,包括激素响应元件、植物生长发育相关元件和非生物胁迫响应元件。激素响应元件包括生长素响应元件TGA-element、AuxRR-core等,赤霉素响应元件GARE-motif、P-box、TATC-box等,脱落酸响应元件ABRE、MYC等,茉莉酸甲酯响应元件TGACG-motif等。其中以脱落酸响应元件较多(图8)。植物生长发育元件包括昼夜节律调控元件G-Box、分生组织表达调控元件CAT-box等,其中以MYB结合元件较多。非生物胁迫响应元件包括厌氧诱导响应元件(ARE)、干旱胁迫响应元件(MYC)、机械损伤响应元件(WUN-motif)和低温响应元件(DRE1)等。这些结果表明ArARF基因可能广泛参与了生长发育、激素信号转导与非生物胁迫等生物学过程。
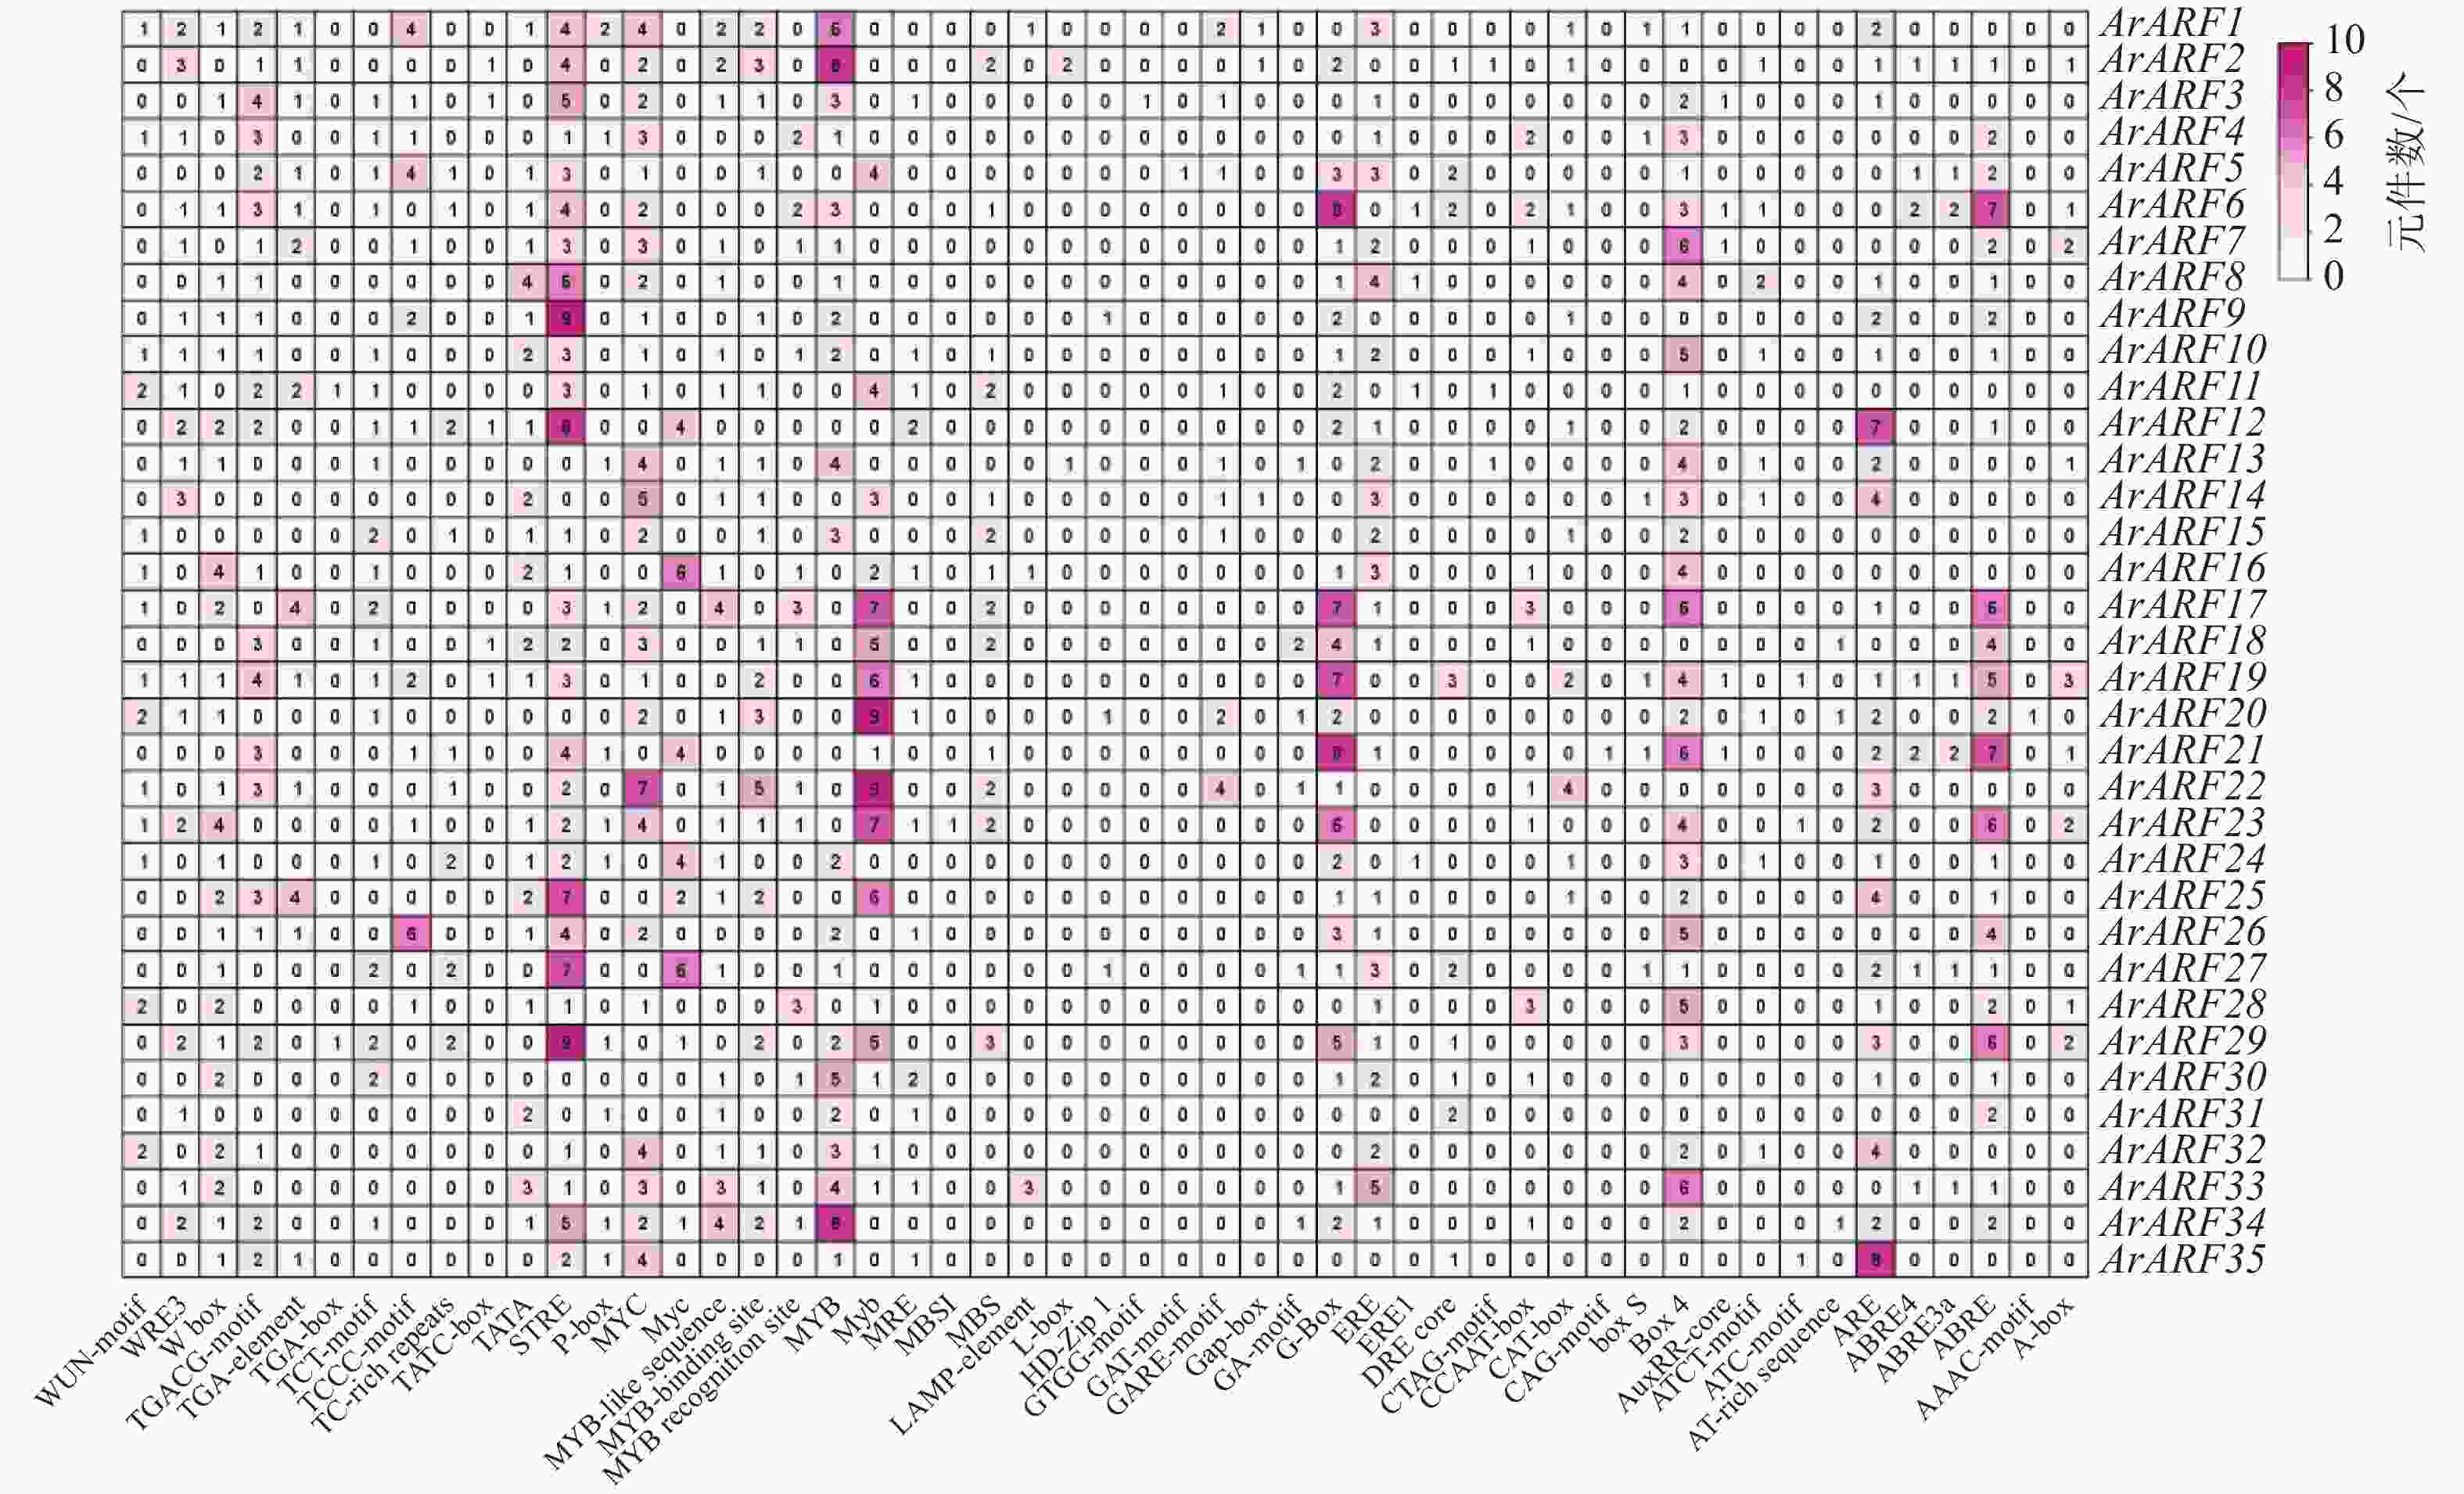
图 8 金线莲ArARF启动子顺式作用元件
Figure 8. The cis-acting element in the promoters region of ArARF in A. roxburghii
-
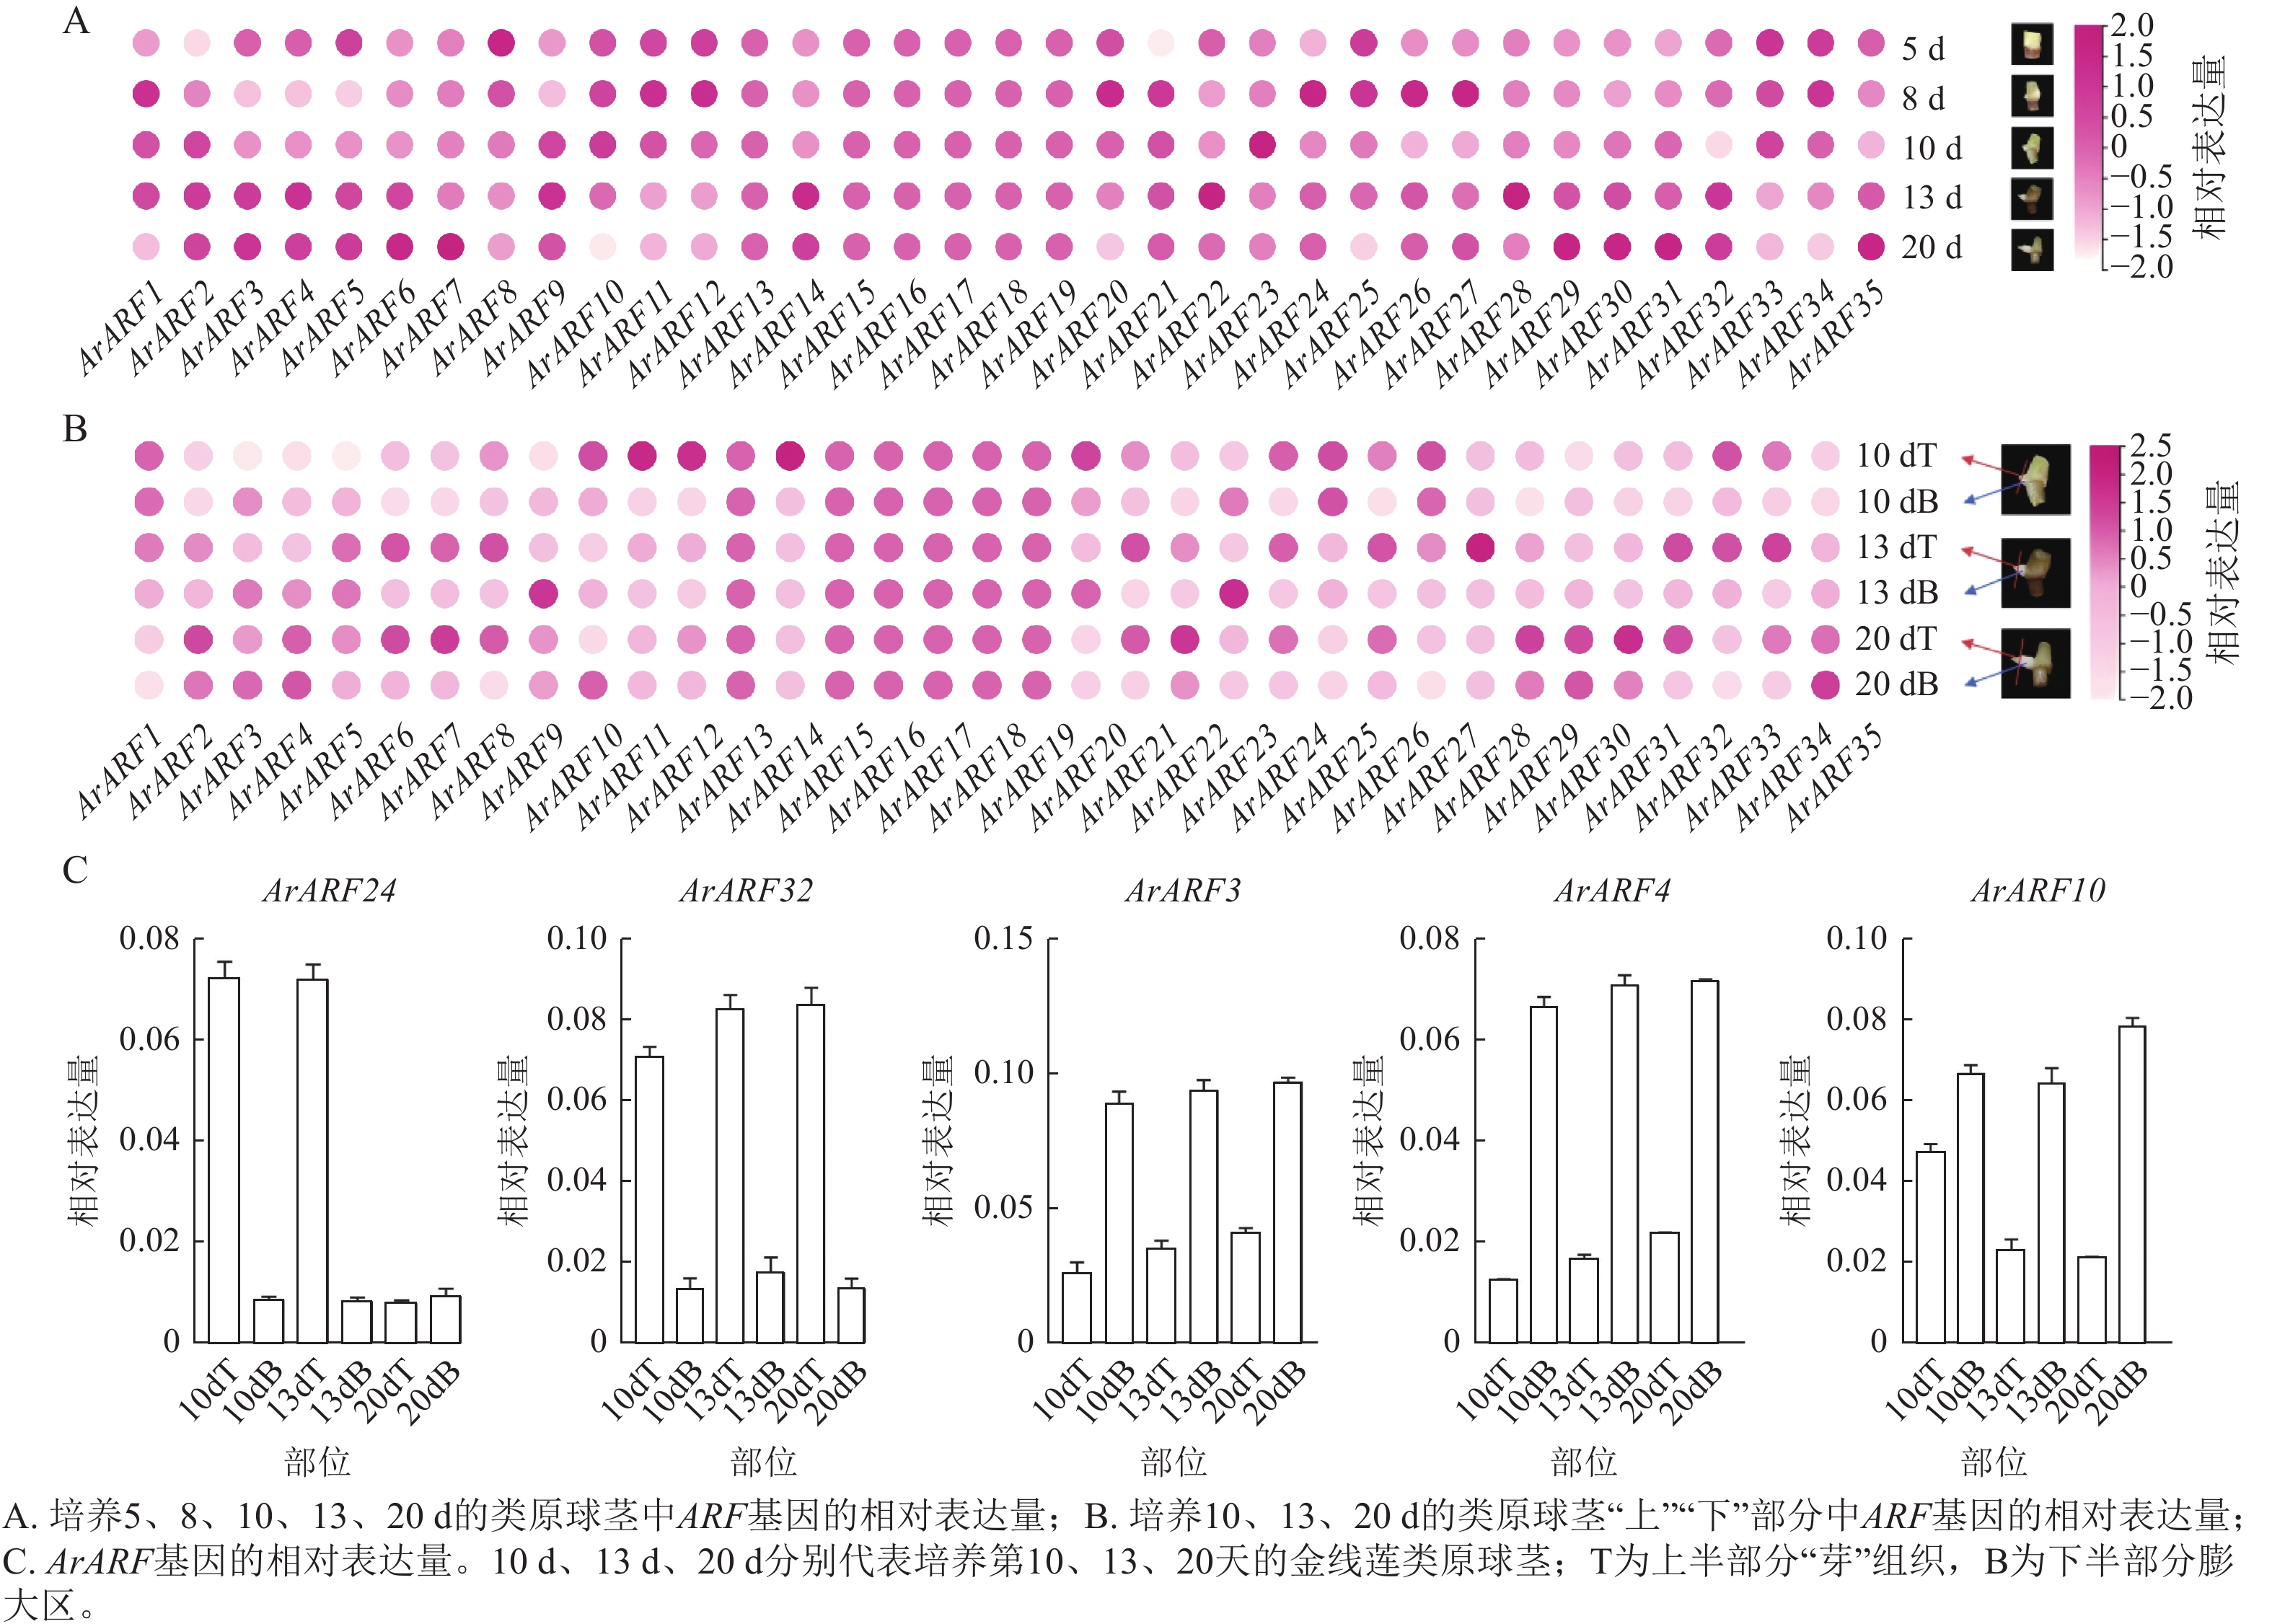
如图9所示:ArARF2、ArARF5、ArARF8、ArARF9、ArARF29、ArARF33、ArARF35这7个基因在类原球茎不同生长阶段和部位的表达量都相对较高,且多数基因的表达量随培养时间延长呈升高趋势(图9A)。此类基因可能参与类原球茎全程发育调控,尤其在培养后期(13~20 d)的器官分化中发挥核心作用。ArARF10、ArARF11、ArARF12、ArARF20、ArARF25这5个基因在5~10 d的生长阶段表达量高,20 d时表达量明显下降。推测其主要参与类原球茎发育早期的调控,如启动细胞分裂、建立生长素浓度梯度。
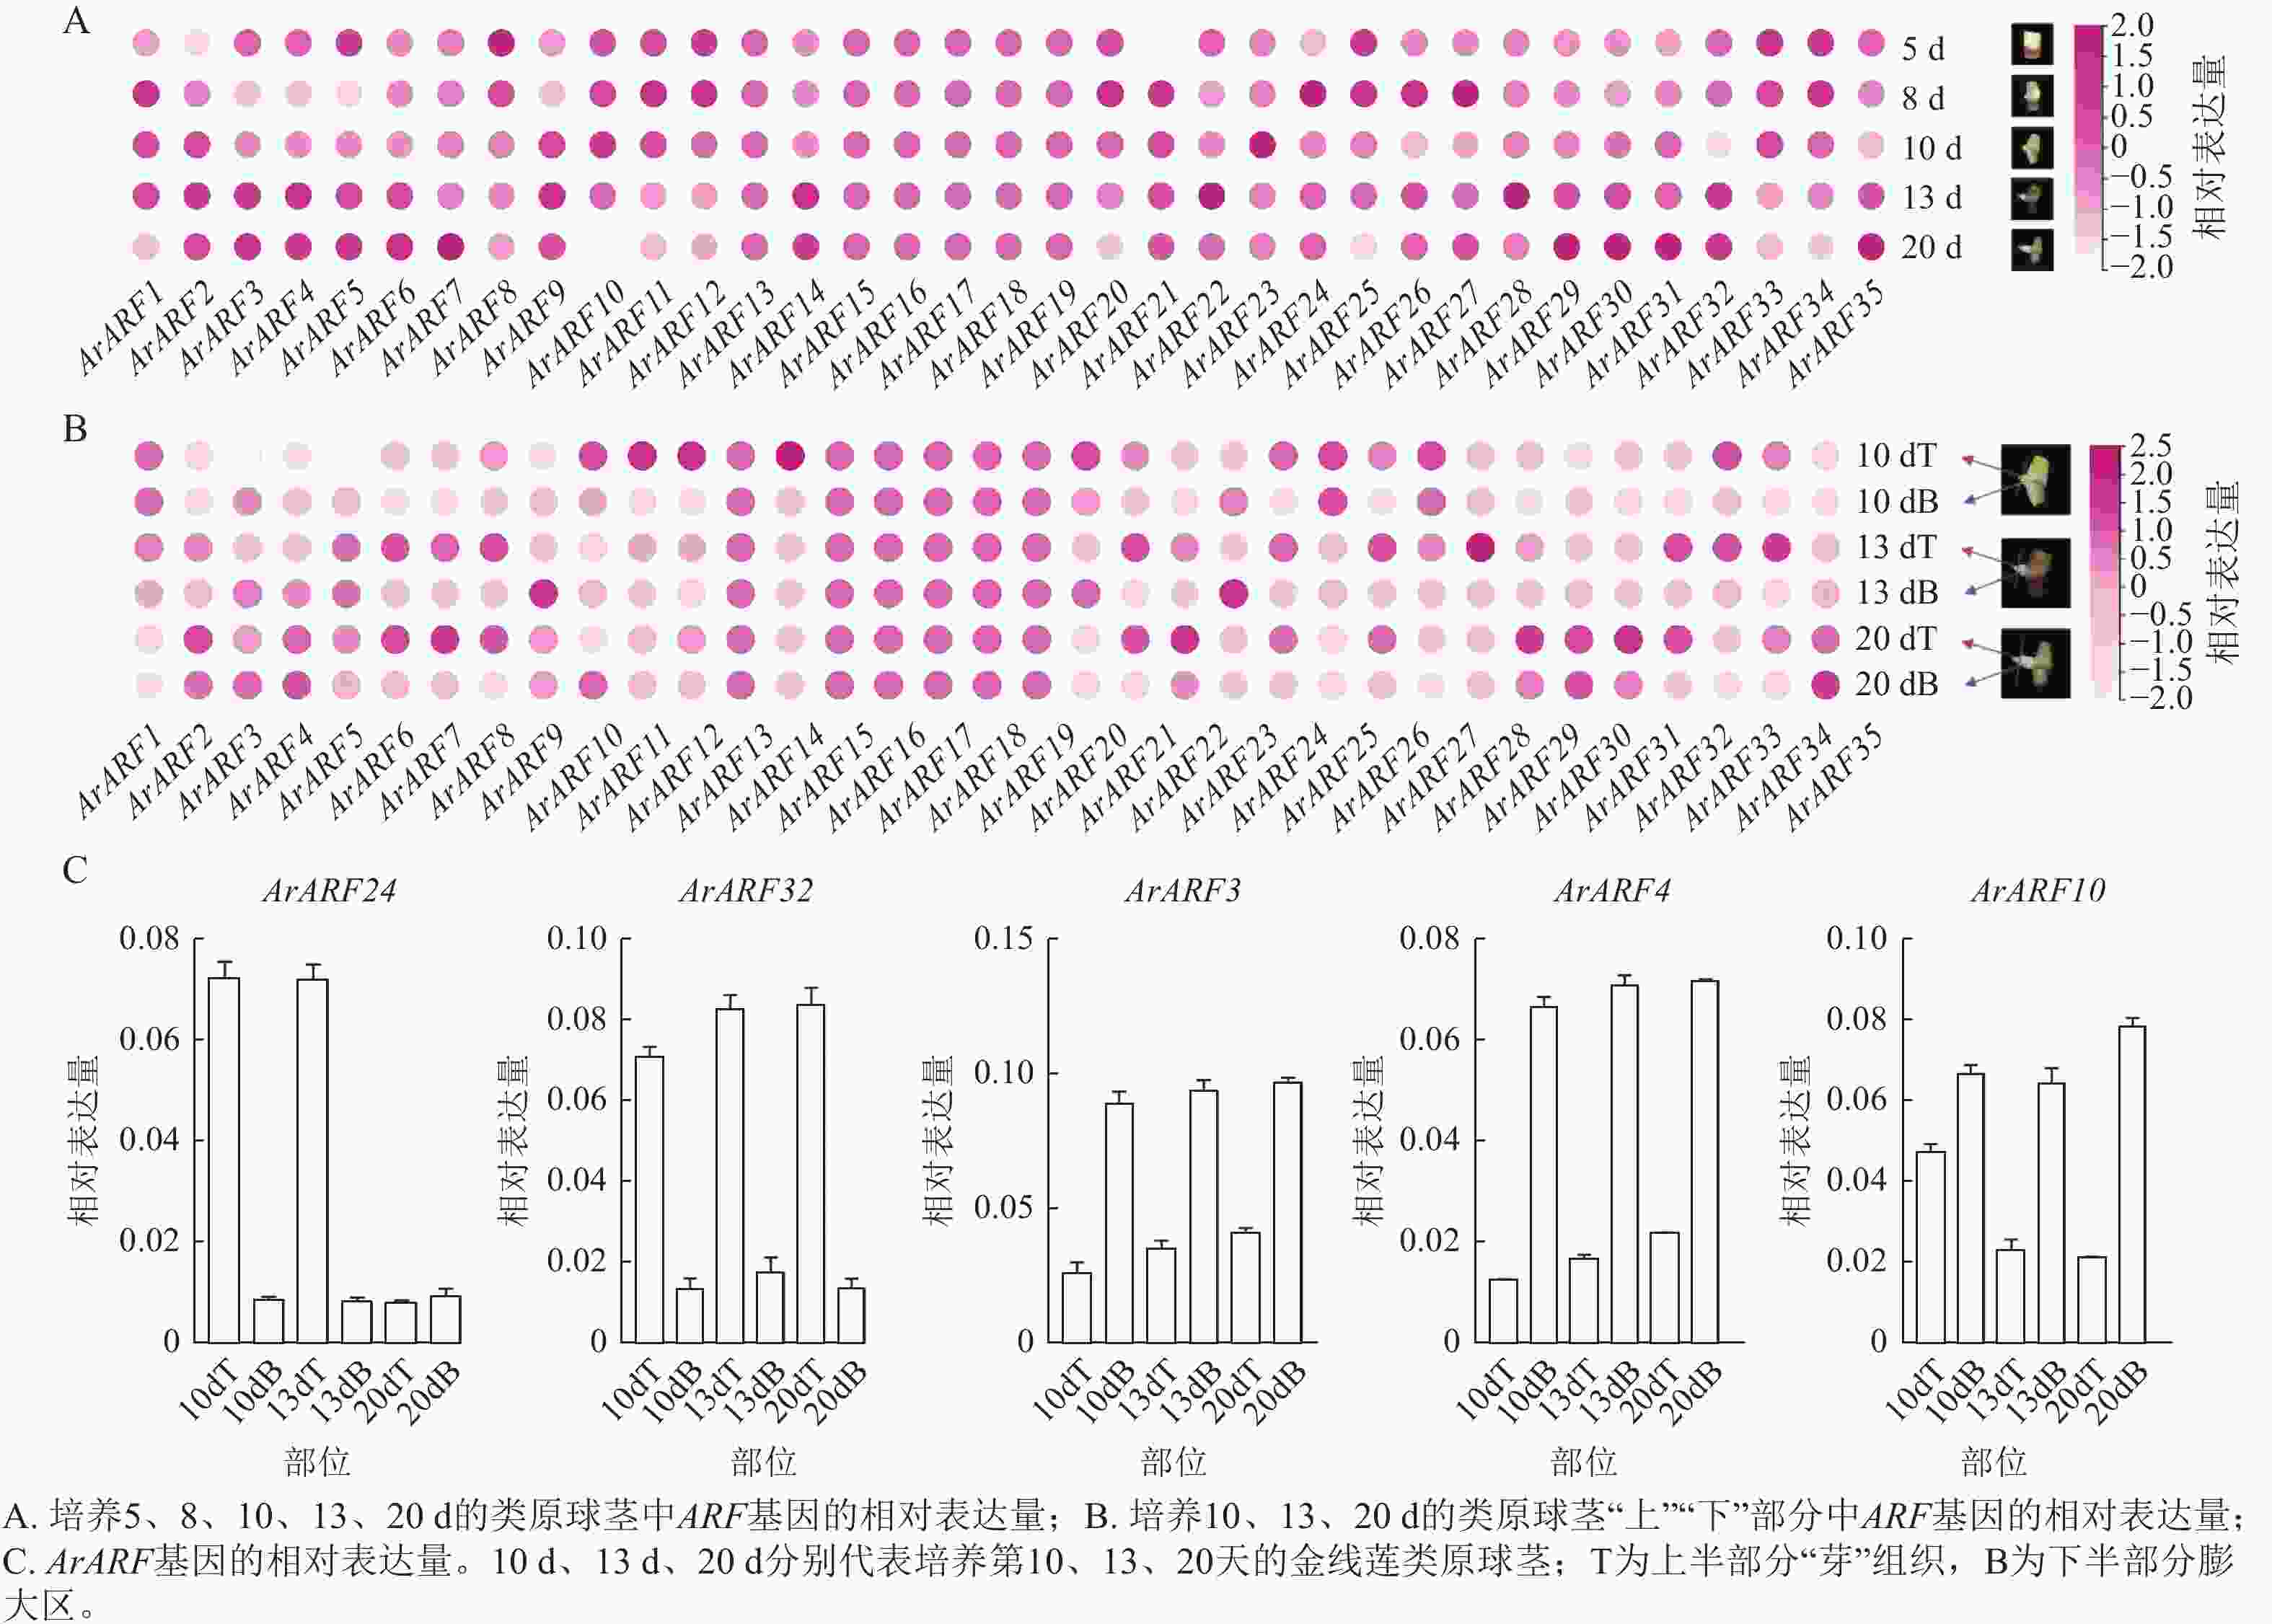
图 9 ArARF基因在类原球茎不同生长阶段和部位的相对表达量
Figure 9. Relative expression levels of ArARF in different growth stages and parts of protocorm-like bodies
ArARF24、ArARF32这2个基因在10、13、20 d类原球茎的上半部分“芽”组织中表达量明显高于下半部分膨大区(图9B)。上半部分“芽”是未来茎叶分化的关键区域,此类基因可能参与顶端分生组织维持与器官原基形成。ArARF3、ArARF4、ArARF10则在类原球茎的下半部分膨大区表现出更高的表达量(图9C)。下半部分膨大区承担营养储存与根原基分化功能,是类原球茎实现再生的关键,推测这些基因的表达模式可能与下半部分膨大区的功能特化存在关联。11号染色体上的ArARF13、ArARF14、ArARF15、ArARF16、ArARF18、ArARF19形成基因簇,且均属于Class Ⅲ亚族,其表达模式在生长阶段和部位上呈现一定协同性(如在10~13 d均有中高表达),其表达的协同性提示该基因簇可能通过功能关联的表达调控模式,参与类原球茎中期发育的生长素信号调控过程。
-
ARF作为调控生长素信号转导的关键转录因子,在植物的生长发育中具有重要作用[17]。金线莲类原球茎作为组织培养过程中的一种特殊结构,是实现其再生的关键。本研究根据基因组与转录组数据,从金线莲及其类原球茎中鉴定出35个ArARF基因家族成员。已有研究表明:ARF基因家族成员数量在不同物种中存在差异,如拟南芥有23个ARFs[18]、烟草Nicotiana tabacum有50个ARFs[19]、水稻有25个ARFs[20]、大豆Glycine max有51个ARFs[21]、葡萄Vitis vinifera有19个ARFs[22]。尽管不同物种的基因组大小差异明显,但植物ARF数量与其基因组大小无直接关联。
系统发育分析为解析物种进化关系提供了重要依据[23]。本研究通过构建金线莲与拟南芥、玉米、水稻4个物种ARF蛋白的系统进化树,揭示金线莲ArARF家族的进化特征,其成员可划分为6个亚族,其中Class Ⅲ亚族是该家族中成员数量最多的分支,含19个ArARF成员。通过染色体定位分析发现:35个ArARF基因分布于金线莲的14条染色体上,其中ArARF13、ArARF14、ArARF15、ArARF16、ArARF18、ArARF19聚集于11号染色体形成密集基因簇。这一现象在兰科植物中较为罕见,但与小麦Triticum aestivum TaARF23-A基因簇的串联重复[24]模式相似。因此该基因簇的形成可能源于多次串联重复事件。已有研究显示:在彩色马铃薯Solanum tuberosum中,与拟南芥AtARF10、AtARF16、AtARF17同属Class Ⅲ亚族的StARF17-2、StARF18、StARF22-6基因已被证实参与花青素合成调控[25]。据此推测,金线莲11号染色体上的Class Ⅲ亚族ARF基因簇,或许在类原球茎发育过程中承担调控花青素合成的关键功能。
-
本研究发现:不同ArARF在不同生长阶段的表达量存在差异,表明其可能在金线莲类原球茎发育中发挥不同生物学功能[26]。金线莲类原球茎的发育是高度依赖生长素信号调控的复杂过程,ArARF在此过程中发挥核心调控作用。转录组数据显示:ArARF在类原球茎发育中期(10~13 d)表达上调,与细胞分裂和分化高峰期一致,推测其通过增强生长素信号响应推动器官发生。这一调控特征与兰科植物的保守发育机制相呼应。有研究表明:蝴蝶兰属Phalaenopsis植物生殖程序的不同阶段与特定细胞功能关联,卵巢发育早期细胞分裂相关基因活跃,且调控心皮、胚珠发育的AG类、ANT类、CUC类等转录因子[27]在过渡前子房组织中富集,这些调控因子组合对胚珠发育至关重要,且在进化上具有保守性。据此推测,金线莲ARF基因可能通过参与此类保守的转录调控网络,在类原球茎发育的细胞分裂与器官发生阶段发挥调控作用,这为解析兰科植物再生相关的保守调控机制提供了线索[28]。
从基因结构与调控特征来看,11号染色体上多个ArARF基因形成密集基因簇,推测这类串联重复集群可能通过共享生长素响应元件实现表达同步性,在类原球茎上半部分“芽”组织或下半部分膨大区分别参与顶端分生组织形成或增殖分化调控。此外,基因簇内部分成员存在Aux/IAA结合结构域缺失等功能分化特征,可能对不同发育阶段的细胞命运调控起到细化作用[29],这一结构与表达的协同模式为ARF基因适应类原球茎特化发育提供了支撑。
-
金线莲ArARF蛋白的氨基酸长度、分子量呈明显差异,且多数定位于细胞核,该家族可划分为6个进化亚族,其中Class Ⅲ亚族成员数量最多。金线莲11号染色体上的ArARF基因簇由Class Ⅲ亚族成员组成,推测源于串联重复事件,这一发现为兰科植物基因家族进化模式研究提供新的参考视角。ArARF24、ArARF32在金线莲类原球茎“芽”组织中呈特异性高表达,提示其与茎叶器官形成直接相关。
Identification and expression analysis of the ARF gene family in Anoectochilus roxburghii
-
摘要:
目的 ARF转录因子是调控植物器官发生与形态建成的关键基因家族。解析金线莲Anoectochilus roxburghii类原球茎分化发育的分子基础,探究该家族在金线莲及其类原球茎生长发育中的调控机制,为金线莲离体繁育与分子育种提供理论依据。 方法 基于金线莲全基因组及类原球茎转录组数据,通过生物信息学方法鉴定出35个金线莲ARF (ArARF)基因家族成员(ArARF1~ArARF35),并系统分析其理化性质、系统进化、基因结构、染色体分布及在类原球茎中的表达模式。 结果 ArARF蛋白长度为179~1 163个氨基酸,分子量为20.46~129.45 kDa,多数定位于细胞核;系统进化分析将其分为6个亚族,其中Class Ⅲ成员最多(19个),且11号染色体上的ArARF13、ArARF14、ArARF15、ArARF16、ArARF18、ArARF19形成基因簇,推测源于串联重复事件;基因结构与保守基序分析表明:35个ArARF基因家族成员均含B3结构域,Class Ⅱ、Class Ⅲ成员缺失Aux/IAA结构域,可能与功能特化相关。表达模式分析显示:在10、13、20 d时,ArARF24、ArARF32类原球茎上半部分“芽”组织的表达量明显高于下半部分膨大区,推测其与茎叶形成有关。 结论 本研究在全基因组水平鉴定到35个金线莲ArARF成员,该家族分为6个亚族,11号染色体存在串联重复形成的Class Ⅲ基因簇;ArARF24、ArARF32在类原球茎芽组织特异高表达,参与茎叶分化。图9表2参29 Abstract:Objective ARF transcription factors constitute a key gene family regulating plant organogenesis and morphogenesis. This study aims to dissect the molecular basis underlying protocorm-like body differentiation and development in Anoectochilus roxburghii, explore the regulatory mechanisms of this gene family governing the growth and development of A. roxburghii and its protocorm-like bodies, and provide a theoretical foundation for A. roxburghii in vitro propagation and molecular breeding. Method Based on the whole-genome and transcriptome data of protocorm-like bodies of A. roxburghii, 35 ARF (ArARF) gene family members (ArARF1−ArARF35) were identified using bioinformatics methods. Their physicochemical properties, phylogenetic evolution, gene structure, chromosomal distribution, and expression patterns in protocorm-like bodies were systematically analyzed. Result The ArARF proteins range in length from 179 to 1 163 amino acids, with a molecular weight of 20.46−129.45 kDa. Most were localized in the nucleus. Phylogenetic analysis divided them into 6 subfamilies, among which Class Ⅲ had the most members (19). Additionally, ArARF13, ArARF14, ArARF15, ArARF16, ArARF18, and ArARF19 on chromosome 11 formed a gene cluster, presumably derived from tandem duplication events. Gene structure and conserved motif analysis showed that all 35 ArARF gene family members contained the B3 domain, while members of Class Ⅱ and Class Ⅲ lacked the Aux/IAA domain, which might be related to functional specialization. Expression pattern analysis revealed that ArARF24 and ArARF32 exhibited significantly higher expression levels in the upper “bud” tissue of protocorm-like bodies at 10, 13, and 20 d compared to the lower swollen region, suggesting that they may be involved in stem and leaf formation. Conclusion A total of 35 ArARF members were identified at the whole-genome level in A. roxburghii. This gene family was divided into 6 subfamilies, and a Class Ⅲ gene cluster formed by tandem duplication was located on chromosome 11. ArARF24 and ArARF32 were specifically highly expressed in the bud tissues of protocorm-like bodies and participated in stem and leaf differentiation. [Ch, 9 fig. 2 tab. 30 ref.] -
图 1 金线莲ArARF蛋白家族系统进化树
Figure 1 Phylogenetic tree of ArARF protein family in A. roxburghii
图 2 金线莲ArARF蛋白保守基序的分布(A)和基因结构(B)
Figure 2 Conserved motif distribution (A) and gene structures (B) of ArARF proteins in A. roxburghii
图 4 金线莲ArARF蛋白的二级结构预测
Figure 4 Secondary structure prediction of ArARF proteins in A. roxburghii
图 5 金线莲ArARF蛋白的三级结构预测
Figure 5 Tertiary structure prediction of ArARF proteins in A. roxburghii
图 6 金线莲ArARF基因在染色体上的分布
Figure 6 Distribution of ArARF genes on chromosomes in A. roxburghii
图 7 金线莲ArARF基因家族启动子区顺式作用元件分析
Figure 7 Analysis of cis-acting elements in promoters of ArARF gene family in A. roxburghii
图 8 金线莲ArARF启动子顺式作用元件
Figure 8 The cis-acting element in the promoters region of ArARF in A. roxburghii
图 9 ArARF基因在类原球茎不同生长阶段和部位的相对表达量
Figure 9 Relative expression levels of ArARF in different growth stages and parts of protocorm-like bodies
表 1 ArARF基因RT-qPCR引物序列
Table 1. Primer sequences for RT-qPCR of ArARF
基因名称 正向引物 (5′→3′) 反向引物 (5′→3′) ArARF3 ATGAATGGAAGAAGCCTGAGATTGC GCTGACCTGCCTGCTCTGAAT ArARF4 GCATAGCAGTTCCACCAGAAGTAGG TCATCGCCAACCAGCATCATATCG ArARF10 ATGCTTGTGCTGGTGGAATGGT AGGCTTGTCTTGCGAGTCTGAG ArARF24 CTCCTCCTCCTCCTCCTCCTCATA CGGACACGCTTAGTCACGGTAG ArARF32 AAGCACGCAACCAACACAATTCTT AACAGAACTGAATCGCCAGCCTTA  下载: 导出CSV
表 2 ArARF蛋白理化特性
Table 2. Protein physiochemical properties of ArARF
基因 氨基酸数/个 分子量/kDa 等电点 脂溶指数 亲水系数 保守结构域 ArARF1 729 79.59 8.56 65.62 −0.568 B3、PHA03247 ArARF2 662 73.29 5.68 71.31 −0.457 B3、Auxin_resp、Aux_IAA ArARF3 650 73.53 6.00 74.66 −0.506 B3、Auxin_resp、Aux_IAA ArARF4 649 73.21 6.34 75.07 −0.480 B3、Auxin_resp、Aux_IAA ArARF5 857 94.90 6.29 69.61 −0.490 B3、Auxin_resp、Aux_IAA ArARF6 844 94.23 5.98 65.94 −0.541 B3、Auxin_resp、Aux_IAA ArARF7 833 92.79 6.50 73.93 −0.481 B3、Auxin_resp、Aux_IAA ArARF8 695 77.09 6.28 76.13 −0.371 B3、Auxin_resp ArARF9 726 79.39 6.20 77.59 −0.343 B3、Auxin_resp ArARF10 714 79.10 6.85 69.92 −0.436 B3、Auxin_resp ArARF11 658 73.71 6.86 75.71 −0.397 B3、Auxin_resp ArARF12 538 58.99 6.55 80.24 −0.129 B3、Auxin_resp ArARF13 300 33.26 8.19 68.33 −0.284 B3 ArARF14 399 44.20 6.86 74.34 −0.245 B3、Auxin_resp ArARF15 403 44.79 8.05 73.90 −0.321 B3、Auxin_resp ArARF16 450 49.64 8.51 70.93 −0.311 B3、Auxin_resp ArARF17 479 53.89 9.45 72.28 −0.392 B3、Auxin_resp ArARF18 293 33.22 8.98 73.65 −0.377 B3 ArARF19 179 20.46 5.38 106.26 0.084 B3 ArARF20 244 27.24 8.83 58.89 −0.572 B3 ArARF21 913 100.66 7.19 71.61 −0.554 B3、zf-CW ArARF22 881 97.21 8.10 63.47 −0.646 B3、zf-CW ArARF23 315 35.01 5.96 69.71 −0.423 B3、AP2 ArARF24 374 41.07 7.76 63.18 −0.558 B3 ArARF25 342 37.17 9.48 79.27 −0.382 B3、AP2 ArARF26 349 38.71 8.35 57.88 −0.674 B3 ArARF27 334 36.29 9.60 69.85 −0.420 B3、AP2 ArARF28 226 25.62 4.93 94.96 −0.127 B3 ArARF29 906 100.84 5.84 79.72 −0.446 B3、Auxin_resp、Aux_IAA ArARF30 802 90.26 6.03 74.01 −0.495 B3、Auxin_resp ArARF31 796 89.47 5.62 75.80 −0.430 B3、Auxin_resp、Aux_IAA ArARF32 1082 121.92 5.79 80.73 −0.379 B3、Auxin_resp、Aux_IAA ArARF33 217 25.14 9.98 77.33 −0.841 RRM_NIFK、PABP- 1234 ArARF34 1053 118.67 5.88 77.43 −0.480 B3、Auxin_resp、Aux_IAA ArARF35 1163 129.45 6.33 77.76 −0.528 B3、Auxin_resp、Aux_IAA
下载: 导出CSV
-
[1] 杨立, 程寅胜, 伍涛, 等. 南方四种砂梨果实营养及抗氧化活性成分比较分析[J]. 湖北农业科学, 2021, 60(24): 120−123. YANG Li, CHENG Yinsheng, WU Tao, et al. Comparative analysis of the nutritional composition and antioxidant properties of four sand pear fruits in area of southern China[J]. Hubei Agricultural Sciences, 2021, 60(24): 120−123. DOI: 10.14088/j.cnki.issn0439-8114.2021.24.029. [2] 李璐璐, 朱志彬, 李水坤, 等. 金线莲中金线莲苷及其差向异构体和内源激素测定[J]. 浙江农林大学学报, 2025, 42(2): 230−238. LI Lulu, ZHU Zhibin, LI Shuikun, et al. Detection of kinsenoside and it’s isomer, endogenous hormones in Anoectochilus roxburghii[J]. Journal of Zhejiang A&F University, 2025, 42(2): 230−238. DOI: 10.11833/j.issn.2095-0756.20240435. [3] 但英, 陈若, 何德, 等. 旱柳浸提物对金线莲组培苗生根的影响[J]. 安徽农业科学, 2023, 51(11): 25−27, 31. DAN Ying, CHEN Ruo, HE De, et al. Effect of Salix mandshurica extract on rooting of Anoectochilus roxburghii tissue culture seedlings[J]. Journal of Anhui Agricultural Sciences, 2023, 51(11): 25−27, 31. DOI: 10.3969/j.issn.0517-6611.2023.11.007. [4] 曾碧玉. 金线莲多糖的分离纯化及其生物活性研究[D]. 福州: 福建农林大学, 2017. ZENG Biyu. Isolation, Purification and Bioactivities of Polysaccharides from Anoectochilus roxburghii[D]. Fuzhou: Fujian Agriculture and Forestry University, 2017. DOI: 10.27018/d.cnki.gfjnu.2017.000281. [5] 黄锦春, 万思琦, 陈扬, 等. 利用ISSR与SRAP分子标记分析金线莲种质资源遗传多样性[J]. 浙江农林大学学报, 2023, 40(1): 22−29. HUANG Jinchun, WAN Siqi, CHEN Yang, et al. Genetic diversity of Anoectochilus roxburghii based on ISSR and SRAP molecular markers[J]. Journal of Zhejiang A&F University, 2023, 40(1): 22−29. DOI: 10.11833/j.issn.2095-0756.20220473. [6] 徐双双, 李怡清, 冯慧敏, 等. ‘红霞’金线莲组培培养基配方优化技术研究[J]. 安徽农学通报, 2021, 27(24): 15−17. XU Shuangshuang, LI Yiqing, FENG Huimin, et al. Study on the formulation optimization technology of‘Hongxia’ Anoectochilus roxburghii tissue culture medium[J]. Anhui Agricultural Science Bulletin, 2021, 27(24): 15−17. DOI: 10.3969/j.issn.1007-7731.2021.24.005. [7] ZENG Danqi, SI Can, ZHANG Mingze, et al. ERF5 enhances protocorm-like body regeneration via enhancement of STM expression in Dendrobium orchid[J]. Journal of Integrative Plant Biology, 2023, 65(9): 2071−2085. DOI: 10.1111/jipb.13534. [8] 徐成成, 刘锦, 吴恩, 等. 基于组织培养的木本植物器官发生型再生研究进展[J]. 浙江农林大学学报, 2026, 43(3): 671−680. XU Chengcheng, LIU Jin, WU En, et al. Research progress on organogenic regeneration in woody plants based on tissue culture[J]. Journal of Zhejiang A&F University, 2026, 43(3): 671−680. DOI: 10.11833/j.issn.2095-0756.20250455. [9] HU Xiaomei, XU Lin. Transcription factors WOX11/12 directly activate WOX5/7 to promote root primordia initiation and organogenesis[J]. Plant Physiology, 2016, 172(4): 2363−2373. DOI: 10.1104/pp.16.01067. [10] CHEN Jing, WANG Shijie, WU Fengling, et al. Genome-wide identification and functional characterization of auxin response factor (ARF) genes in eggplant[J]. International Journal of Molecular Sciences, 2022, 23(11): 6219. DOI: 10.3390/ijms23116219. [11] LIU Ying, MA Nan, GAO Ziyong, et al. Systematic analysis of the ARF gene family in Fagopyrum dibotrys and its potential roles in stress tolerance[J]. Genetica, 2024, 152(4/6): 159−178. DOI: 10.1007/s10709-024-00214-3. [12] LI Yonghui, HAN S, QI Yanhua. Advances in structure and function of auxin response factor in plants[J]. Journal of Integrative Plant Biology, 2023, 65(3): 617−632. DOI: 10.1111/jipb.13392. [13] 倪明阳, 朱媛媛, 付宁宁, 等. 闽楠PHT基因家族鉴定及在低磷胁迫下的表达分析[J]. 浙江农林大学学报, 2026, 43(3): 486−495. NI Mingyang, ZHU Yuanyuan, FU Ningning, et al. Identification of PHT gene family and expression analysis under low phosphorus stress in Phoebe bournei[J]. Journal of Zhejiang A&F University, 2026, 43(3): 486−495. DOI: 10.11833/j.issn.2095-0756.20250312. [14] 赵昱琳, 王琪, 彭文月, 等. 人参Trihelix转录因子家族基因鉴定与表达模式分析[J]. 中国中药杂志, 2024, 49(14): 3758−3768. ZHAO Yulin, WANG Qi, PENG Wenyue, et al. Identification and expression pattern analysis of Trihelix transcription factor family genes of ginseng[J]. China Journal of Chinese Materia Medica, 2024, 49(14): 3758−3768. DOI: 10.19540/j.cnki.cjcmm.20240317.104. [15] 詹鹏, 钟祖昌, 向妮艳, 等. 红花NAC基因家族鉴定及干旱胁迫响应分析[J]. 中国中药杂志, 2022, 47(20): 5520−5529. ZHAN Peng, ZHONG Zuchang, XIANG Niyan, et al. Identification of Carthamus tinctorius NAC gene family and analysis of drought stress response[J]. China Journal of Chinese Materia Medica, 2022, 47(20): 5520−5529. DOI: 10.19540/j.cnki.cjcmm.20220514.104. [16] 邱文敏, 陆铸畴, 樊娜, 等. 伴矿景天SpMTP基因家族鉴定及在镉胁迫下的表达分析[J]. 浙江农林大学学报, 2026, 43(4): 733−743. QIU Wenmin, LU Zhuchou, FAN Na, et al. Genome-wide identification and expression patterns in response to cadmium stress of SpMTP gene family in Sedum plumbizincicola[J]. Journal of Zhejiang A&F University, 2026, 43(4): 733−743. DOI: 10.11833/j.issn.2095-0756.20260147. [17] 张杰, 沈芮先, 裴弯, 等. 桃PpILR1基因调控分枝角度的功能解析[J]. 河南农业大学学报, 2023, 57(6): 958−966. ZHANG Jie, SHEN Ruixian, PEI Wan, et al. Function analysis of PpILR1 gene regulating branch angle in peach[J]. Journal of Henan Agricultural University, 2023, 57(6): 958−966. DOI: 10.16445/j.cnki.1000-2340.20231019.001. [18] JIANG Wenbo, XIA Yaying, SU Xiaojia, et al. ARF2 positively regulates flavonols and proanthocyanidins biosynthesis in Arabidopsis thaliana[J]. Planta, 2022, 256(2): 44. DOI: 10.1007/s00425-022-03936-w. [19] 孙亭亭, 张磊, 陈乐, 等. 普通烟草ARF基因家族序列的鉴定与表达分析[J]. 植物遗传资源学报, 2016, 17(1): 162−168. SUN Tingting, ZHANG Lei, CHEN Le, et al. Identification and expression analysis of the ARF gene family in Nicotiana tabacum[J]. Journal of Plant Genetic Resources, 2016, 17(1): 162−168. DOI: 10.13430/j.cnki.jpgr.2016.01.024. [20] QIN Qingqing, LI Guangyao, JIN Lian, et al. Auxin response factors (ARFs) differentially regulate rice antiviral immune response against rice dwarf virus[J]. PLoS Pathogens, 2020, 16(12): e1009118. DOI: 10.1371/journal.ppat.1009118. [21] van HA C, LE D T, NISHIYAMA R, et al. The auxin response factor transcription factor family in soybean: genome-wide identification and expression analyses during development and water stress[J]. DNA Research, 2013, 20(5): 511−524. DOI: 10.1093/dnares/dst027. [22] WAN Sibao, LI Weili, ZHU Yueying, et al. Genome-wide identification, characterization and expression analysis of the auxin response factor gene family in Vitis vinifera[J]. Plant Cell Reports, 2014, 33(8): 1365−1375. DOI: 10.1007/s00299-014-1622-7. [23] DAI Wei, ZHENG Haozhi, XU Menghan, et al. Comparative analysis of the chloroplast genomes of the Melliodendron (Styracaceae) species: providing insights into molecular evolution and phylogenetic relationships[J]. International Journal of Molecular Sciences, 2025, 26(1): 177. DOI: 10.3390/ijms26010177. [24] 谭丹, 陈家婷, 郜钰, 等. 小麦穗型相关生长素通路基因发掘及TaARF23-A与小穗数关联分析[J]. 作物学报, 2024, 50(2): 506−513. TAN Dan, CHEN Jiating, GAO Yu, et al. Discovery of auxin pathway genes involving spike type and association analysis between TaARF23-A and spikelet number in wheat[J]. Acta Agronomica Sinica, 2024, 50(2): 506−513. DOI: 10.3969/j.issn.1005-9903.2002.04.015. [25] 马杰茹, 武小娟, 王沛捷, 等. 彩色马铃薯ARF基因家族的鉴定与表达分析[J]. 中国农业大学学报, 2025, 30(7): 105−118. MA Jieru, WU Xiaojuan, WANG Peijie, et al. Screening and expression analysis of ARF gene related to anthocyanin synthesis in colored potatos[J]. Journal of China Agricultural University, 2025, 30(7): 105−118. DOI: 10.11841/j.issn.1007-4333.2025.07.09. [26] 祝甜甜, 何小琪, 史靖慧, 等. 大豆GmROP基因家族的鉴定及表达分析[J]. 扬州大学学报(农业与生命科学版), 2025, 46(3): 11−20. ZHU Tiantian, HE Xiaoqi, SHI Jinghui, et al. Identification and expression analysis of soybean GmROP gene family[J]. Journal of Yangzhou University (Agricultural and Life Science Edition), 2025, 46(3): 11−20. DOI: 10.16872/j.cnki.1671-4652.2025.03.002. [27] GALBIATI F, SINHA ROY D, SIMONINI S, et al. An integrative model of the control of ovule primordia formation[J]. The Plant Journal, 2013, 76(3): 446−455. DOI: 10.1111/tpj.12309. [28] FANG S C, CHEN J C, WEI Miaoju. Protocorms and protocorm-like bodies are molecularly distinct from zygotic embryonic tissues in Phalaenopsis aphrodite[J]. Plant Physiology, 2016, 171(4): 2682−2700. DOI: 10.1104/pp.16.00841. [29] 司马晓娇, 郑炳松. 植物生长素原初响应基因Aux/IAA研究进展[J]. 浙江农林大学学报, 2015, 32(2): 313−318. SIMA Xiaojiao, ZHENG Bingsong. Advances in primary auxin-responsive Aux/IAA gene family: a review[J]. Journal of Zhejiang A&F University, 2015, 32(2): 313−318. DOI: 10.11833/j.issn.2095-0756.2015.02.021. -

-
链接本文:
https://zlxb.zafu.edu.cn/article/doi/10.11833/j.issn.2095-0756.20260123
 点击查看大图
计量
- 文章访问数: 0
- HTML全文浏览量: 2
- PDF下载量: 0
- 被引次数: 0
