





-
森林群落作为生态系统的主体,在维持区域生态平衡、水源涵养、生物多样性保育及碳汇功能等方面具有重要作用[1]。其中亚热带群落类型丰富、结构复杂,具有优越的水热条件与丰富的物种组成,并随地形与气候梯度变化形成明显的植被类型分异[2]。常绿-落叶阔叶混交林、常绿阔叶林与针阔混交林作为亚热带森林的主要林分类型,不仅在空间上呈过渡性与镶嵌性分布格局,也在时间尺度上反映了气候变迁与植被演替的动态过程。浙江东南部属中亚热带湿润季风气候,水热条件优越,是常绿阔叶林分布的典型区域[3]。然而,受长期人类活动干扰,该地区原生性常绿阔叶林多已退化为次生林或混交林[4]。对现存森林植被结构特征进行研究,对揭示其演替机制、指导森林保护与修复具有重要意义。
森林演替过程中,物种组成、径级分布、生态位及种间关系是判断其演替特征与稳定性的关键指标[5]。物种组成能够反映群落对环境过滤与干扰历史的综合响应,并指示优势种的形成与替代过程,从而揭示群落潜在的演替方向与结构演变趋势。HE等[6]认为随着演替推进,群落结构逐渐复杂化,物种多样性及功能分化程度提高,种间关系也由简单竞争转向多维度的互补与协同,体现生态系统对资源利用效率与抗干扰能力的增强。盘远方等[7]在研究中发现径级结构作为表征种群更新与生长动态的核心指标,可用于评估森林的年龄结构与更新连续性:小径级个体占优势通常意味着更新补充充分、群落处于动态维持状态,而大径级个体匮乏则可能暗示历史扰动导致的结构重置或演替尚未达到成熟阶段。HARDY等[8]、徐锦海等[9]则认为生态位特征可揭示物种资源利用策略,宽生态位物种环境适应性强,具竞争优势;窄生态位物种则多依赖特定生境,对环境变化较为敏感。种间联结性则从空间共现角度反映物种间相互依存或排斥关系,正联结通常意味着共同生境偏好、正相互作用或扩散限制导致的聚集分布,而负联结则可能与资源竞争、生境分化或演替阶段差异有关[10]。综合上述指标可系统诊断群落演替状态并预测其发展方向。
台州市西部山区作为浙江东南部重要的生态节点,拥有典型的人为影响后的次生演替植被。已有研究多集中于物种编目与多样性描述,缺乏从结构、生态位与种间关系等多维度的系统量化分析[11]。本研究以台州市黄岩区西部山地植被为研究对象,采用固定样方调查方法,设置了31个20 m×20 m的固定样方,对每个样方的物种组成特征、径级结构、生态位以及种间关系进行分析,探讨该区域森林群落的物种共存机制与演替规律。研究结果将为深入理解区域生物多样性的形成与维持机制提供数据支持,并为森林群落的生态恢复、多样性维持、稳定性提升及树种结构优化等提供科学依据。
-
研究区域位于浙江省东南地区,靠近沿海,东与椒江区、路桥区相连,南与温岭市、乐清市毗连,西接永嘉县,北接临海市。地理坐标介于28°27′~28°41′N,120°47′~121°20′E,区境形状狭长,东西长约55 km,南北宽约25 km,面积为988 km2。该地区属于中亚热带季风气候,年均气温为17.6 ℃(极端高温为38.2 ℃,极端低温为–4.5 ℃),年均降水量为1 523 mm,其中5—9月降水量占全年降水量的68%,年均相对湿度为78%。无霜期长达265 d (初霜日在11月下旬,终霜日在3月上旬)。受台风频繁影响(年均2.3次),最大风速可达32 m·s−1。区域土壤以红壤和黄壤为主,原生植被为中亚热带常绿阔叶林。
-
2023、2024年9—12月,在台州黄岩区自然保护地范围内,选取受人类干扰较少且林分比较均一的区域,设立31个400 m2固定样地(表1)。样地使用RTK测量仪定位,以西南角为原点,从原点出发,横轴(x轴)向正东方向,纵轴(y轴)向正北方向,设置20 m×20 m的正方形,并划分为16个5 m×5 m的小样方,调查每个样方内胸径(DBH)≥1 cm 的木本植物个体的种名、树高、胸径及相对位置。依据研究区森林群落的物种组成与结构特征,将群落分为3类:常绿-落叶阔叶混交林、常绿阔叶林、针阔混交林。
样地 中心点
纬度N/(°)中心点
经度E/(°)海拔/m 优势种 植被类型 样地 中心点
纬度N/(°)中心点
经度E/(°)海拔/m 优势种 植被类型 编号 编号 1 28.685 278 15 121.117 041 60 305.46 木荷 常绿阔叶林 17 28.531 432 57 121.164 078 40 213.46 木荷 针阔混交林 2 28.696 807 18 121.121 234 20 369.11 白栎 常绿落叶
阔叶混交林18 28.531 614 58 121.164 283 30 210.74 木荷 针阔混交林 3 28.687 075 24 121.146 160 50 112.24 柏木 针阔混交林 19 28.531 799 56 121.164 488 60 217.79 木荷 针阔混交林 4 28.519 155 54 120.964 042 50 284.49 少叶黄杞 常绿落叶
阔叶混交林20 28.527 613 56 121.238 331 80 78.45 杉木 针阔混交林 5 28.523 588 70 120.964 625 60 296.82 青冈栎 针阔混交林 21 28.5277 945 65,121.238 492 70 68.08 杉木 针阔混交林 6 28.634 171 67 121.279 002 20 312.77 木荷 常绿阔叶林 22 28.527 976 23 121.238 653 50 60.58 杉木 针阔混交林 7 28.629 007 71 121.278 936 90 426.40 青冈栎 针阔混交林 23 28.528 159 62 121.238 814 50 54.07 杉木 针阔混交林 8 28.549 152 17 121.162 193 20 160.74 杉木 针阔混交林 24 28.528 333 15 121.238 975 60 49.43 杉木 针阔混交林 9 28.552 828 82 121.158 197 10 145.55 枫香 针阔混交林 25 28.506 585 27 120.96105460 690.47 木荷 针阔混交林 10 28.682 204 63 121.123 045 40 119.30 木荷 常绿阔叶林 26 28.506 763 49 120.961 234 50 677.72 木荷 针阔混交林 11 28.682 20 76 121.123 2443 132.16 木荷 常绿阔叶林 27 28.506 944 70 120.961 415 60 663.63 木荷 针阔混交林 12 28.682 210 57 121.123 443 20 150.43 木荷 常绿阔叶林 28 28.507 123 25 120.961 595 40 658.49 木荷 针阔混交林 13 28.682 213 53 121.123 642 10 168.54 木荷 常绿阔叶林 29 28.507 305 19 120.961 775 00 651.39 木荷 针阔混交林 14 28.682 216 48 121.123 839 60 168.88 木荷 常绿阔叶林 30 28.549 045 67 121.291 133 80 15.61 桑 常绿阔叶林 15 28.531 074 60 121.163 668 70 213.78 木荷 针阔混交林 31 28.549 303 97 121.291 583 30 15.85 榔榆 常绿落叶
阔叶混交林16 28.531 257 17 121.163 873 60 214.12 木荷 针阔混交林 说明:木荷Schima superba;白栎Quercus fabri;柏木Cupressus funebris;少叶黄杞Engelhardia roxburghiana;青冈栎Cyclobalanopsis glauca;杉木Cunninghamia lanceolata;枫香Liquidambar formosana;桑Morus alba;榔榆Ulmus parvifolia。 Table 1. Permanent plot information
-
重要值是反映物种在群落中重要性的定量指标,用于比较不同群落间某一物种在群落中的重要性,通过重要值分析树种在森林群落中的地位和优势程度,计算公式参考文献[12]。
-
物种多样性指数用于刻画群落的物种多样性,本研究采用4类常用指标:Margalef 指数可以量化群落的物种数量[13];Simpson指数可以评估群落的优势种集中程度[14];Shannon-Wiener 指数可以衡量群落的综合物种多样性水平[15];Pielou指数可以分析群落中物种个体数分布的均匀性[16]。计算公式参见文献[17]。
-
径级结构是反映森林群落种群年龄结构、更新状况与演替阶段的重要指标[18],依据植被径级的调查结果,分为6个等级:Ⅰ级(1 cm≤DBH<5 cm),Ⅱ级(5 cm≤DBH<10 cm),Ⅲ级(10 cm≤DBH<20 cm),Ⅳ级(20 cm≤DBH<30 cm),Ⅴ级(30 cm≤DBH<40 cm),Ⅵ级(DBH≥40 cm)。
-
采用Levins 生态位宽度指数(BL)和Shannon-Wiener生态位宽度(BSW)2种度量方法,并使用Pianka生态位重叠指数($ {O}_{ik} $)评估群落优势种之间的生态位重叠[19]。$ {O}_{ik} $的值域为[0, 1],值越小,生态位重叠度越小,值越大,生态位重叠度越大。
-
采用物种联结性χ2统计量测定种间关联性,以确定实测值与期望值之间偏差的显著程度。以联结系数(AC)检验种间联结强度,对χ2检验结果进一步补充。计算公式参考文献[20]。
χ2检验:
其中,n为总样地数;a为两物种同时出现的样地数;b和c为任一物种单独出现的样地数;d为两物种均未出现的样地数。当2×2 联列表中ad>bc,两物种间为正联结;ad<bc,两物种间为负联结;ad = bc,两物种相互独立。查表可知,若$ {\chi }^{2} $>6.63,则种间联结为极显著(P<0.01),3.84≤$ {\chi }^{2} $<6.63,则种间联结为显著(0.01<P<0.05),$ {\chi }^{2} $<3.84,则种间联结为不显著(P>0.05)。
联结系数(AC):
其中,AC的值域为[−1, 1],AC值越接近−1则种对间联结程度越趋向负联结;AC为0表示种对间没有联结;AC越接近1则种对间联结程度越趋向正联结。
-
根据重要值对样地内优势种进行统计分析,计算每个样方Margalef丰富度指数、Simpson优势度指数、Shannon-Wiener多样性指数和Pielou 均匀度指数,采用KRUSKAL-WALLIS[21]方法分析群落多样性指数差异。采用Pianka生态位重叠指数评估群落优势种之间的生态位重叠,χ2检验与联结系数(AC)分析种间关系,采用Origin 2024绘图。
-
共记录乔本植物47科88属128种,共计6 176株。其中优势物种主要有木荷Schima superba、杉木Cunninghamia lanceolata、青冈栎Cyclobalanopsis glauca、窄基红褐柃Eurya rubiginosa、薄叶山矾 Symplocos anomala、赤楠Syzygium buxifolium等。优势科为杜鹃花科Ericaceae、壳斗科Fagaceae,其次是山茶科Theaceae、山矾科Symplocaceae等。优势属为冬青属Ilex、山矾属Symplocos,其次是山茶属Camellia、杜鹃花属Rhododendron等。
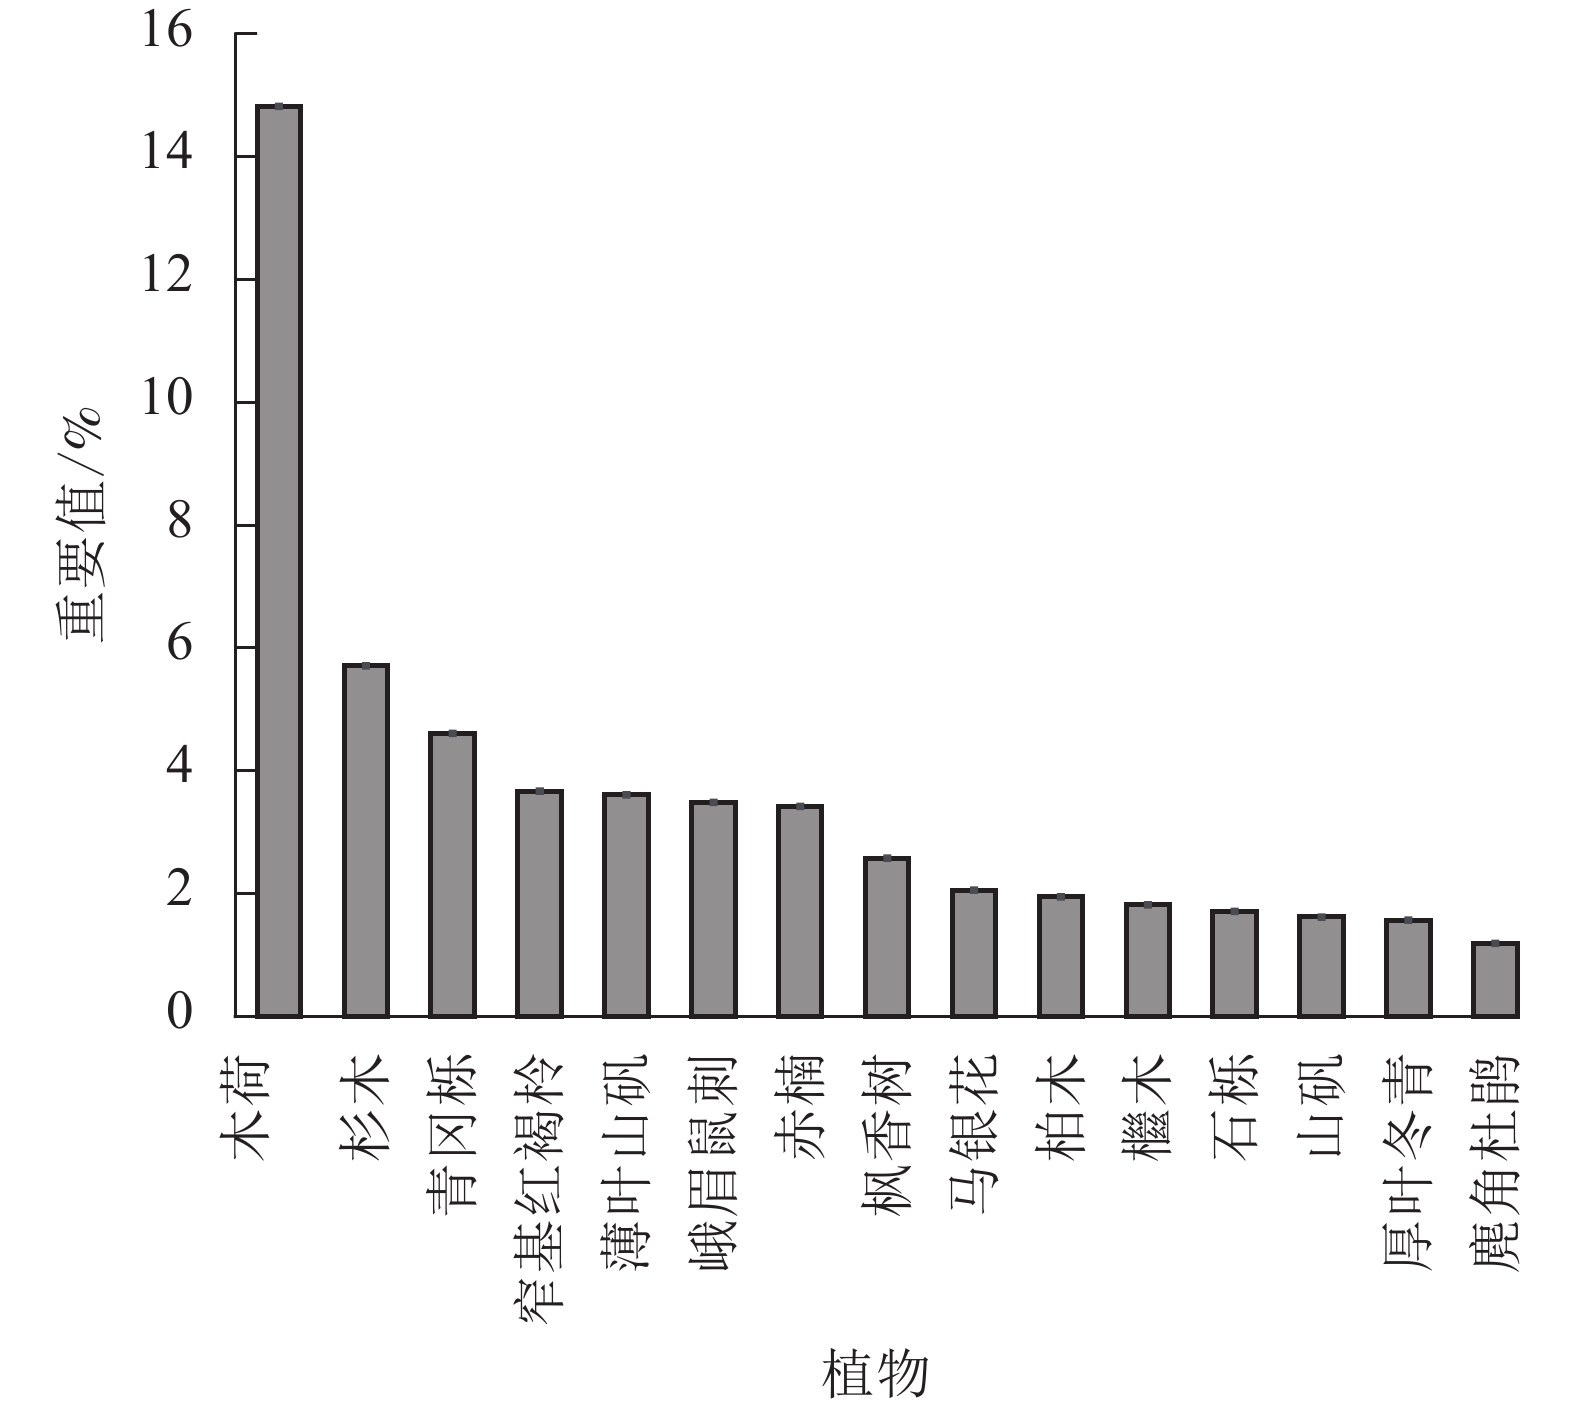
木荷重要值为14.83%,是主要优势种,其次是杉木、青冈栎、窄基红褐柃、薄叶山矾、赤楠等,重要值为3.42%~3.67% (图1)。其余树种如赤楠、檵木Loropetalum chinense等10余种的重要值均低于3%,属于亚乔木层和灌木层的主要物种。Margalef 丰富度、Simpson优势度、Shannon-Wiener多样性指数在3类群落间均不存在显著差异,而Pielou均匀度指数则存在显著差异(表2)。常绿-落叶阔叶混交林 Pielou 均匀度指数显著高于亚热带常绿阔叶林和亚热带针阔混交林(P<0.05),而亚热带常绿阔叶林与亚热带针阔混交林之间差异不显著。
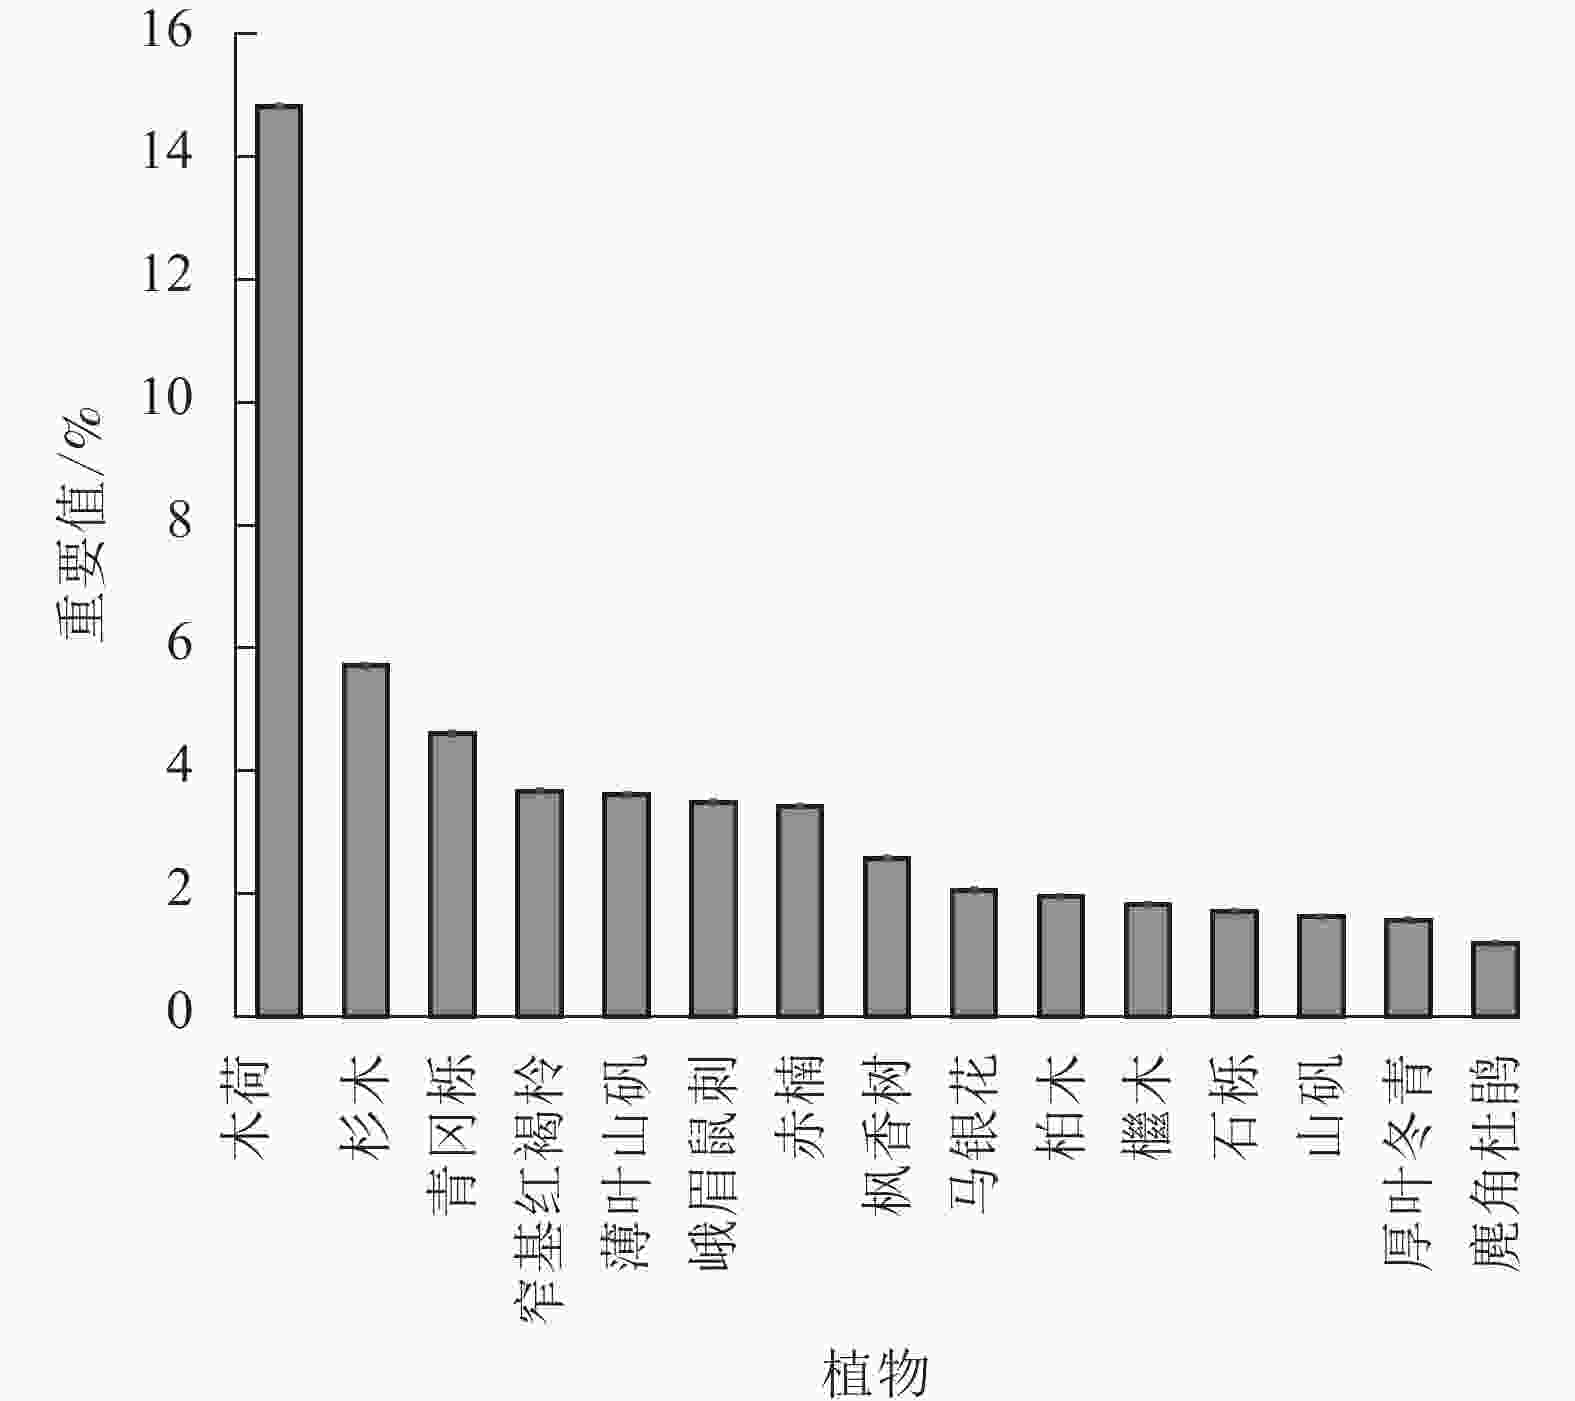
Figure 1. Top 15 species by relative importance value in the forest
林分 Margalef
丰富度Simpson
优势度Shannon-
Wiener多样性Pielou
均匀度亚热带常绿-
落叶阔叶混交林3.39±1.86 0.84±0.07 2.09±0.64 0.83±0.03 亚热带常绿
阔叶林5.77±1.57 0.86±0.07 2.48±0.46 0.71±0.09 亚热带针阔
混交林4.54±1.39 0.85±0.02 2.30±0.27 0.72±0.04 P 0.195 0.508 0.351 0.049* 说明:数据为平均值±标准差;*表示3种林分存在显著差异(P<0.05)。 Table 2. Species diversity of different stand communities in evergreen broad-leaved forests
-
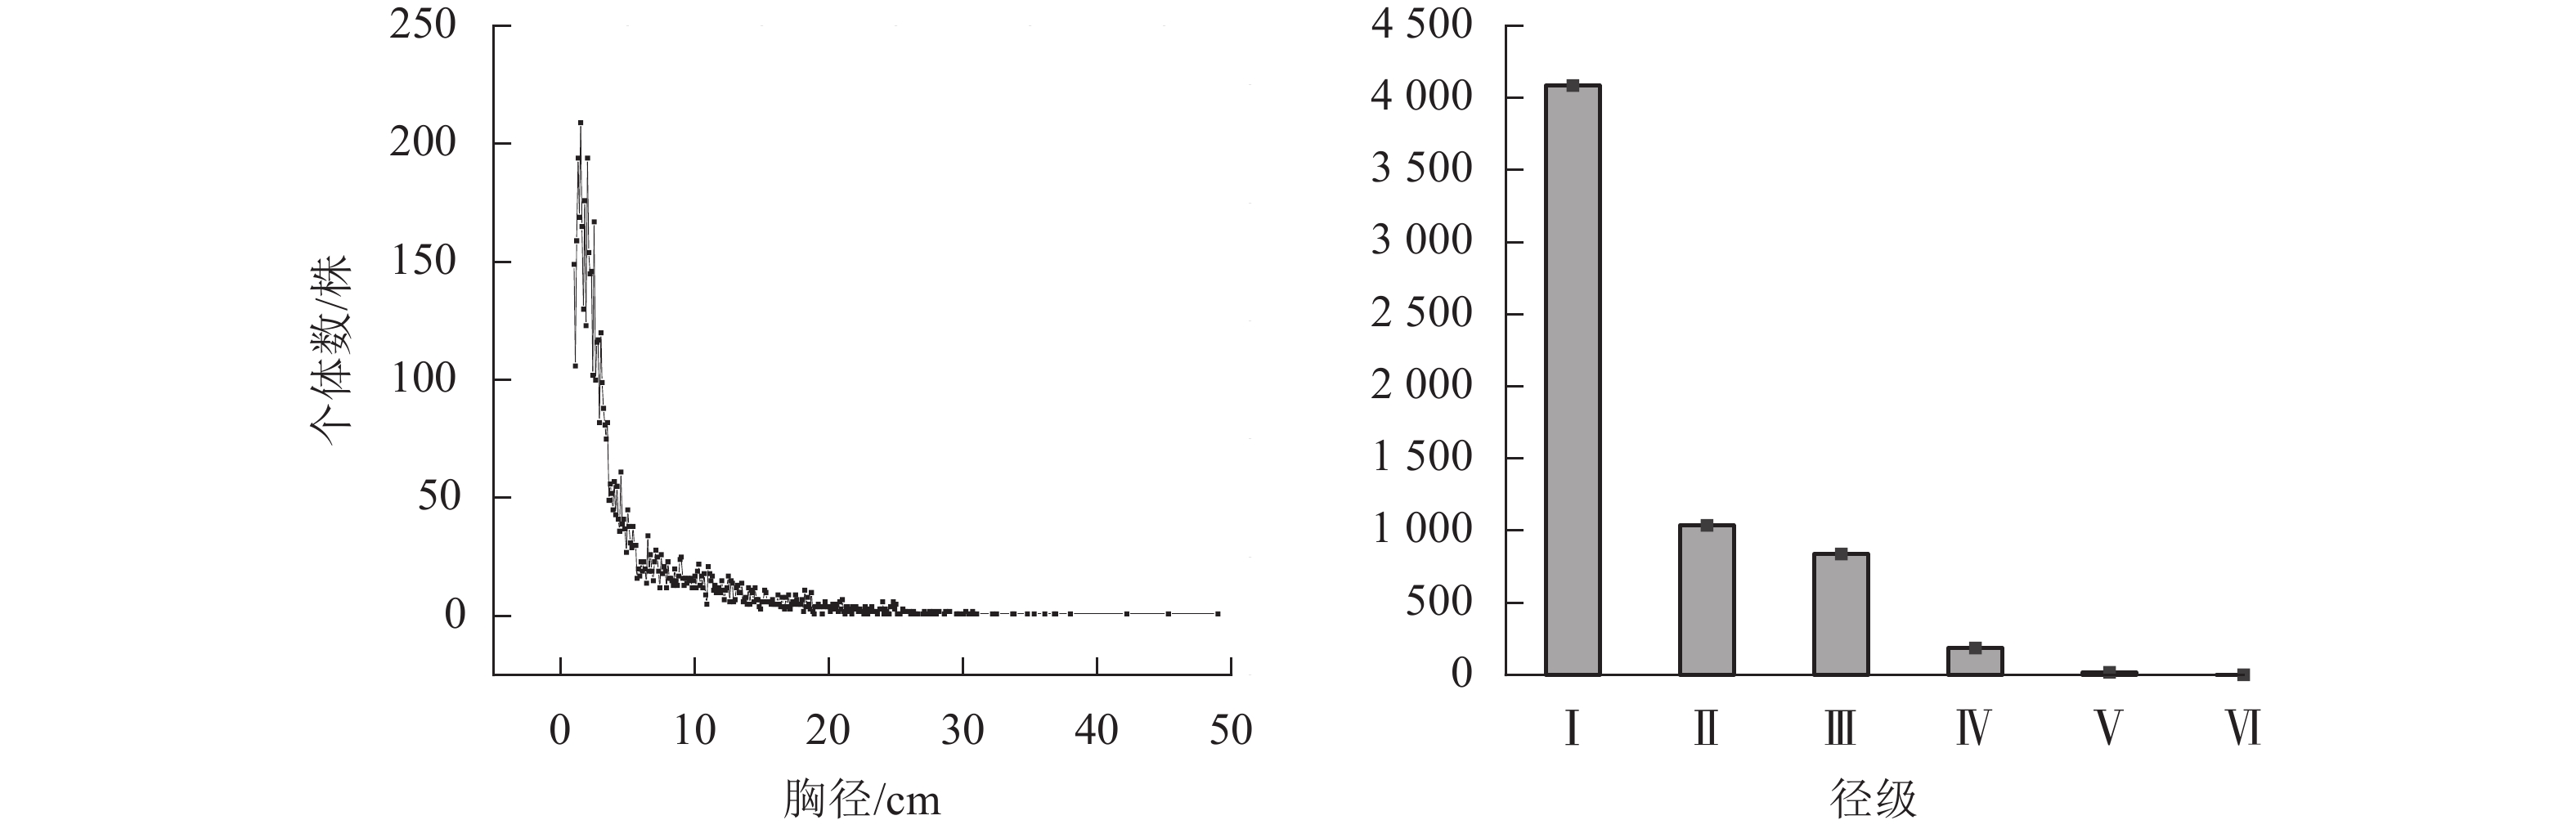
径级结构总体呈现倒“J”型分布,主要集中于小径级个体(图2)。Ⅰ级(1 cm≤DBH<5 cm)共有4 087株,远高于其他群落;Ⅱ级(5 cm≤DBH<10 cm)和Ⅲ级(10 cm≤DBH<20 cm)分别为1 039株和840株。Ⅳ级(20 cm≤DBH<30 cm)、Ⅴ级(30 cm≤DBH<40 cm)和Ⅵ级(DBH≥40 cm)分别为188、19和3株。
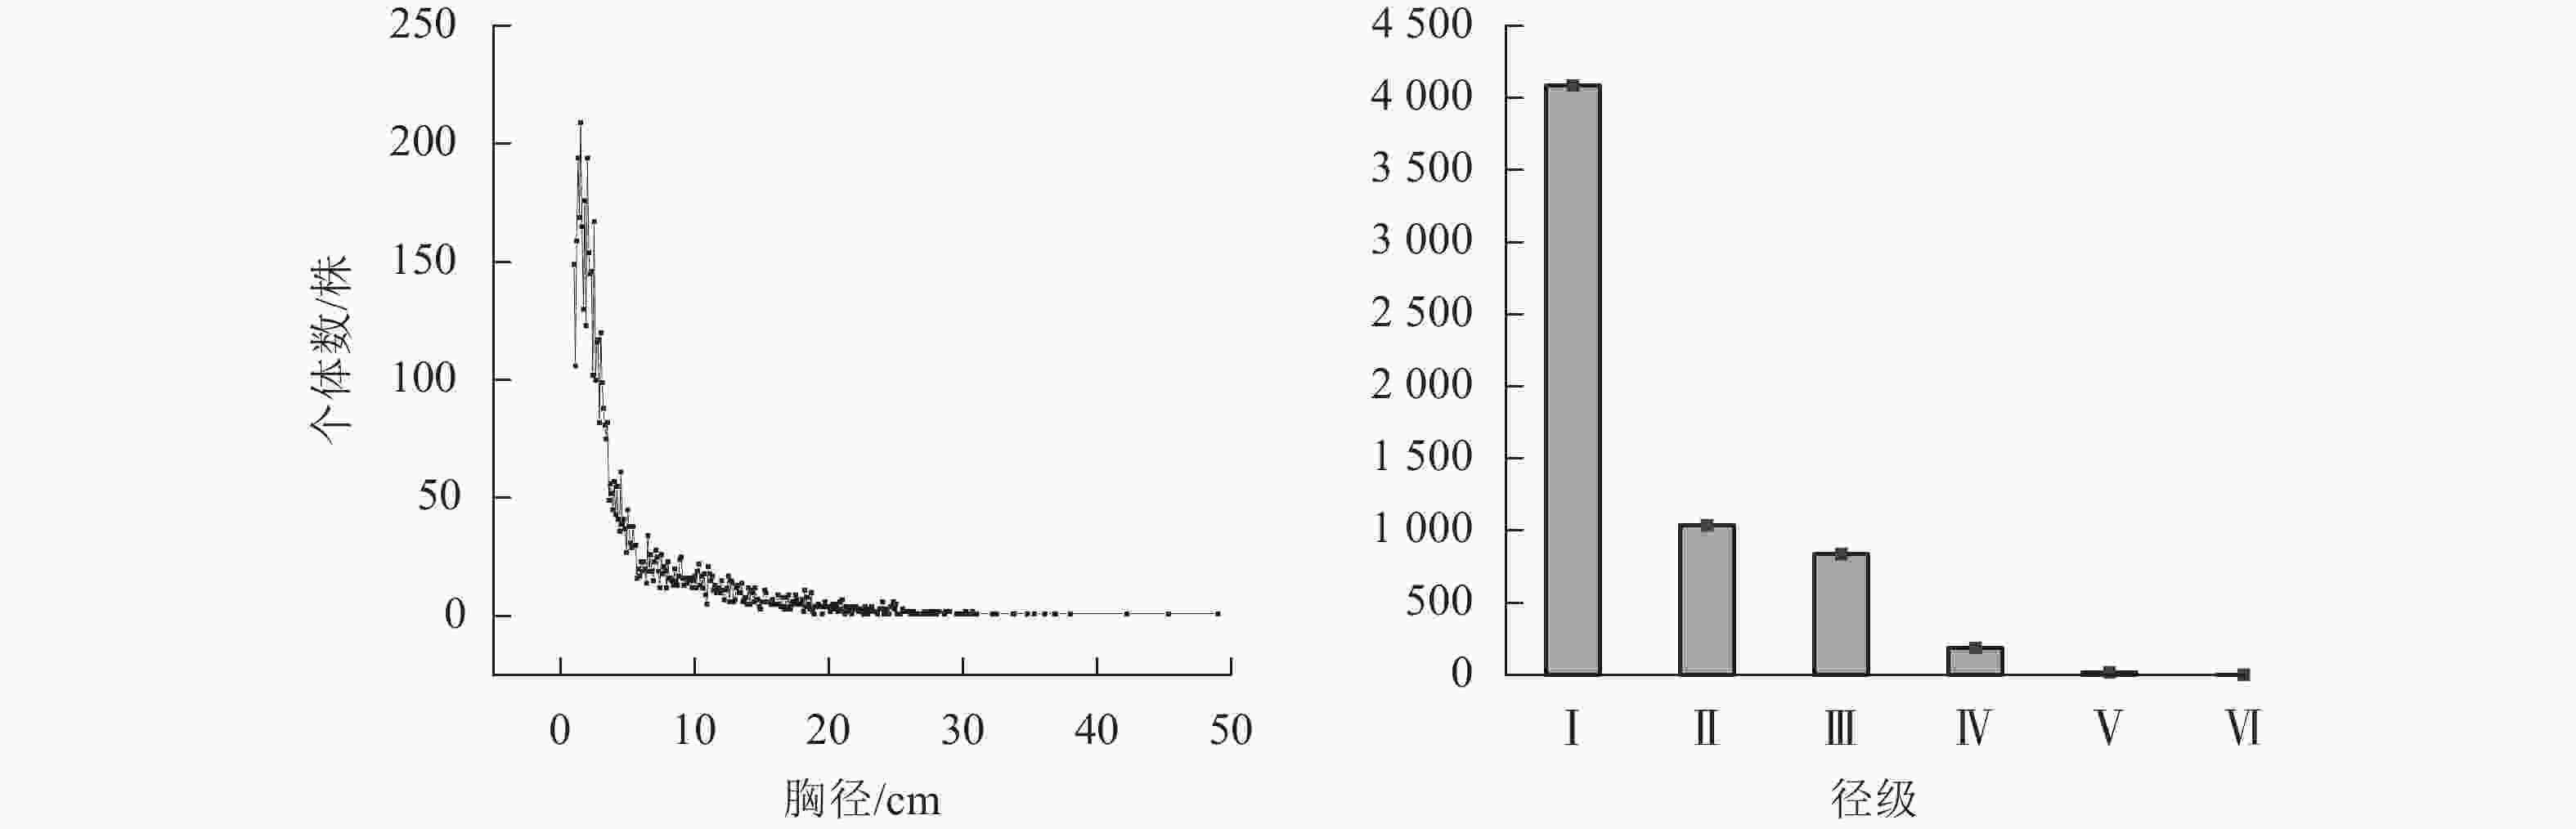
Figure 2. Diameter class distribution of the forest communities
-
表3显示:15个优势种的Levins生态位宽度为2.97~12.62 (均值为7.15),Shannon-Wiener生态位宽度为1.28~2.67 (均值为2.15)。峨眉鼠刺Itea omeiensis与檵木的Shannon-Wiener生态位宽度最高(2.67),木荷、窄基红褐柃次之(2.60~2.66),反映这些物种在资源利用上具有较高的均匀性与适应性;而柏木Cupressus funebris (1.28)与赤楠(1.64) Levins生态位宽度最低,表现出明显的生态专化特征。
物种名 Levins生态
位宽度Shannon-Wiener
生态位宽度物种名 Levins生态
位宽度Shannon-Wiener
生态位宽度木荷Schima superba 10.13 2.66 马银花Rhododendron ovatum 5.36 1.96 杉木Cunninghamia lanceolata 10.01 2.53 柏木Cupressus funebris 2.97 1.28 青冈栎Quercus glauca 7.70 2.39 檵木Loropetalum chinense 11.04 2.67 窄基红褐柃Eurya rubiginosa 9.81 2.60 石栎Lithocarpus glaber 7.41 2.25 薄叶山矾Symplocos anomala 4.66 1.68 山矾Symplocos sumuntia 6.13 2.39 峨眉鼠刺Itea omeiensis 12.62 2.67 厚叶冬青Ilex elmerrilliana 4.15 1.78 赤楠Syzygium buxifolium 3.60 1.64 麂角杜鹃Rhododendron latoucheae 4.26 1.53 枫香树Liquidambar formosana 7.46 2.26 Table 3. Niche breadth of the dominant species in forest communities
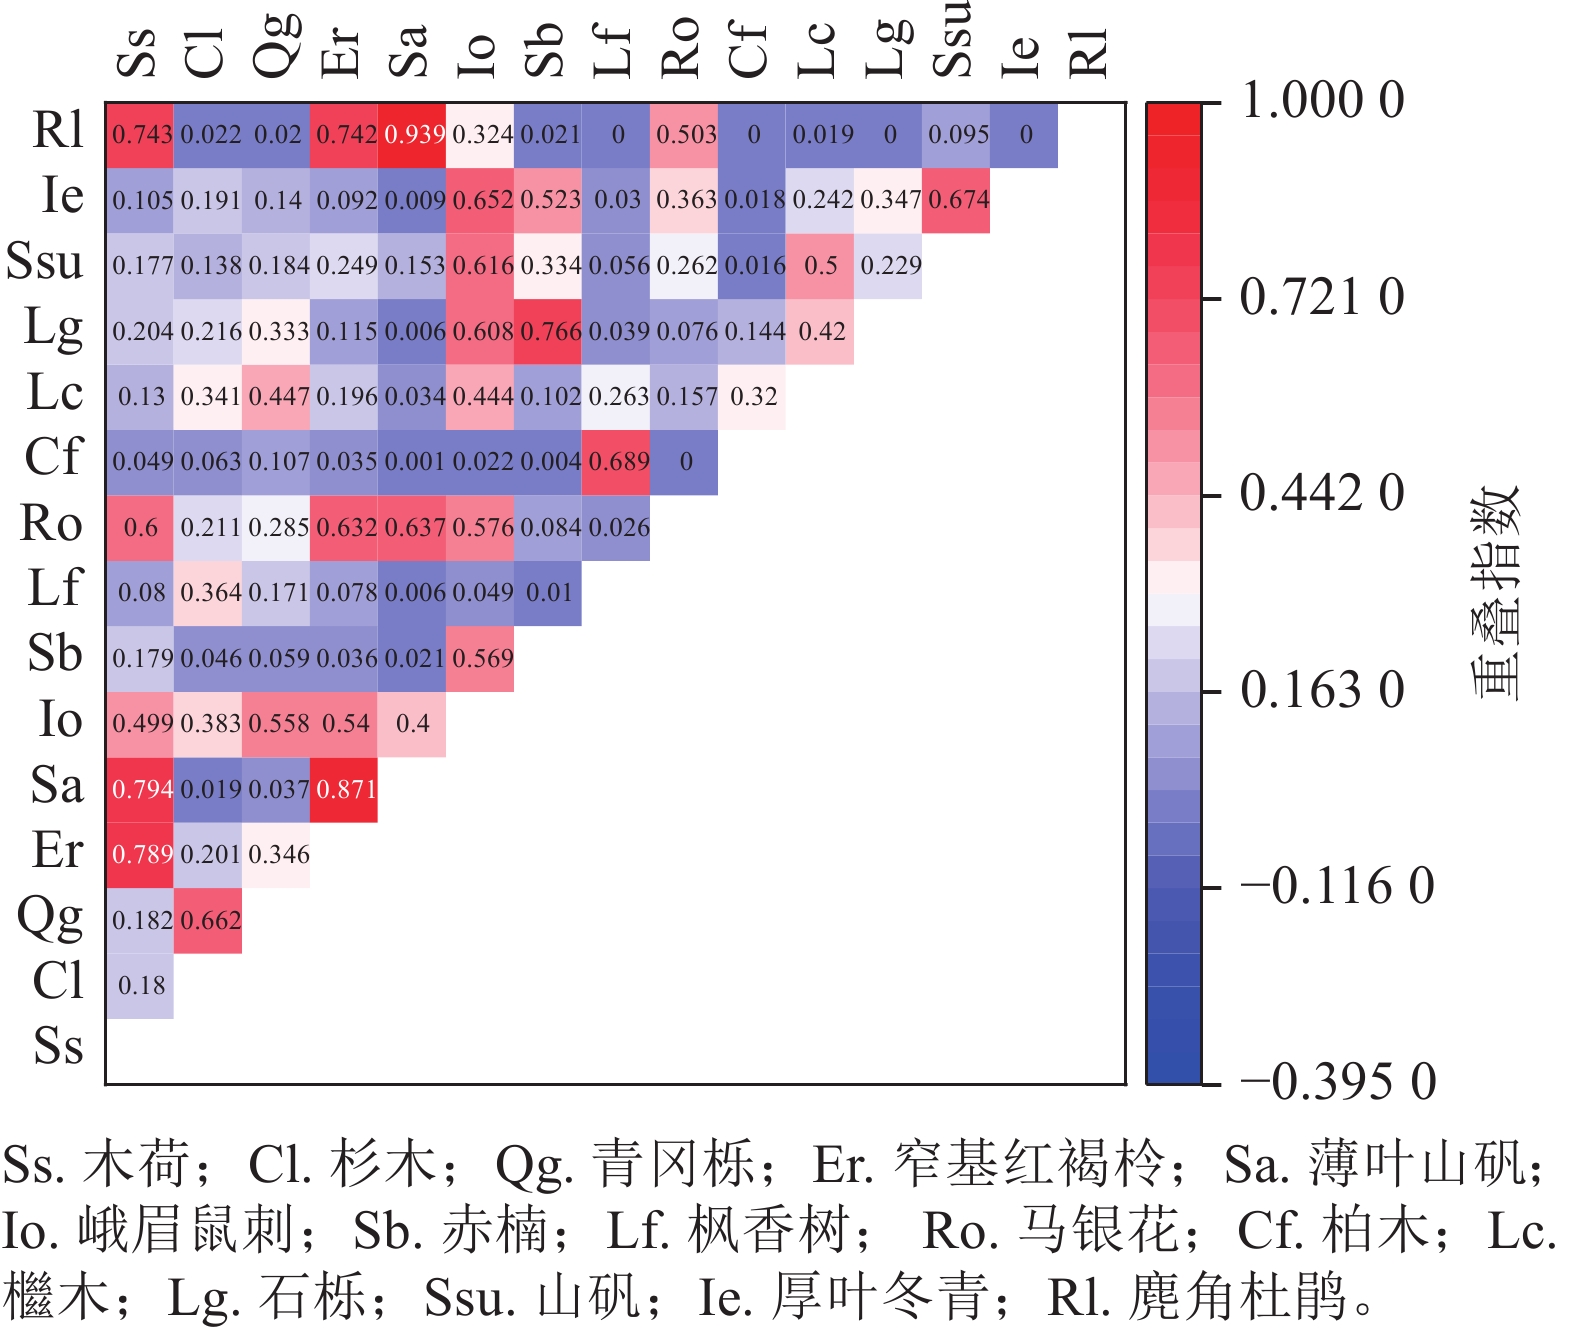
在105组种对中,存在生态位重叠的共计100对,占比95.24%,重叠指数均值为0.26 (图3)。重叠指数≥0.50的种对占21.90% (23对),<0.50的种对占78.10% (82对)。薄叶山矾与麂角杜鹃重叠Rhododendron latoucheae指数最高(0.94)。木荷与其余14个优势种均存在不同程度重叠,平均重叠指数为0.30,其中与薄叶山矾重叠最高(0.91)。杉木平均重叠指数为0.27,与峨眉鼠刺(0.72)、檵木(0.65)及马银花Rhododendron ovatum (0.59)等重叠较明显。麂角杜鹃平均重叠指数仅0.12,除与山矾Symplocos sumuntia、檵木存在中等重叠(约0.30)外,与多数物种生态位高度分化。
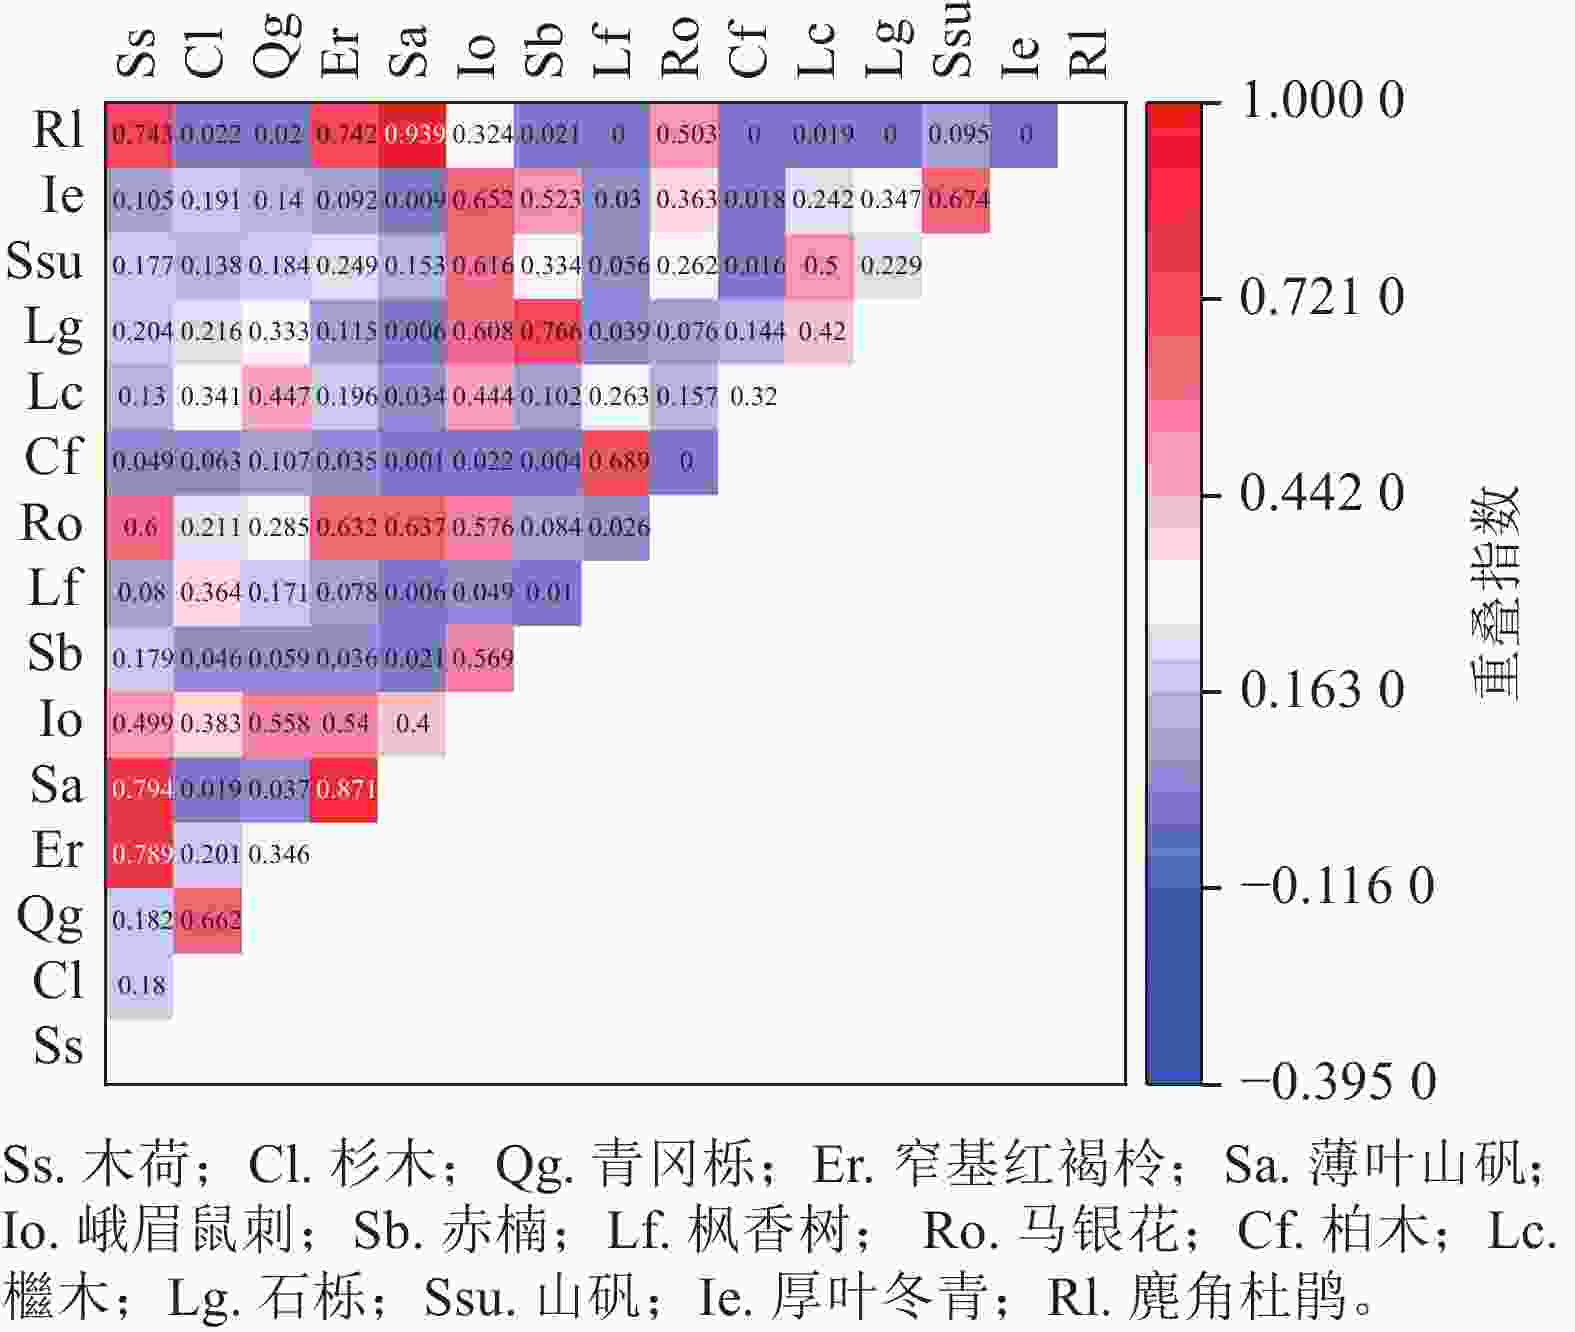
Figure 3. Niche overlap indices of the dominant species in forest communities
-
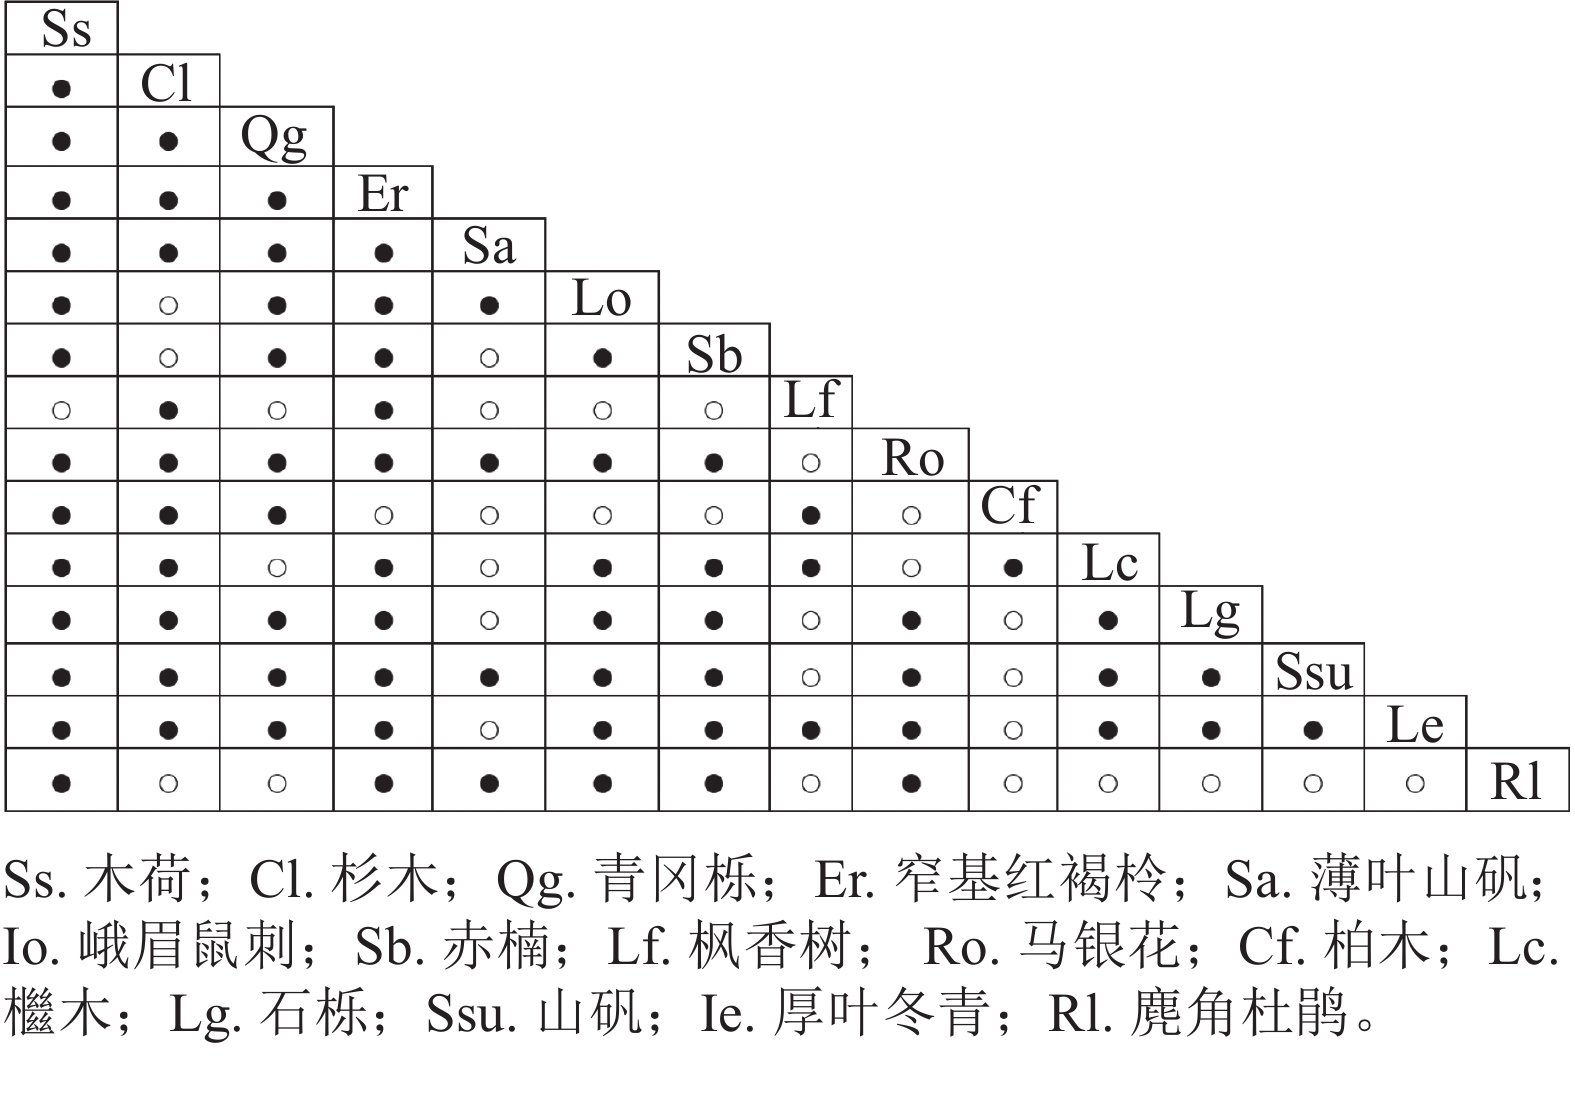
χ2检验显示:在15个优势种构成的105个物种对中,正关联种对达73对,负关联为32对,正负关联比为2.28∶1.00 (图4)。其中16对呈显著或极显著关联,15对为正关联,仅枫香Liquidambar formosana-峨眉鼠刺(χ2=3.95)呈显著负关联。在正关联种对中,木荷-青冈栎(χ2=13.001)、木荷-窄基红褐柃(χ2=6.99)等5对表现为极显著正关联,占显著正关联总数的33.3%。
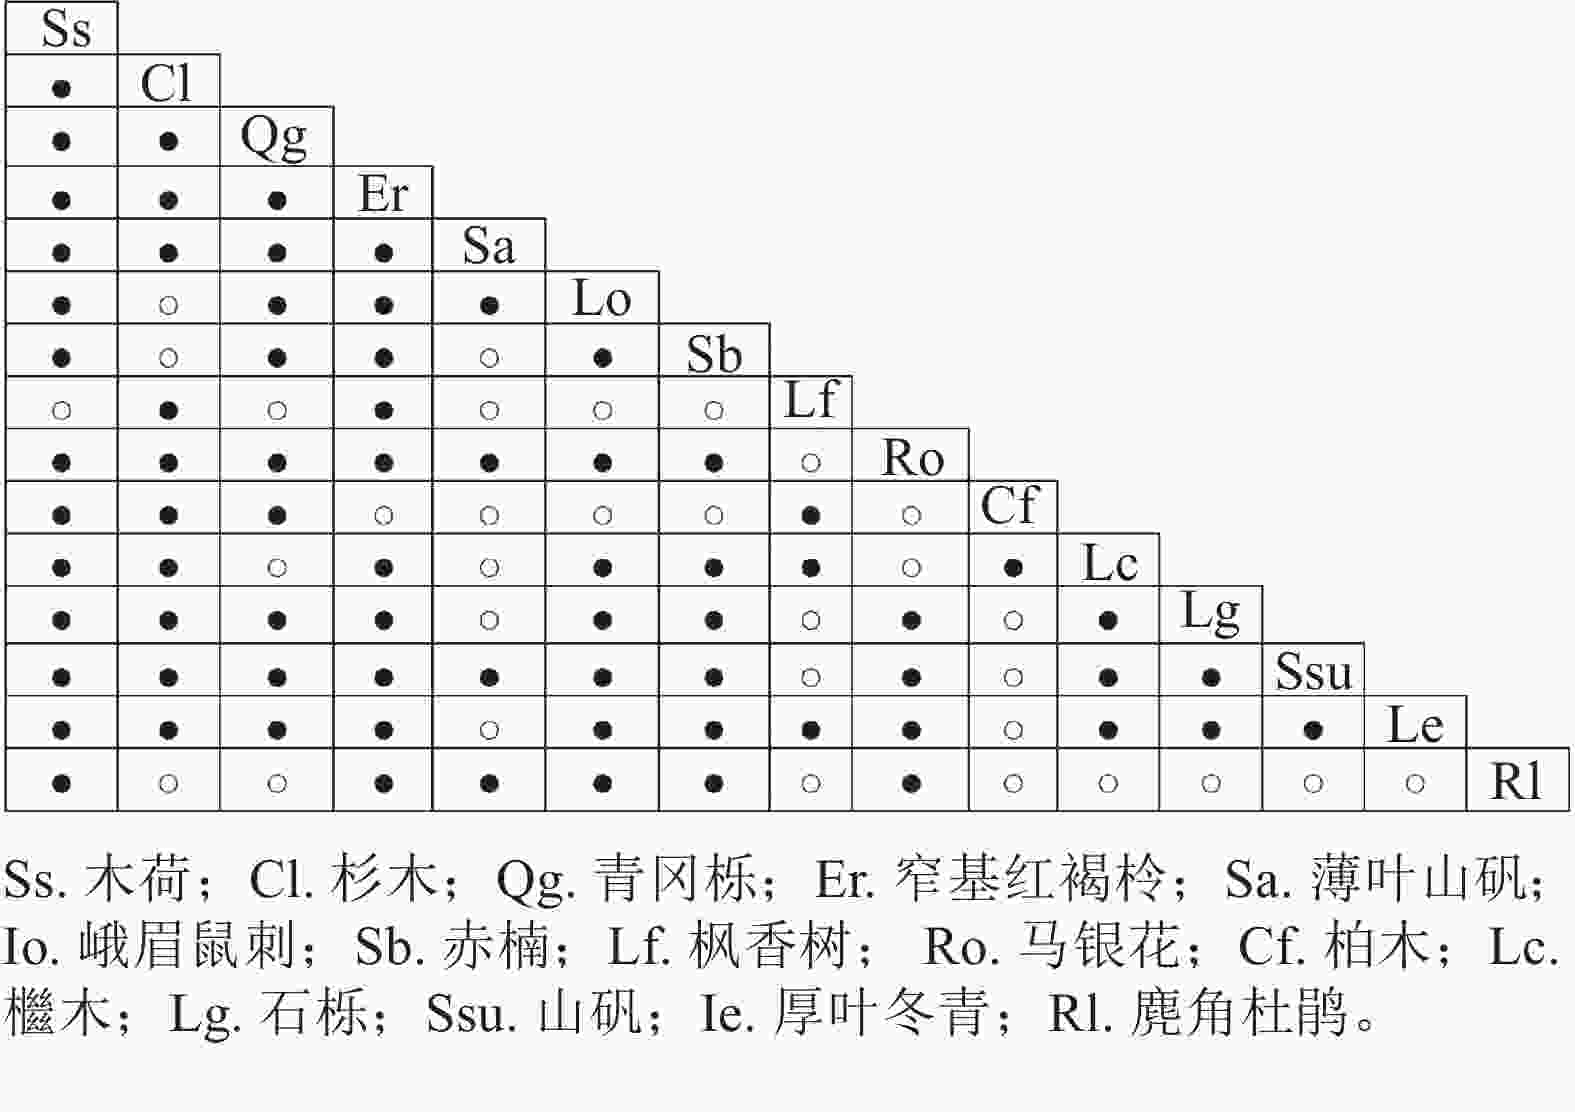
Figure 4. Semi-Matrix of χ2 test for dominant species in forest communities
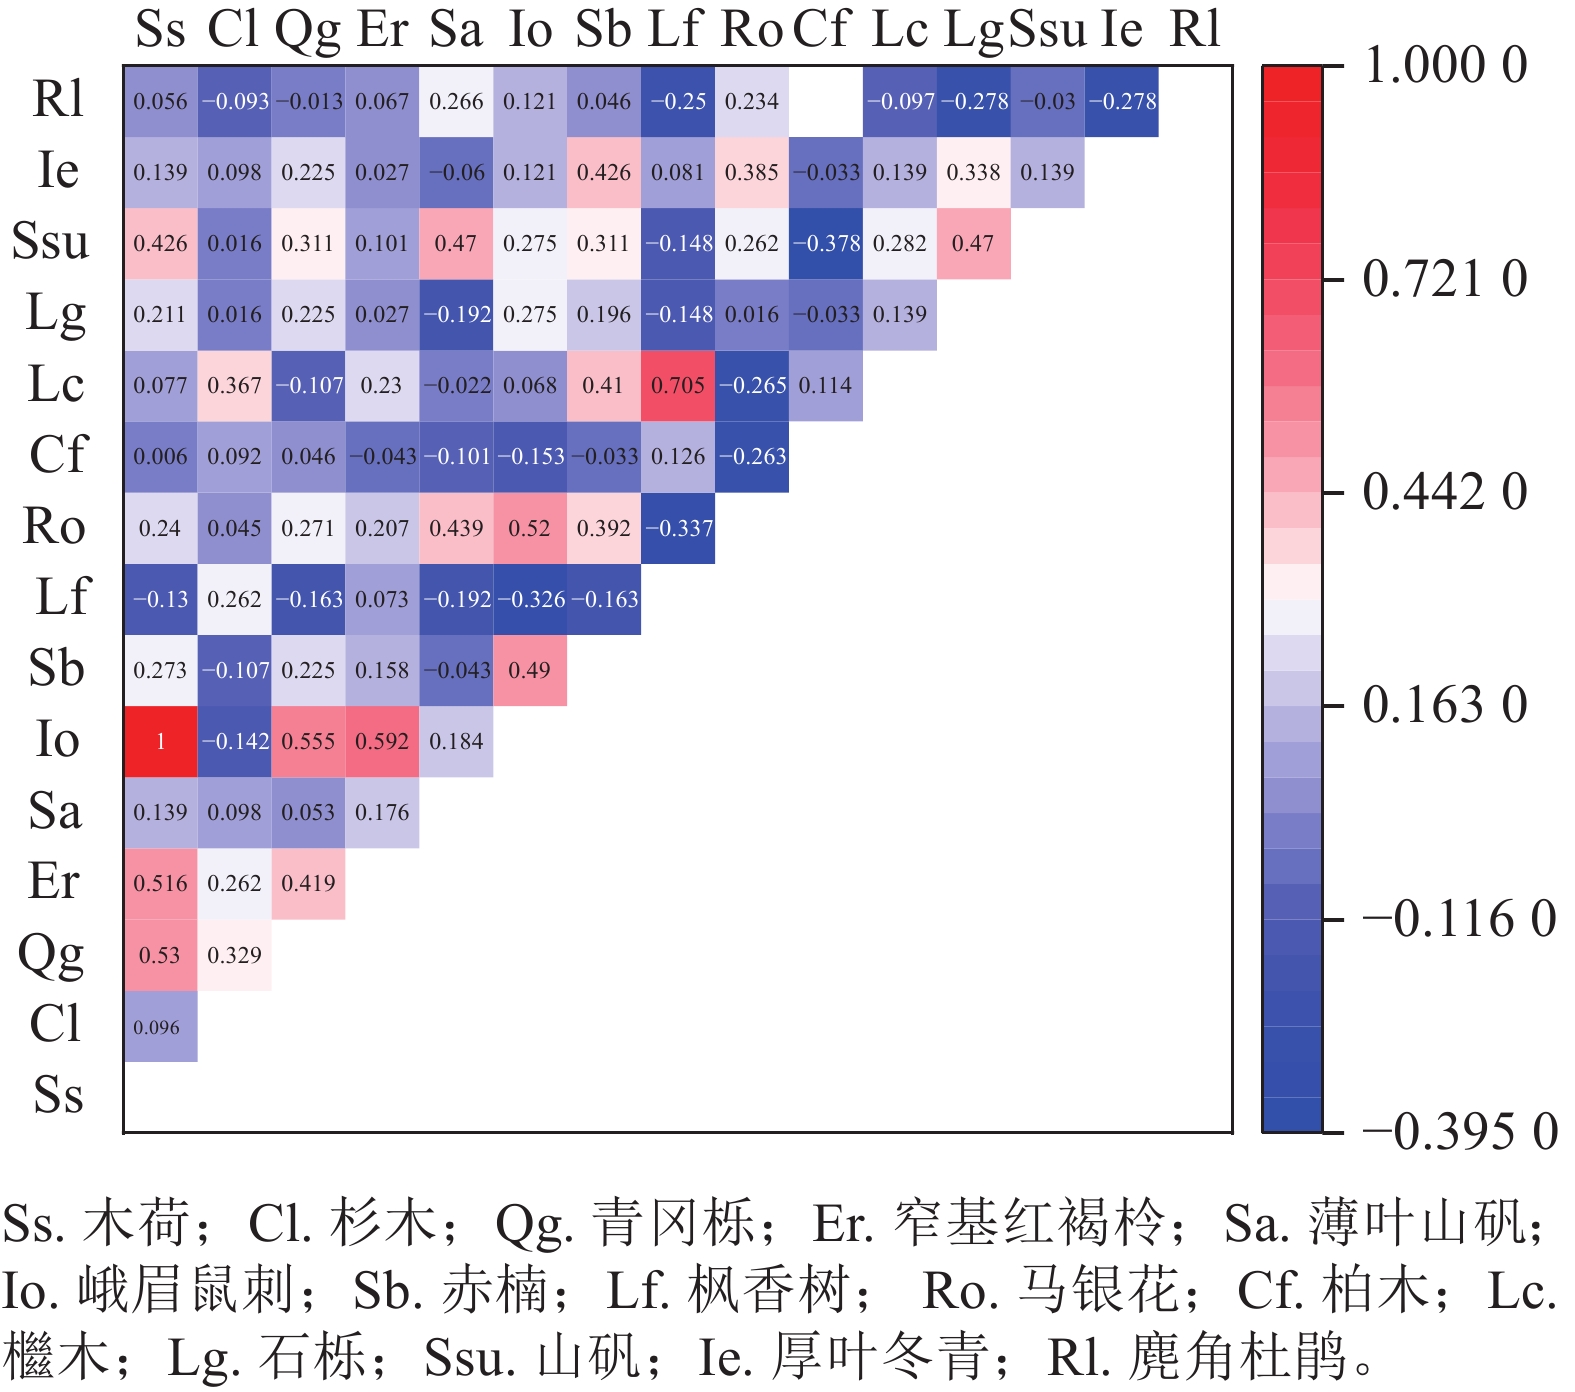
种间联结系数(AC)分析结果显示:正联结种对共73对,占69.52%;负联结种对共32对,占30.48%;正负联结比为2.28∶1.00 (图5),与χ2检验结果一致。正联结种对包括木荷与杉木、青冈栎、窄基红褐柃、薄叶山矾、峨眉鼠刺、赤楠;青冈栎与窄基红褐柃、厚叶冬青Ilex elmerrilliana;窄基红褐柃与薄叶山矾、峨眉鼠刺;峨眉鼠刺与厚叶冬青、檵木、马银花等。负联结种包括木荷与枫香树;杉木与峨眉鼠刺、赤楠、麂角杜鹃;青冈栎与枫香树、檵木、麂角杜鹃;窄基红褐柃与柏木等。
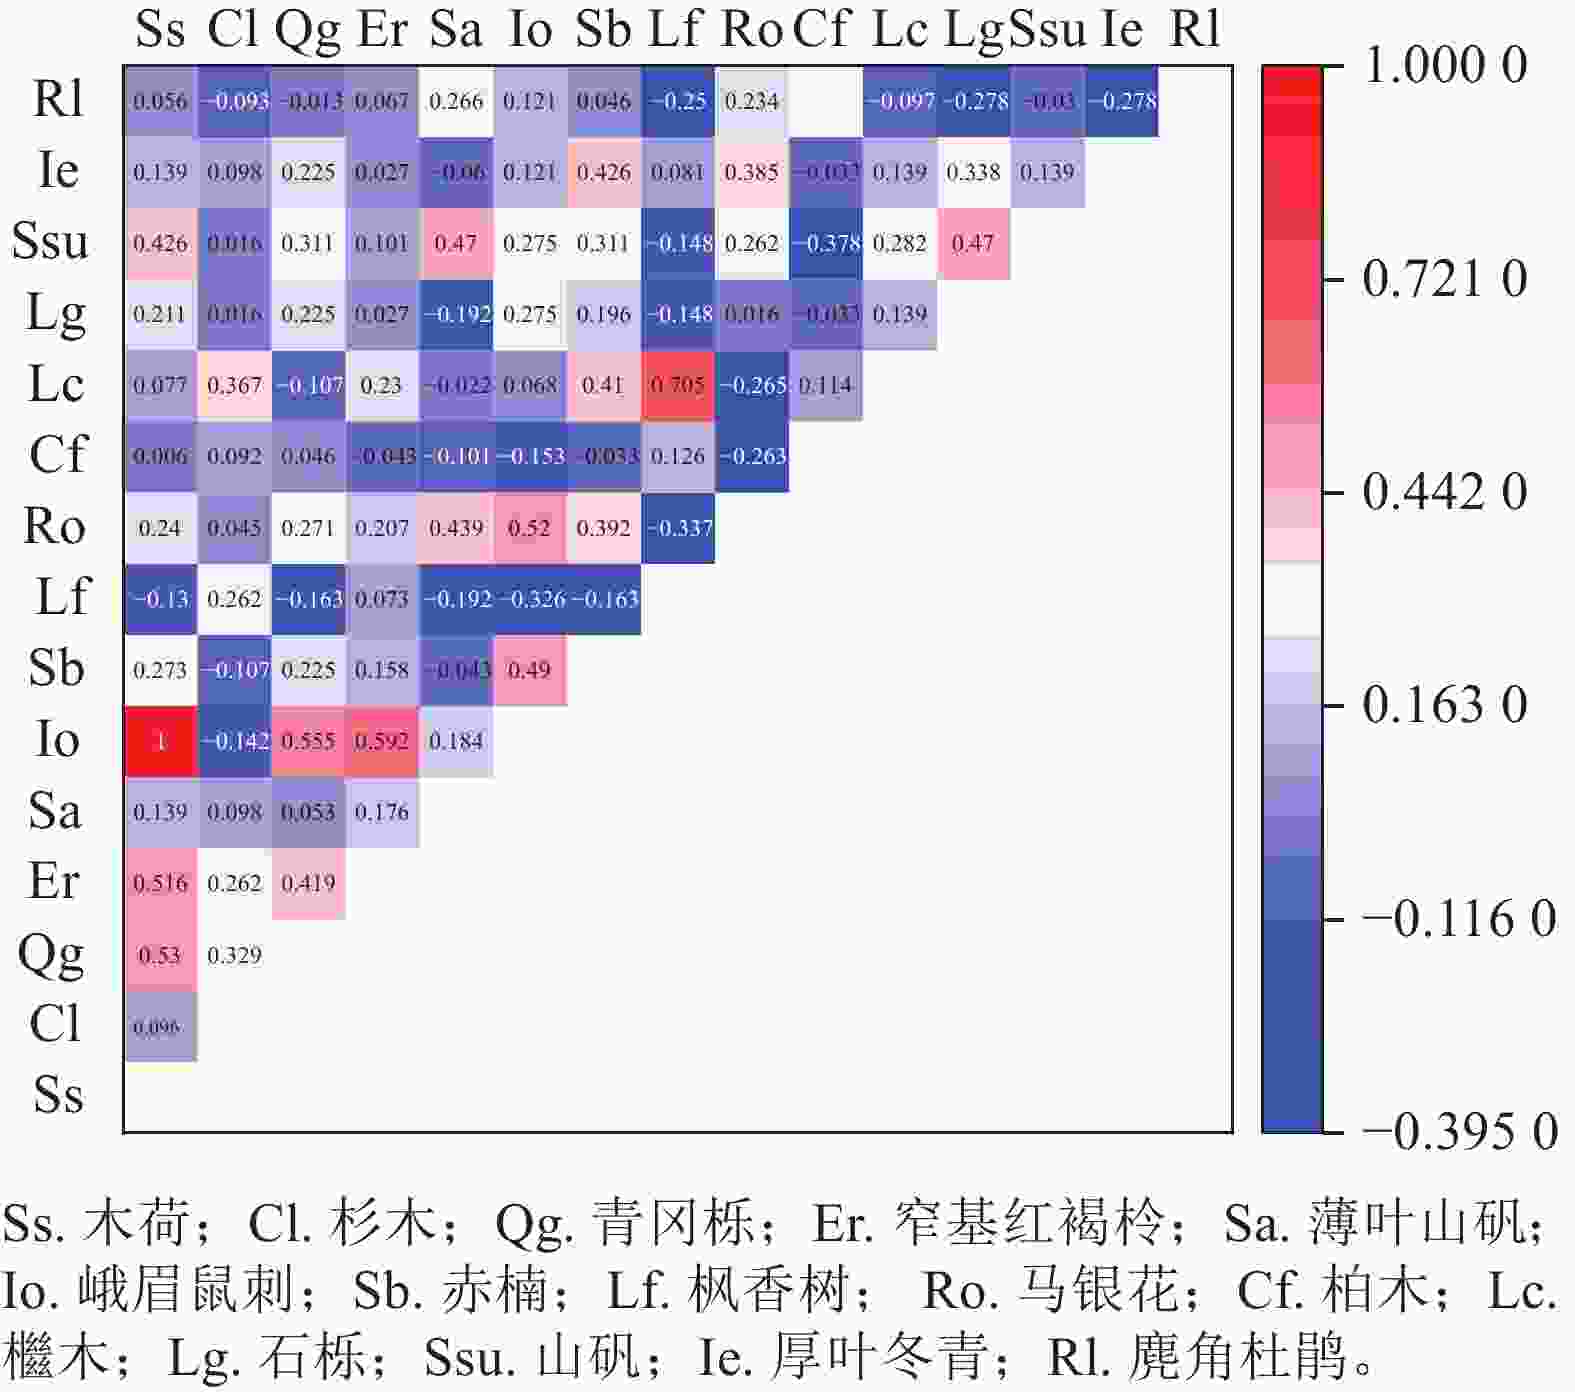
Figure 5. Semi-matrix heatmap of interspecific association coefficient of dominant species
-
本研究共记录乔木植物47科88属128种,优势科为壳斗科、杜鹃花科和山茶科,优势属为冬青属和山矾属。这与浙江乌岩岭[22]及江西九连山[23]等地的研究结论一致,体现了亚热带常绿阔叶林的优势组成特征。木荷重要值达14.83%,是明显的建群种,在受干扰林分中表现出较强的适应能力,常作为次生演替的优势种出现[24]。在群落多样性方面,常绿-落叶阔叶混交林、常绿阔叶林、针阔混交林的Margalef丰富度、Simpson优势度和Shannon多样性指数均无显著差异,但Pielou均匀度在常绿-落叶阔叶混交林中显著高于常绿阔叶林(P<0.05)。这一结果反映了不同林分结构对物种分布均匀性的影响。在本研究中,常绿阔叶林中木荷等重要值突出,导致物种分布不均;而常绿-落叶混交林因落叶树种参与,林隙增多、光环境异质性增强,为更多树种提供了生态位机会,从而提高了均匀度[25–26]。这一现象也印证了结构复杂度与光环境异质性对物种共存的影响[27]。因此,本研究发现物种多样性的差异主要受群落结构复杂度与优势种主导程度的影响,而非单纯的物种数量差异。这对于理解该区域森林的演替阶段及制定多样性保护策略具有参考价值。
-
森林群落的径级结构是揭示其空间格局、动态演替及生态稳定性的关键指标,反映物种在空间占据、资源利用和种群更新方面的协调关系[28]。本研究径级分析显示:群落胸径结构呈典型倒“J”型分布,小径级个体(DBH<5 cm)共计4 087株,占总数66.2%,而大径级个体(DBH≥20 cm)仅占3.5%。这种结构表明群落自然更新活跃,种群补充充分。与典型山地常绿阔叶林相比(如乌岩岭[29]地区大径级个体比例可达10%~15%),本研究中大径级个体明显偏少,表明该地区森林可能仍处于次生演替中前期[30],或曾受人为干扰导致老龄大树缺失。此外,优势种如木荷、杉木、青冈栎在各径级均有分布,显示它们兼具先锋与建群特性,有助于维持群落结构的连续性与稳定性[31]。综上,本研究的径级数据支持该区域森林处于恢复性演替阶段的判断,建议在经营中注重大径级个体的保留与促进,以加速群落向顶极状态发展。
-
生态位宽度与重叠度是解析物种资源利用策略及潜在竞争的重要指标[31]。生态位分析表明:15个优势种的Levins生态位宽度为2.97~12.62,Shannon生态位宽度为1.28~2.67,其中峨眉鼠刺、檵木、木荷等Levins生态位宽度较高(>10),显示出较广的资源利用范围与较强的环境适应性;而柏木、赤楠等Levins生态位宽度较低(<4),表现出明显的生态专化特征。这一结果与广西常绿阔叶林等研究中“广生态位种多分布于上层乔木”的结论相符[32]。提示冠层位置与资源可及性可能共同影响物种的生态位宽度。
在生态位重叠方面,105个种对中平均重叠指数为0.26,78.1%的种对重叠值低于0.5,表明多数物种在资源利用上存在明显分化。值得注意的是,木荷与薄叶山矾重叠最高(0.91),而麂角杜鹃与多数物种重叠极低(均值为0.12),该结果与洮河自然保护区[33]多数物种通过生态位分化实现稳定共存,仅少数种对在特定资源维度重叠较高结果一致,说明群落中既存在资源利用高度相似的种对,也存在高度分化的物种。这种“广生态位种主导结构与窄生态位种互补共存[34]”的格局,反映了该群落通过生态位分化实现物种共存的机制,也为亚热带常绿阔叶林的多样性维持提供了本地案例支持。
-
χ2检验显示:105个种对中正关联种对占73对(69.52%),负关联占32对(30.48%),正负关联比为2.28∶1.00。其中木荷-青冈栎、木荷-窄基红褐柃等种对呈极显著正关联,仅枫香树-峨眉鼠刺呈显著负关联。联结系数(AC)分析结果与χ2检验一致,进一步验证了种间关系以正联结为主。这表明群落内多数物种具有相似的生境需求和资源利用策略,或存在一定的正相互作用,如光、水分资源的互补利用,或种子扩散的空间聚集效应。该结论与多个地区研究结论相符:陈婷婷等[35]指出武夷山亚热带常绿阔叶林中环境过滤与尺度效应共同导致物种普遍正联结;陈材等[36]认为扩散限制与生境异质性促进物种聚集分布;张炜平等[37]则强调郁闭或胁迫环境下植物正相互作用可提高生存率与共现概率。正相关偏多的原因主要包括:其一,共同环境驱动,物种对温度、降水等年际变化响应一致;其二,层次互补效应,如木荷与下层树种在光、水、养分利用上形成互补,随环境改善同步增长[38];其三,扩散限制与空间聚集促使物种在相似微生境中共同繁茂[39]。负关联种对较少且强度弱,可能与演替阶段差异或光照竞争有关[40]。综上,本研究中种间关系以弱正联结为主,群落整体处于相对稳定的演替阶段,物种间竞争缓和,有利于群落结构的维持与恢复。
-
本研究基于浙东南台州地区31个固定样地的调查数据,系统分析了常绿阔叶林不同林分的群落结构特征,群落以木荷为建群种,壳斗科、杜鹃花科和山茶科为主要优势科。3种林分群落(常绿-落叶阔叶混交林、常绿阔叶林、针阔混交林)在Margalef丰富度、Simpson优势度和Shannon多样性指数上无显著差异,但常绿-落叶混交林的Pielou均匀度显著高于常绿阔叶林,反映其物种分布更均匀、结构更具异质性。径级结构总体呈倒“J”型分布,小径级个体(DBH<5 cm)占绝对优势(4 087株),表明群落自然更新活跃,但大径级个体偏少,暗示群落可能处于次生演替中前期。生态位分析显示:峨眉鼠刺、檵木、木荷等具有较宽生态位(Levins生态位宽度为2.97~12.62),而柏木、赤楠等生态位较窄;种间生态位重叠较低(均值为0.26),资源利用分化明显。种间关系以正联结为主(正负关联比为2.28∶1.00),木荷与青冈栎、窄基红褐柃等呈现极显著正关联,仅少数种对(如枫香树-峨眉鼠刺)为显著负关联,反映群落整体结构趋于稳定。总体而言,台州地区常绿阔叶林群落更新良好、种间竞争缓和、结构相对稳定,但仍保留次生演替特征。建议在森林经营中注重优势种保护与结构优化,促进群落向顶极状态恢复。
Analysis of community structures of main forest types in the subtropical region of Southeastern Zhejiang
doi: 10.11833/j.issn.2095-0756.20250623
- Received Date: 2025-12-23
- Rev Recd Date: 2026-04-21
- Available Online: 2026-09-08
-
Key words:
- evergreen broad-leaved forest /
- species diversity /
- community structure /
- niche /
- interspecific relationships /
- Southeastern Zhejiang
Abstract:
| Citation: | SUN Zhi, YOU Minqi, ZHENG Yumei, et al. Analysis of community structures of main forest types in the subtropical region of Southeastern Zhejiang[J]. Journal of Zhejiang A&F University, 2026, 43(5): 1−10 doi: 10.11833/j.issn.2095-0756.20250623

|
 DownLoad: