



-
黄帚橐吾Ligularia virgaurea以其强大的无性繁殖能力和化感作用,在甘南高寒草地退化群落中逐渐成为优势种,对生态系统结构与功能产生深远影响。现有研究已从种群动态、环境适应及化感效应等角度探讨了其扩张机制,指出不同密度下黄帚橐吾对物种共存和土壤环境的影响存在差异,并证实其扩张伴随杂草比例上升、优良牧草减少及土壤养分变化[1−7]。甘南州夏河、碌曲、玛曲三地长期受到超载过牧与鼠害等干扰,致使优良牧草减少、土壤劣化,为黄帚橐吾的入侵提供了生态位,使其成为高寒草地退化的重要指示物种与驱动因子[8−9]。当前,玛曲地区的相关研究最为深入,多聚焦微观机制与种群动态,发现黄帚橐吾空间分布多呈聚集格局,并通过调控根际微生物群落促进自身扩张[10−11]。夏河地区的研究侧重宏观退化现状与治理,当地草地植被盖度低、群落结构简单,通过补播优良牧草可显著降低毒草比例,为生态修复提供了实践依据[12]。而碌曲地区的相关研究仍较为薄弱[13]。三地虽同属甘南高寒草甸区,但受地形、水文及放牧历史影响,黄帚橐吾分布与种间关系存在区域差异,不同退化梯度下的植物群落结构亦可能表现出明显的地域性特征。
因此,本研究以甘南藏族自治州夏河、碌曲和玛曲县的黄帚橐吾型退化高寒草地为研究对象,以揭示退化过程中高寒草地植被群落演变规律为目标,系统比较不同退化梯度下植被群落结构、物种多样性及地上/地下生物量的变化特征,为当地退化草地的生态修复与适应性管理提供理论依据和实践指导。
-
研究区位于青藏高原东北缘甘肃省甘南藏族自治州,涵盖夏河、碌曲、玛曲三县,这3个地区同属高寒草甸草原区,均面临以过度放牧为核心的干扰压力,且黄帚橐吾种群扩张现象典型,具备区域代表性和可比性。夏河样地(35°06′45″~35°12′09″N,102°24′44″~102°31′18″E,海拔为3 150~3 220 m)、碌曲样地(33°44′32″~33°47′41″N,102°12′45″~102°15′50″E,海拔为3 280~3 350 m)和玛曲样地(33°06′30″~34°30′15″N,100°45′45″~102°29′00″E,海拔为3 450~3 520 m)在气候类型上均属高原大陆性气候,具有太阳辐射强、昼夜温差大、无霜期极短等共性特征,但在年均温(夏河3.4 ℃、碌曲2.3 ℃、玛曲1.1~2.9 ℃)、年均降水量(夏河512.3 mm、碌曲580.0 mm、玛曲611.9 mm)、海拔及土壤类型(夏河以黑钙土、亚高山草甸土和高山草甸土为主;碌曲以亚高山草甸土和高山草甸土为主;玛曲涵盖高山草甸土、亚高山草甸土、沼泽土及泥炭土)等方面形成明显的环境梯度,体现了区域内生境异质性,为比较不同环境条件下黄帚橐吾的种群分布及其与植物群落的关系提供了天然实验平台。长期过度放牧导致3个地区草地植被退化,表现为优良牧草比例下降、草地生产力降低,而黄帚橐吾等毒杂草盖度和比例显著上升[14]。
-
在夏河、碌曲和玛曲的天然高寒草地,根据黄帚橐吾种群盖度由低到高,且植被群落连片分布(面积大于200 m×200 m)的条件,在地形、土壤、放牧方式及强度相对均一的区域,参考XUE等[15]的划分标准,分别随机选取4个不同退化程度的样方(面积为50 m×50 m),划分为未退化草地(NDG,黄帚橐吾盖度<5%)、轻度退化草地(LDG,黄帚橐吾盖度10%~25%)、中度退化草地(MDG,黄帚橐吾盖度30%~50%)和重度退化草地(SDG,黄帚橐吾盖度>60%)。每个梯度随机选取5个0.5 m×0.5 m的小样方,于2024年8月植被生长旺盛期,同步开展植被调查与样品采集工作。各地区主要植被类型见表1。
表 1 各地区不同退化程度下的主要植被类型
Table 1. Major vegetation types across regions under varying degradation level
样地 退化序列 黄帚橐吾盖度/% 总物种数/种 主要优势植物 夏河县 NDG 0 d 21 冷地早熟禾、垂穗披碱草、扁蓿豆、高原毛茛 LDG 20.00±2.31 c 23 红棕薹草、冷地早熟禾、扁蓿豆、鹅绒委陵菜 MDG 48.67±2.91 b 23 双柱头藨草、黄帚橐吾、扁蓿豆、冷地早熟禾 SDG 107.00±2.65 a 22 扁蓿豆、小嵩草、鹅绒委陵菜、黄帚橐吾 碌曲县 NDG 0 d 23 冷地早熟禾、红棕薹草、小嵩草、鹅绒委陵菜 LDG 21.33±2.40 c 20 红棕薹草、扁蓿豆、冷地早熟禾、鹅绒委陵菜 MDG 44.00±2.08 b 21 黑褐苔草、冷地早熟禾、黄帚橐吾、扁蓿豆 SDG 102.33±2.85 a 22 扁蓿豆、紫花地丁、鸢尾、黄帚橐吾 玛曲县 NDG 0 d 26 鹅绒委陵菜、冷地早熟禾、垂穗披碱草、扁蓿豆 LDG 18.00±2.08 c 22 红棕薹草、高山唐松草、垂穗披碱草、冷地早熟禾 MDG 39.00±2.52 b 22 扁蓿豆、黑褐苔草、冷地早熟禾、隐子草 SDG 92.33±1.20 a 22 小嵩草、黄帚橐吾、矮嵩草、紫花地丁 说明:同列不同小写字母表示不同退化序列间差异显著(P<0.05)。冷地早熟禾Poa crymophila、垂穗披碱草Elymus nutans、扁蓿豆Medicago ruthenicus、高原毛茛Ranunculus tanguticus、红棕薹草Carex przewalskii、鹅绒委陵菜Potentilla anserina、双柱头藨草Scirpus distigmaticus、小嵩草Kobresia pygmaea、黑褐苔草Carex atrofusca、紫花地丁Viola philippica、鸢尾Iris tectorum、高山唐松草Thalictrum alpinum、隐子草Cleistogenes serotina、矮嵩草Kobresia humilis。 -
在每个退化梯度的5个小样方内,调查植被盖度、多度、高度、频度及物种名称。采用刈割法,将样方内植物的地上部分全部刈割,按种类分类后装入信封,在75 ℃烘箱内烘干至恒量,称量后得到地上生物量。采用土钻法,沿样方对角线中部位置,使用直径7 cm的土钻采集0~50 cm土层的土样。将土样装入根袋,用清水冲洗干净以分离地下根系,将根系装入信封,在75 ℃烘箱内烘干至恒量,称量后得到地下生物量[16]。
-
在植被生态学研究中,高度、频度和盖度是表征群落数量特征的基础指标。其中,高度反映物种的生长状况与空间竞争能力;频度指物种在样方中出现频率,体现其水平分布的均匀程度;盖度为植物地上部分垂直投影面积占比,是衡量物种相对重要性的关键指标。各指标的相对值(相对高度、相对频度、相对盖度)计算方法详见相关文献[17−18]。
-
物种重要值是评价物种在群落中综合优势地位的定量指标,通过将多个数量特征(如相对高度、相对盖度、相对频度等)合并为一个数值,反映该物种在群落中的生态重要性[19]。草地群落物种多样性特征选取Margalef丰富度指数、Simpson多样性指数、Shannon-Wiener多样性指数及Pielou均匀度指数表征[20]。
-
采用Levins生态位宽度进行计算[21]:
$$ B_{j }= \frac{1}{\left(t\times \displaystyle\sum\limits_{k=1}^{t}P_{jk}^{2}\right)} 。 $$ 式中:Bj表示第j个物种的生态位宽度,其值域为[0,1];Pjk表示第j个物种在第k个资源水平下的重要值占该物种在所有资源水平上的重要值总和的比例;t为样方总数。
-
使用Excel整理和初步分析数据,在SPSS 27.0中对黄帚橐吾不同盖度样方间的植被群落物种多样性指数、地上和地下生物量等进行单因素方差分析;在Origin2021中采用Spearman秩相关系数对草地植被物种多样性指数与生物量进行相关性分析,显著性水平设为95% (α=0.05)。图表数据均采用平均值±标准误表示。绘图采用Prism、Origin2021软件。
-
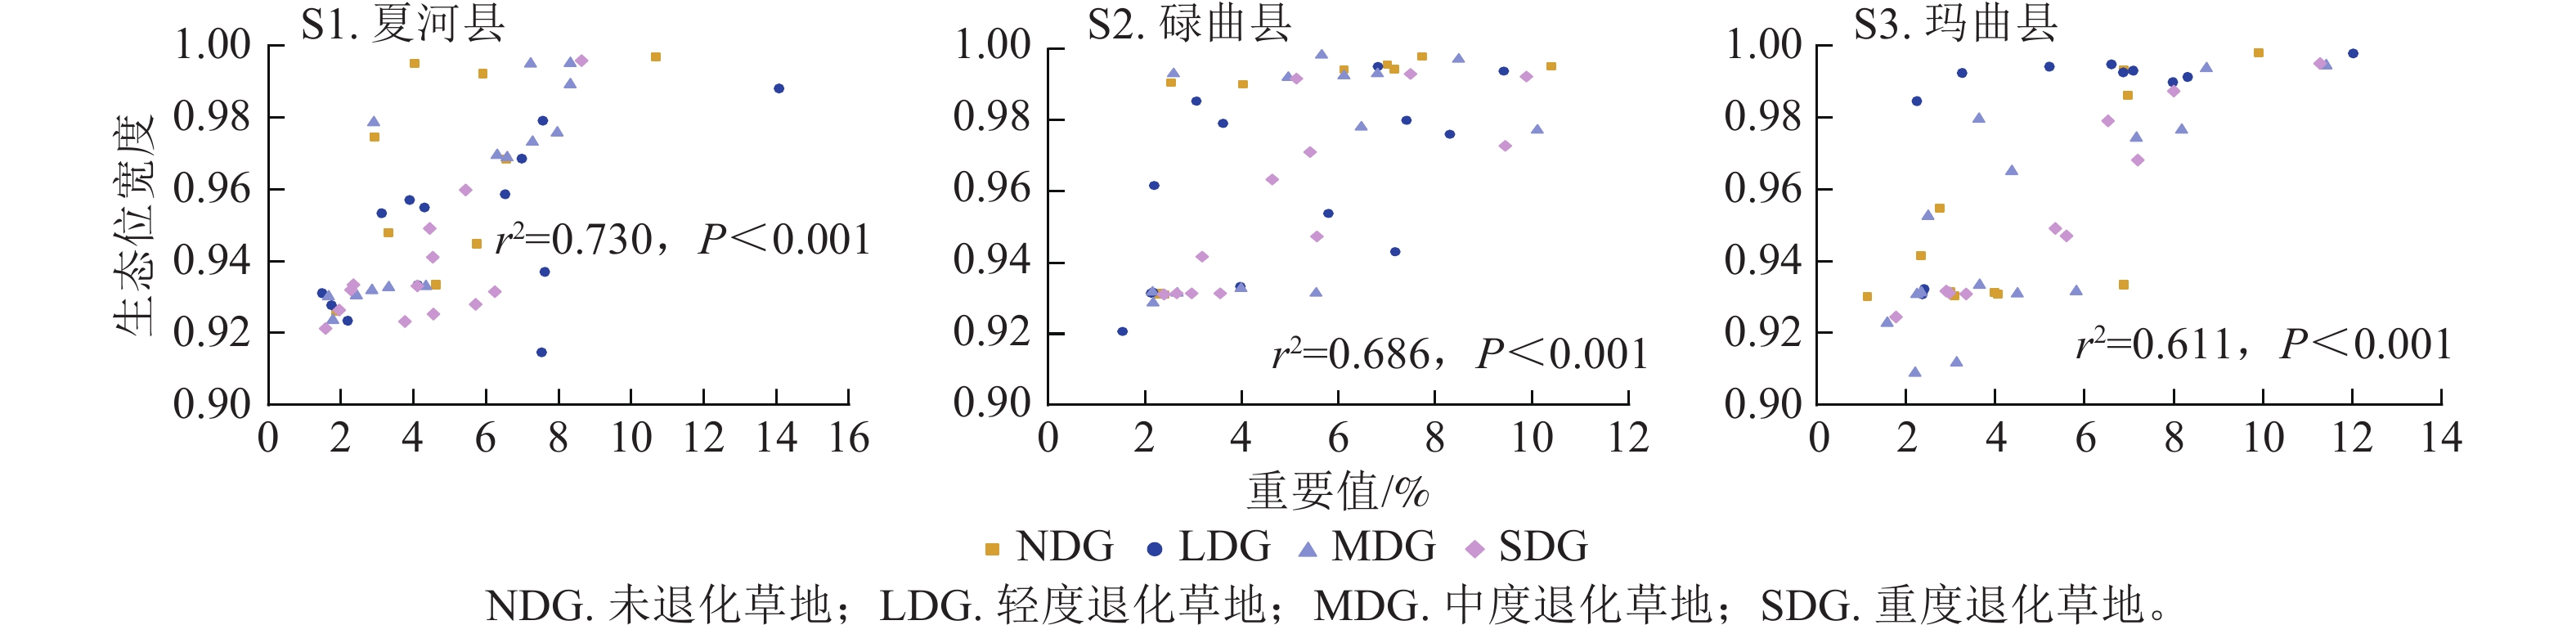
重要值分析表明:单一样地内不同退化梯度间植物群落结构差异显著(P<0.05);尽管3个样地相互独立,群落结构随退化程度加深的变化趋势表现出高度相似性。从表2来看:3个样地中,冷地早熟禾、垂穗披碱草、扁蓿豆和鹅绒委陵菜在各类退化梯度中均占据较高的重要值比例(夏河县NDG 28.76%,LDG 34.70%,MDG 27.81%,SDG 13.45%;碌曲县 NDG 31.75%,LDG 28.86%,MDG 28.42%,SDG 27.04%;玛曲县NDG 29.93%,LDG 33.63%,MDG 30.61%,SDG 14.34%),显示出它们在区域范围内的广适性和生态优势。禾本科Poaceae与莎草科Cyperaceae植物的重要值随黄帚橐吾盖度的增加而明显降低,黄帚橐吾逐渐演替成为优势种。相比之下,其余杂草类植物的重要值整体趋于稳定。生态位宽度在不同样地及退化梯度间均存在差异。表3显示:夏河县样地,NDG序列生态位宽度排名前3的物种依次为扁蓿豆、垂穗披碱草和柴胡;LDG序列为垂穗披碱草、冷地早熟禾和扁蓿豆;MDG序列为扁蓿豆、黄帚橐吾和垂穗披碱草;SDG序列为黄帚橐吾、鹅绒委陵菜和紫花地丁。碌曲县样地,NDG序列生态位宽度前3的物种为冷地早熟禾、鹅绒委陵菜和垂穗披碱草;LDG序列为扁蓿豆、鹅绒委陵菜和垂穗披碱草;MDG序列为黑褐苔草、黄帚橐吾和钉柱委陵菜;SDG序列为鹅绒委陵菜、紫花地丁和黄帚橐吾。玛曲县样地,NDG序列生态位宽度前3的物种为垂穗披碱草、冷地早熟禾和扁蓿豆;LDG序列为垂穗披碱草、红棕薹草和黑褐苔草;MDG序列为垂穗披碱草、黄帚橐吾和小嵩草;SDG序列为黄帚橐吾、扁蓿豆和鹅绒委陵菜。对3个样地物种重要值与生态位宽度的相关性分析表明:不同退化梯度在一定范围内,生态位宽度与重要值呈极显著正相关(P<0.001,图1)。
表 2 草地退化梯度下各样地优势物种与重要值特征
Table 2. Dominant species and importance values along degradation gradient
地区 功能群 物种 重要值/% NDG LDG MDG SDG 夏河县 禾本科 冷地早熟禾 5.75±0.88 a 7.41±0.42 a 7.26±0.74 a 4.15±4.15 a 垂穗披碱草 10.73±0.75 b 13.93±0.62 a 6.91±2.05 c − 隐子草 − − − 4.52±0.52 莎草科 矮嵩草 1.77±0.35 b 1.65±0.34b 2.09±0.46 ab 2.55±0.27 a 黑褐苔草 − 3.94±0.77 b 6.27±0.12 a 6.31±0.20 a 红棕薹草 4.27±1.09 b 7.60±0.18 a 7.78±0.56 a − 小嵩草 − 4.30±0.85 a 1.82±1.09 b 3.27±0.25 a 双柱头藨草 − − 2.72±0.42 − 豆科 扁蓿豆 6.54±0.34 a 6.83±0.19 a 7.05±0.56 a 3.88±0.69 b 菊科 黄帚橐吾 − 7.53±0.03 b 8.17±0.67 ab 8.63±0.69 a 蔷薇科 鹅绒委陵菜 5.74±0.57 b 6.53±0.31 a 6.59±0.29 a 5.42±0.10 b 钉柱委陵菜 3.13±0.53 a 2.95±0.06 ab 1.79±0.36 c 2.35±0.44 bc 毛茛科 高山唐松草 − 1.49±0.29 a 1.66±0.32 a − 茜草科 刺果猪殃殃 − 4.06±0.88 a 3.32±0.63 a − 鸢尾科 鸢尾 − − − 1.96±0.39 伞形科 柴胡 3.85±0.18 b 3.71±0.45 b 4.31±0.35 b 5.71±1.12 a 堇菜科 紫花地丁 2.76±0.50 b 2.20±0.45 b − 4.45±0.17 a 碌曲县 禾本科 冷地早熟禾 7.71±0.05 a 7.25±1.27 ab 5.54±1.06 bc 4.63±0.88 c 垂穗披碱草 10.21±0.35 a 9.25±2.52 a 10.11±1.92 a 9.45±1.81 a 隐子草 − − − 5.55±1.60 莎草科 矮嵩草 2.27±0.44 a 2.01±0.44 a 2.15±0.41 a 2.38±0.46 a 黑褐苔草 − 2.13±0.41 b 5.66±0.29 a 2.65±0.51 b 红棕薹草 5.94±0.49 b 8.12±1.56 a 6.47±0.15 b − 小嵩草 2.55±0.30 b 3.59±0.07 a 3.82±0.69 a 3.55±0.68 a 双柱头藨草 − 1.54±0.32 b 2.67±0.51 a − 豆科 扁蓿豆 6.99±0.60 a 6.78±0.15 ab 6.81±0.65 ab 5.41±1.27 b 菊科 黄帚橐吾 − 7.01±0.10 c 8.31±0.47 b 9.87±1.07 a 蔷薇科 鹅绒委陵菜 6.84±0.49 ab 5.85±0.14 b 5.96±0.59 b 7.55±0.77 a 钉柱委陵菜 2.41±0.46 a 3.00±0.03 a 2.57±0.26 a 2.40±0.46 a 毛茛科 高山唐松草 − − 2.17±0.42 a 1.98±0.23 a 茜草科 刺果猪殃殃 − 3.98±0.75 − − 鸢尾科 鸢尾 − − − 2.57±0.57 a 伞形科 柴胡 3.86±0.41 b 2.67±0.36 c 4.77±0.44 a 3.18±0.61 bc 堇菜科 紫花地丁 2.31±0.44 b 2.17±0.42 b − 4.97±0.50 a 玛曲县 禾本科 冷地早熟禾 6.70±0.55 b 8.15±0.39 a 8.01±0.10 a − 垂穗披碱草 9.74±2.70 a 11.85±1.36 a 11.23±4.34 a − 隐子草 − − 3.13±0.04 a 3.35±0.65 a 莎草科 矮嵩草 − − 2.25±0.43 a 2.91±0.56 a 黑褐苔草 2.76±0.53 b 5.23±0.23 a 5.79±0.89 a − 红棕薹草 4.07±0.77 b 6.45±0.52 a 3.65±0.71 b − 小嵩草 3.80±0.63 b 2.42±0.46 c 3.64±0.70 b 7.19±0.09 a 双柱头藨草 − 2.37±0.46 − − 豆科 扁蓿豆 6.79±1.36 a 6.71±0.67 a 7.00±1.00 a 7.81±1.75 a 菊科 黄帚橐吾 − 8.00±1.00 a 8.76±0.86 a 11.08±3.18 a 蔷薇科 鹅绒委陵菜 6.70±1.58 a 6.92±0.89 a 4.37±0.83 ab 6.53±1.25 b 钉柱委陵菜 2.93±0.52 a 3.10±0.22 a 2.50±0.48 ab 1.78±0.36 b 毛茛科 高山唐松草 1.13±0.25 c 2.07±0.15 b 2.21±0.43 ab 2.81±0.45 a 茜草科 刺果猪殃殃 − − − − 鸢尾科 鸢尾 2.99±0.58 a − 2.34±0.45 a − 伞形科 柴胡 2.35±0.35 b 2.35±0.45 b 4.33±0.34 a 5.60±1.62 a 堇菜科 紫花地丁 − − 2.37±0.19 b 5.17±0.68 a 说明:同行不同小写字母表示同一物种不同序列间差异显著(P<0.05)。“−”表示该种植物不存在。豆科Fabaceae、菊科Asteraceae、蔷薇科Rosaceae、毛茛科Ranunculaceae、茜草科Rubiaceae、鸢尾科Iridaceae、伞形科Apiaceae、堇菜科Violaceae、钉柱委陵菜Potentilla saundersiana、刺果猪殃殃Galium echinocarpum、柴胡Bupleurum chinense。 表 3 各样地不同退化梯度优势物种生态位宽度
Table 3. Niche breadth of dominant species across degradation gradients in all study sites
地区 编号 优势物种 生态位宽度 地区 编号 优势物种 生态位宽度 NDG LDG MDG SDG NDG LDG MDG SDG 夏河县 1 冷地早熟禾 0.945 0.979 0.973 0.932 碌曲县 10 黄帚橐吾 – 0.943 0.997 0.992 2 垂穗披碱草 0.997 0.988 0.989 0.941 11 鹅绒委陵菜 0.996 0.995 0.992 0.993 3 隐子草 – – – 0.932 12 钉柱委陵菜 0.931 0.954 0.993 0.931 4 矮嵩草 0.926 0.928 0.930 0.933 13 高山唐松草 – – 0.929 0.901 5 黑褐苔草 – 0.933 0.969 0.921 14 刺果猪殃殃 – 0.933 – – 6 红棕薹草 0.933 0.937 0.976 – 15 鸢尾 – – – 0.931 7 小嵩草 – 0.955 0.932 0.925 16 柴胡 0.990 0.985 0.992 0.941 8 双柱头藨草 – – 0.979 – 17 紫花地丁 0.931 0.932 – 0.992 9 扁蓿豆 0.968 0.968 0.995 0.923 玛曲县 1 冷地早熟禾 0.993 0.991 0.976 – 10 黄帚橐吾 – 0.915 0.995 0.996 2 垂穗披碱草 0.998 0.998 0.994 – 11 鹅绒委陵菜 0.992 0.959 0.969 0.960 3 隐子草 – – 0.912 0.931 12 钉柱委陵菜 0.948 0.953 0.924 0.933 4 矮嵩草 – – 0.931 0.932 13 高山唐松草 – 0.931 0.930 – 5 黑褐苔草 0.955 0.994 0.931 – 14 刺果猪殃殃 – 0.807 0.933 – 6 红棕薹草 0.931 0.995 0.933 – 15 鸢尾 – – – 0.926 7 小嵩草 0.910 0.932 0.979 0.968 16 柴胡 0.995 0.957 0.933 0.928 8 双柱头藨草 – 0.931 – – 17 紫花地丁 0.974 0.923 – 0.949 9 扁蓿豆 0.986 0.992 0.974 0.987 碌曲县 1 冷地早熟禾 0.998 0.980 0.931 0.963 10 黄帚橐吾 – 0.990 0.994 0.995 2 垂穗披碱草 0.995 0.994 0.977 0.972 11 鹅绒委陵菜 0.933 0.993 0.965 0.978 3 隐子草 – – – 0.947 12 钉柱委陵菜 0.930 0.992 0.952 0.924 4 矮嵩草 0.931 0.962 0.932 0.931 13 高山唐松草 0.930 0.984 0.909 0.931 5 黑褐苔草 – 0.931 0.998 0.931 14 刺果猪殃殃 – – – – 6 红棕薹草 0.994 0.976 0.978 – 15 鸢尾 0.931 – 0.931 – 7 小嵩草 0.991 0.979 0.933 0.931 16 柴胡 0.942 0.931 0.931 0.947 8 双柱头藨草 – 0.921 0.931 – 17 紫花地丁 – – 0.923 0.949 9 扁蓿豆 0.994 0.995 0.933 0.971 说明:“−”表示该种植物不存在。 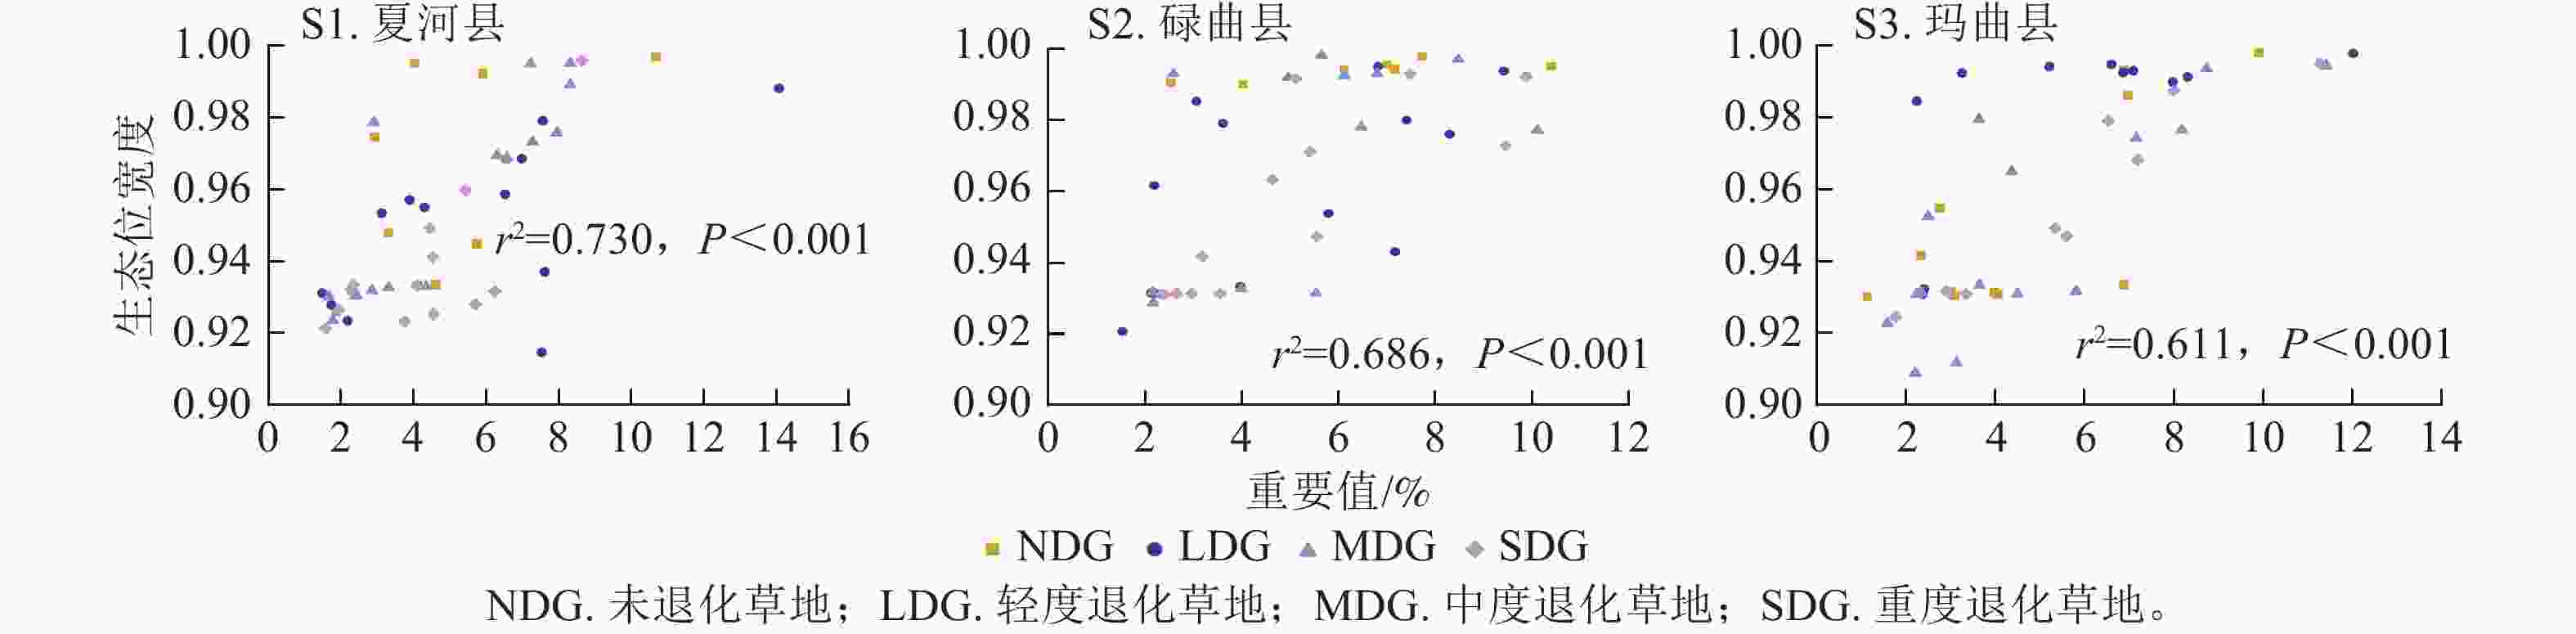
图 1 各样地不同退化梯度草地群落主要物种重要值与生态位宽度的相关性分析
Figure 1. Correlation between importance value and niche breadth of major species in grassland communities along different degradation gradient
-
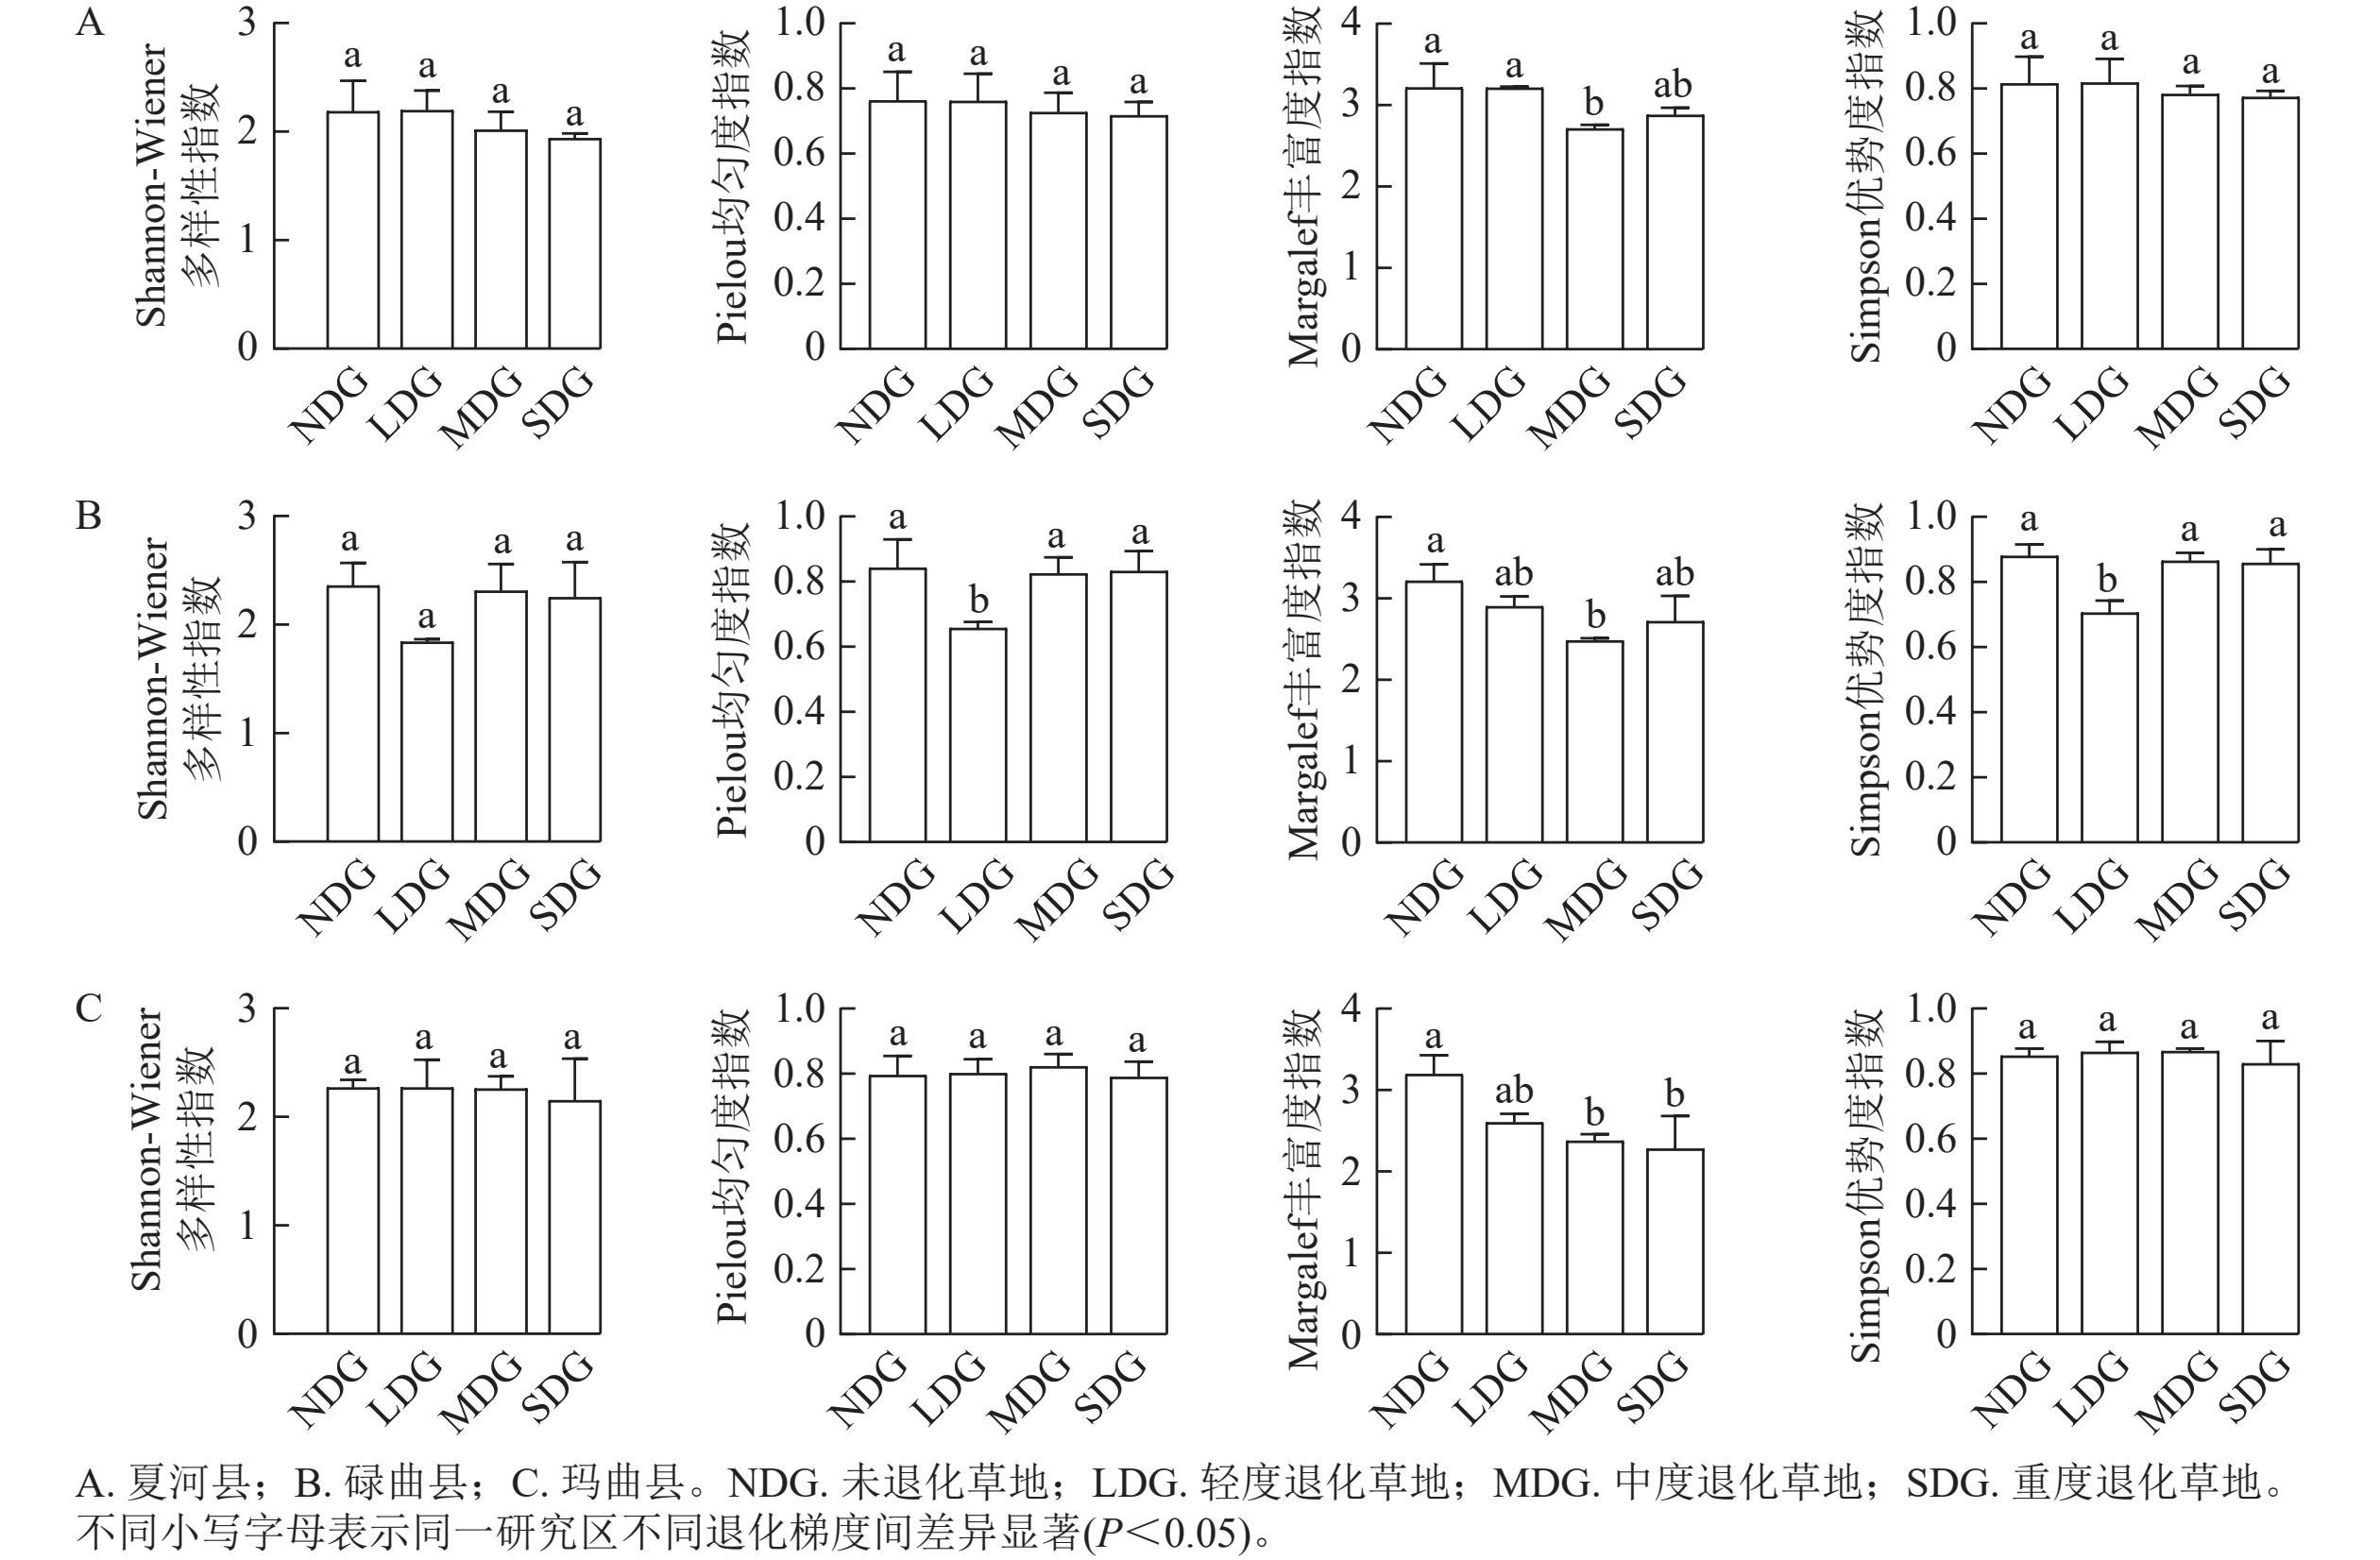
由图2可知:夏河县样地中,Shannon-Wiener多样性指数、Pielou均匀度指数和Simpson多样性指数以LDG最高、NDG次之,二者与MDG、SDG之间均无显著差异;Margalef丰富度指数方面,NDG与LDG显著高于MDG (P<0.05),而与SDG之间差异不显著。碌曲县样地中,LDG的Shannon-Wiener多样性指数、Pielou均匀度指数和Simpson多样性指数均为最低,其中Pielou均匀度指数与Simpson多样性指数在LDG与NDG、MDG、SDG之间均存在显著差异(P<0.05);Margalef丰富度指数以MDG最低,且与NDG之间存在显著差异(P<0.05)。玛曲县样地中,Shannon-Wiener多样性指数、Pielou均匀度指数和Simpson多样性指数以MDG最高、NDG次之,二者与LDG、SDG之间无显著差异;Margalef丰富度指数方面,NDG和LDG显著高于MDG和SDG (P<0.05)。
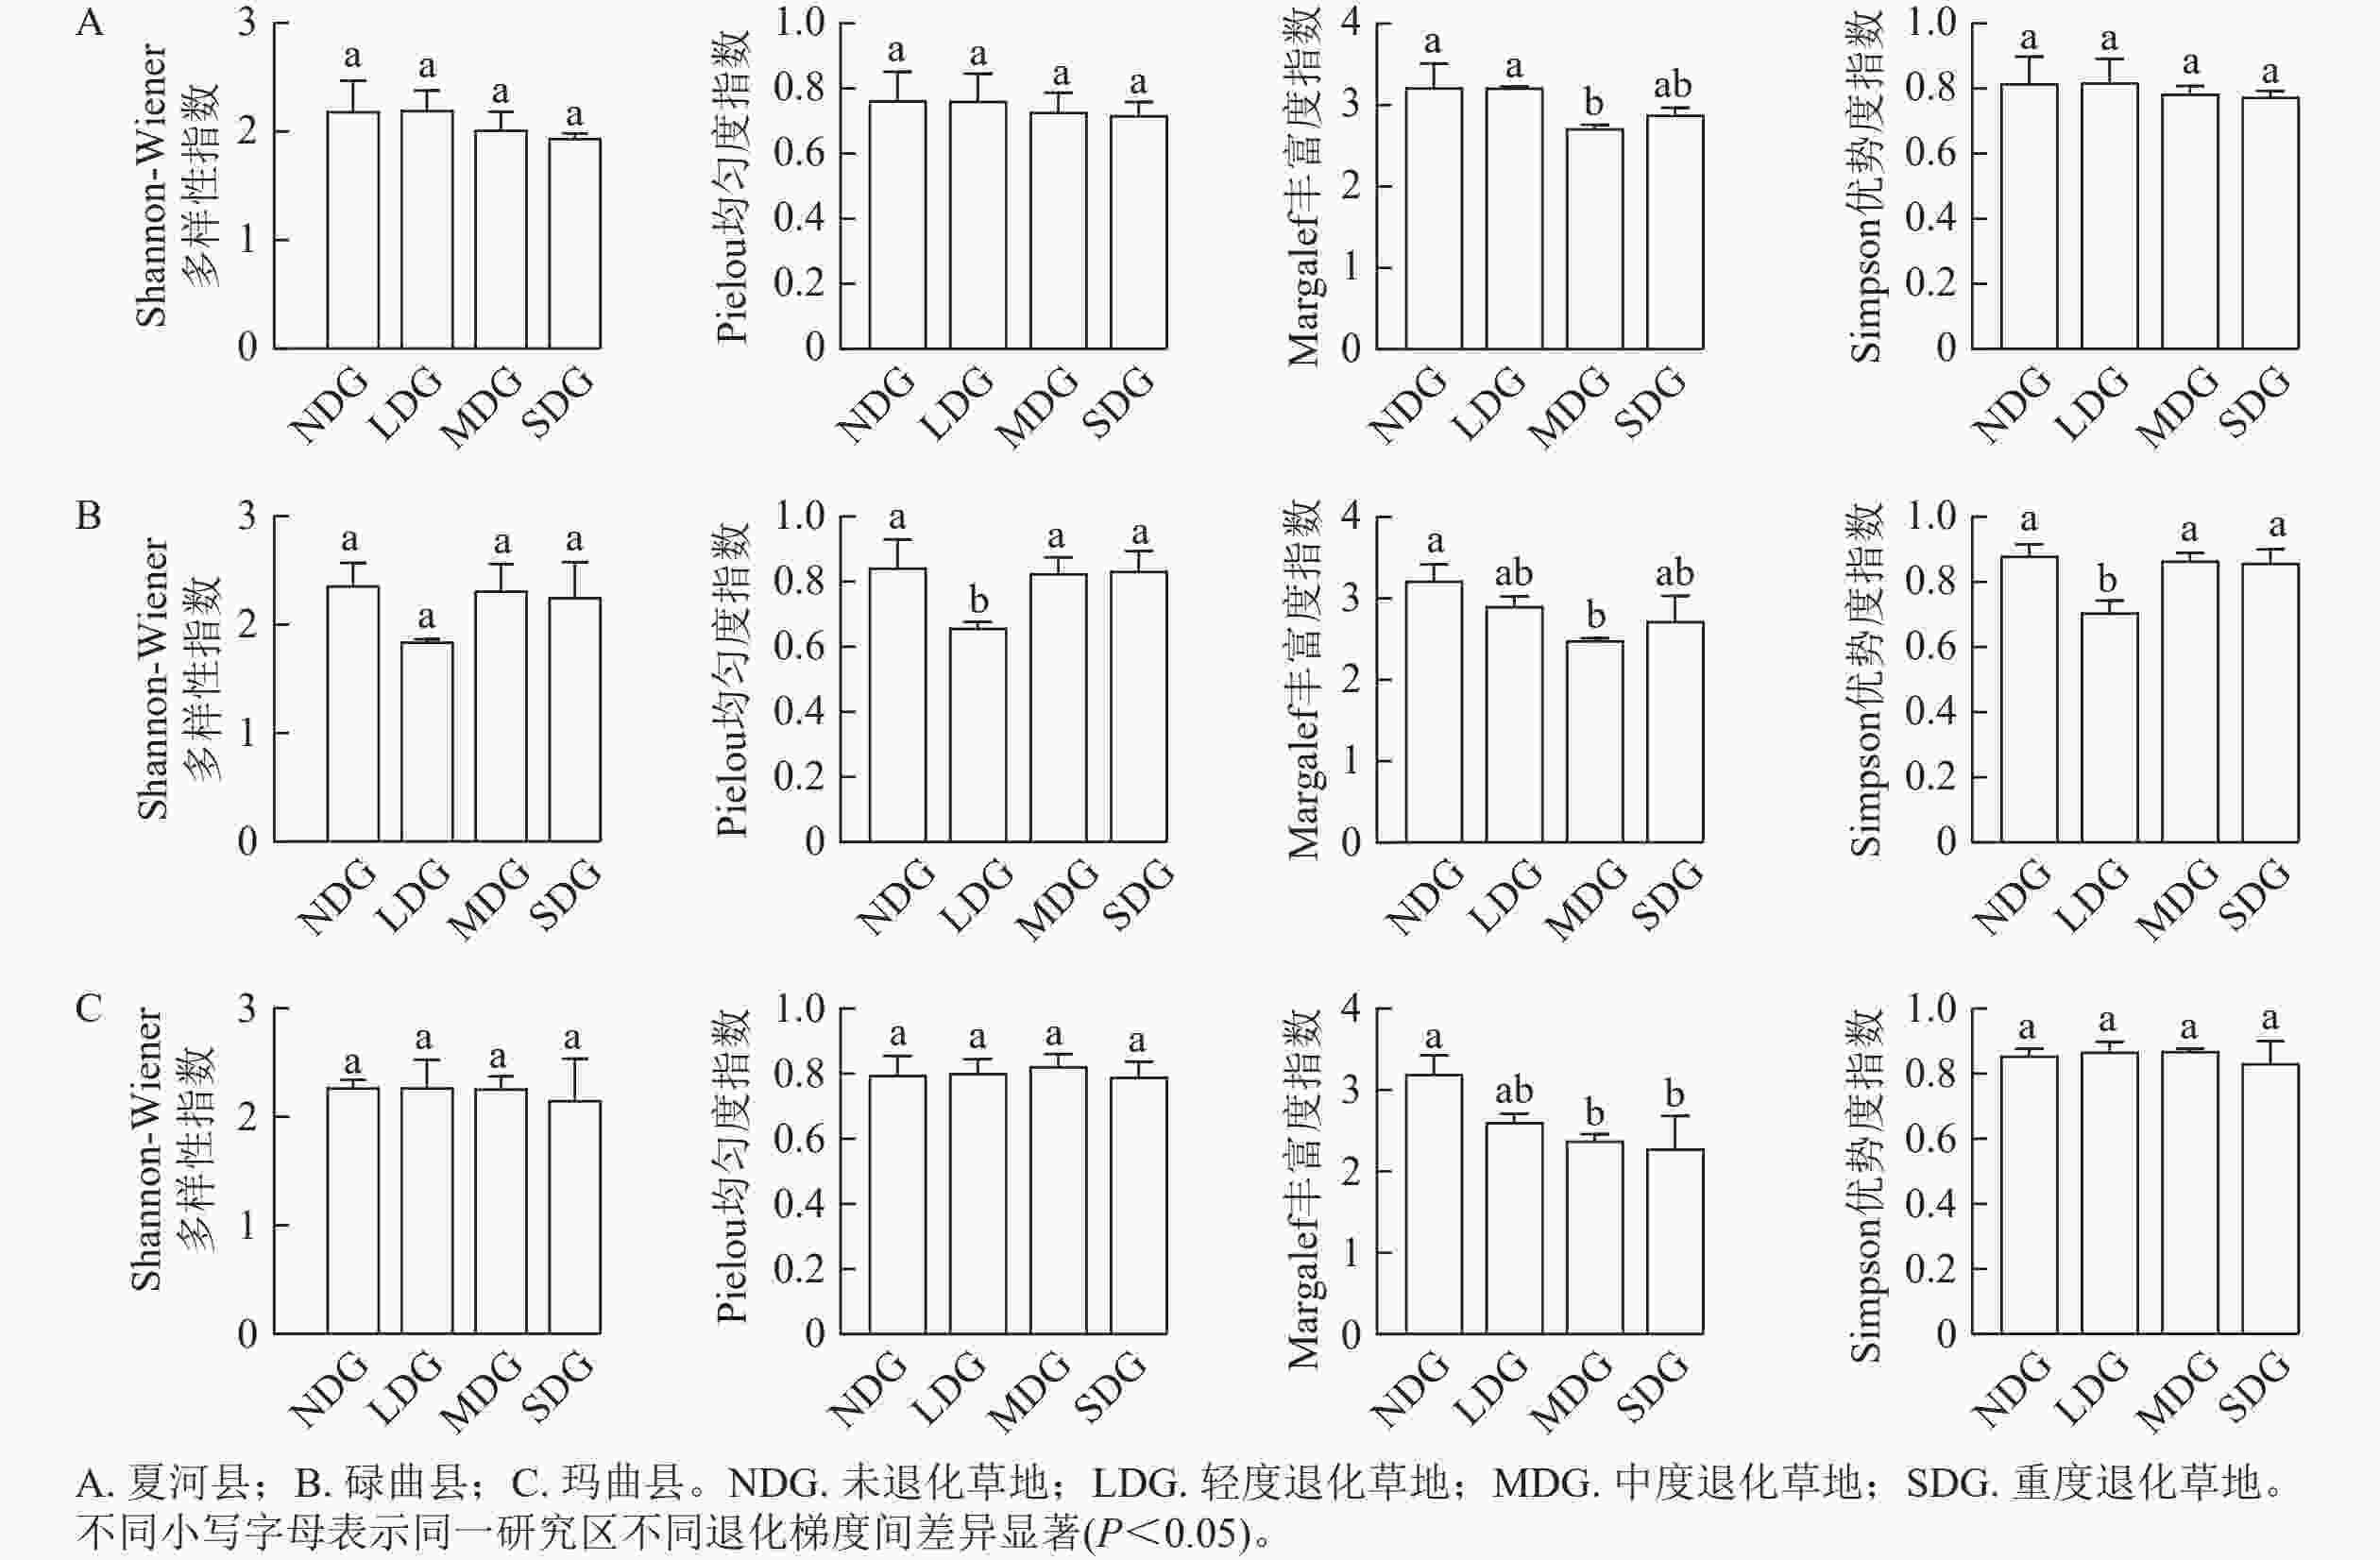
图 2 各样地不同退化梯度草地群落物种多样性变化
Figure 2. Changes in species diversity of grassland communities along degradation gradients in various sample plots
-
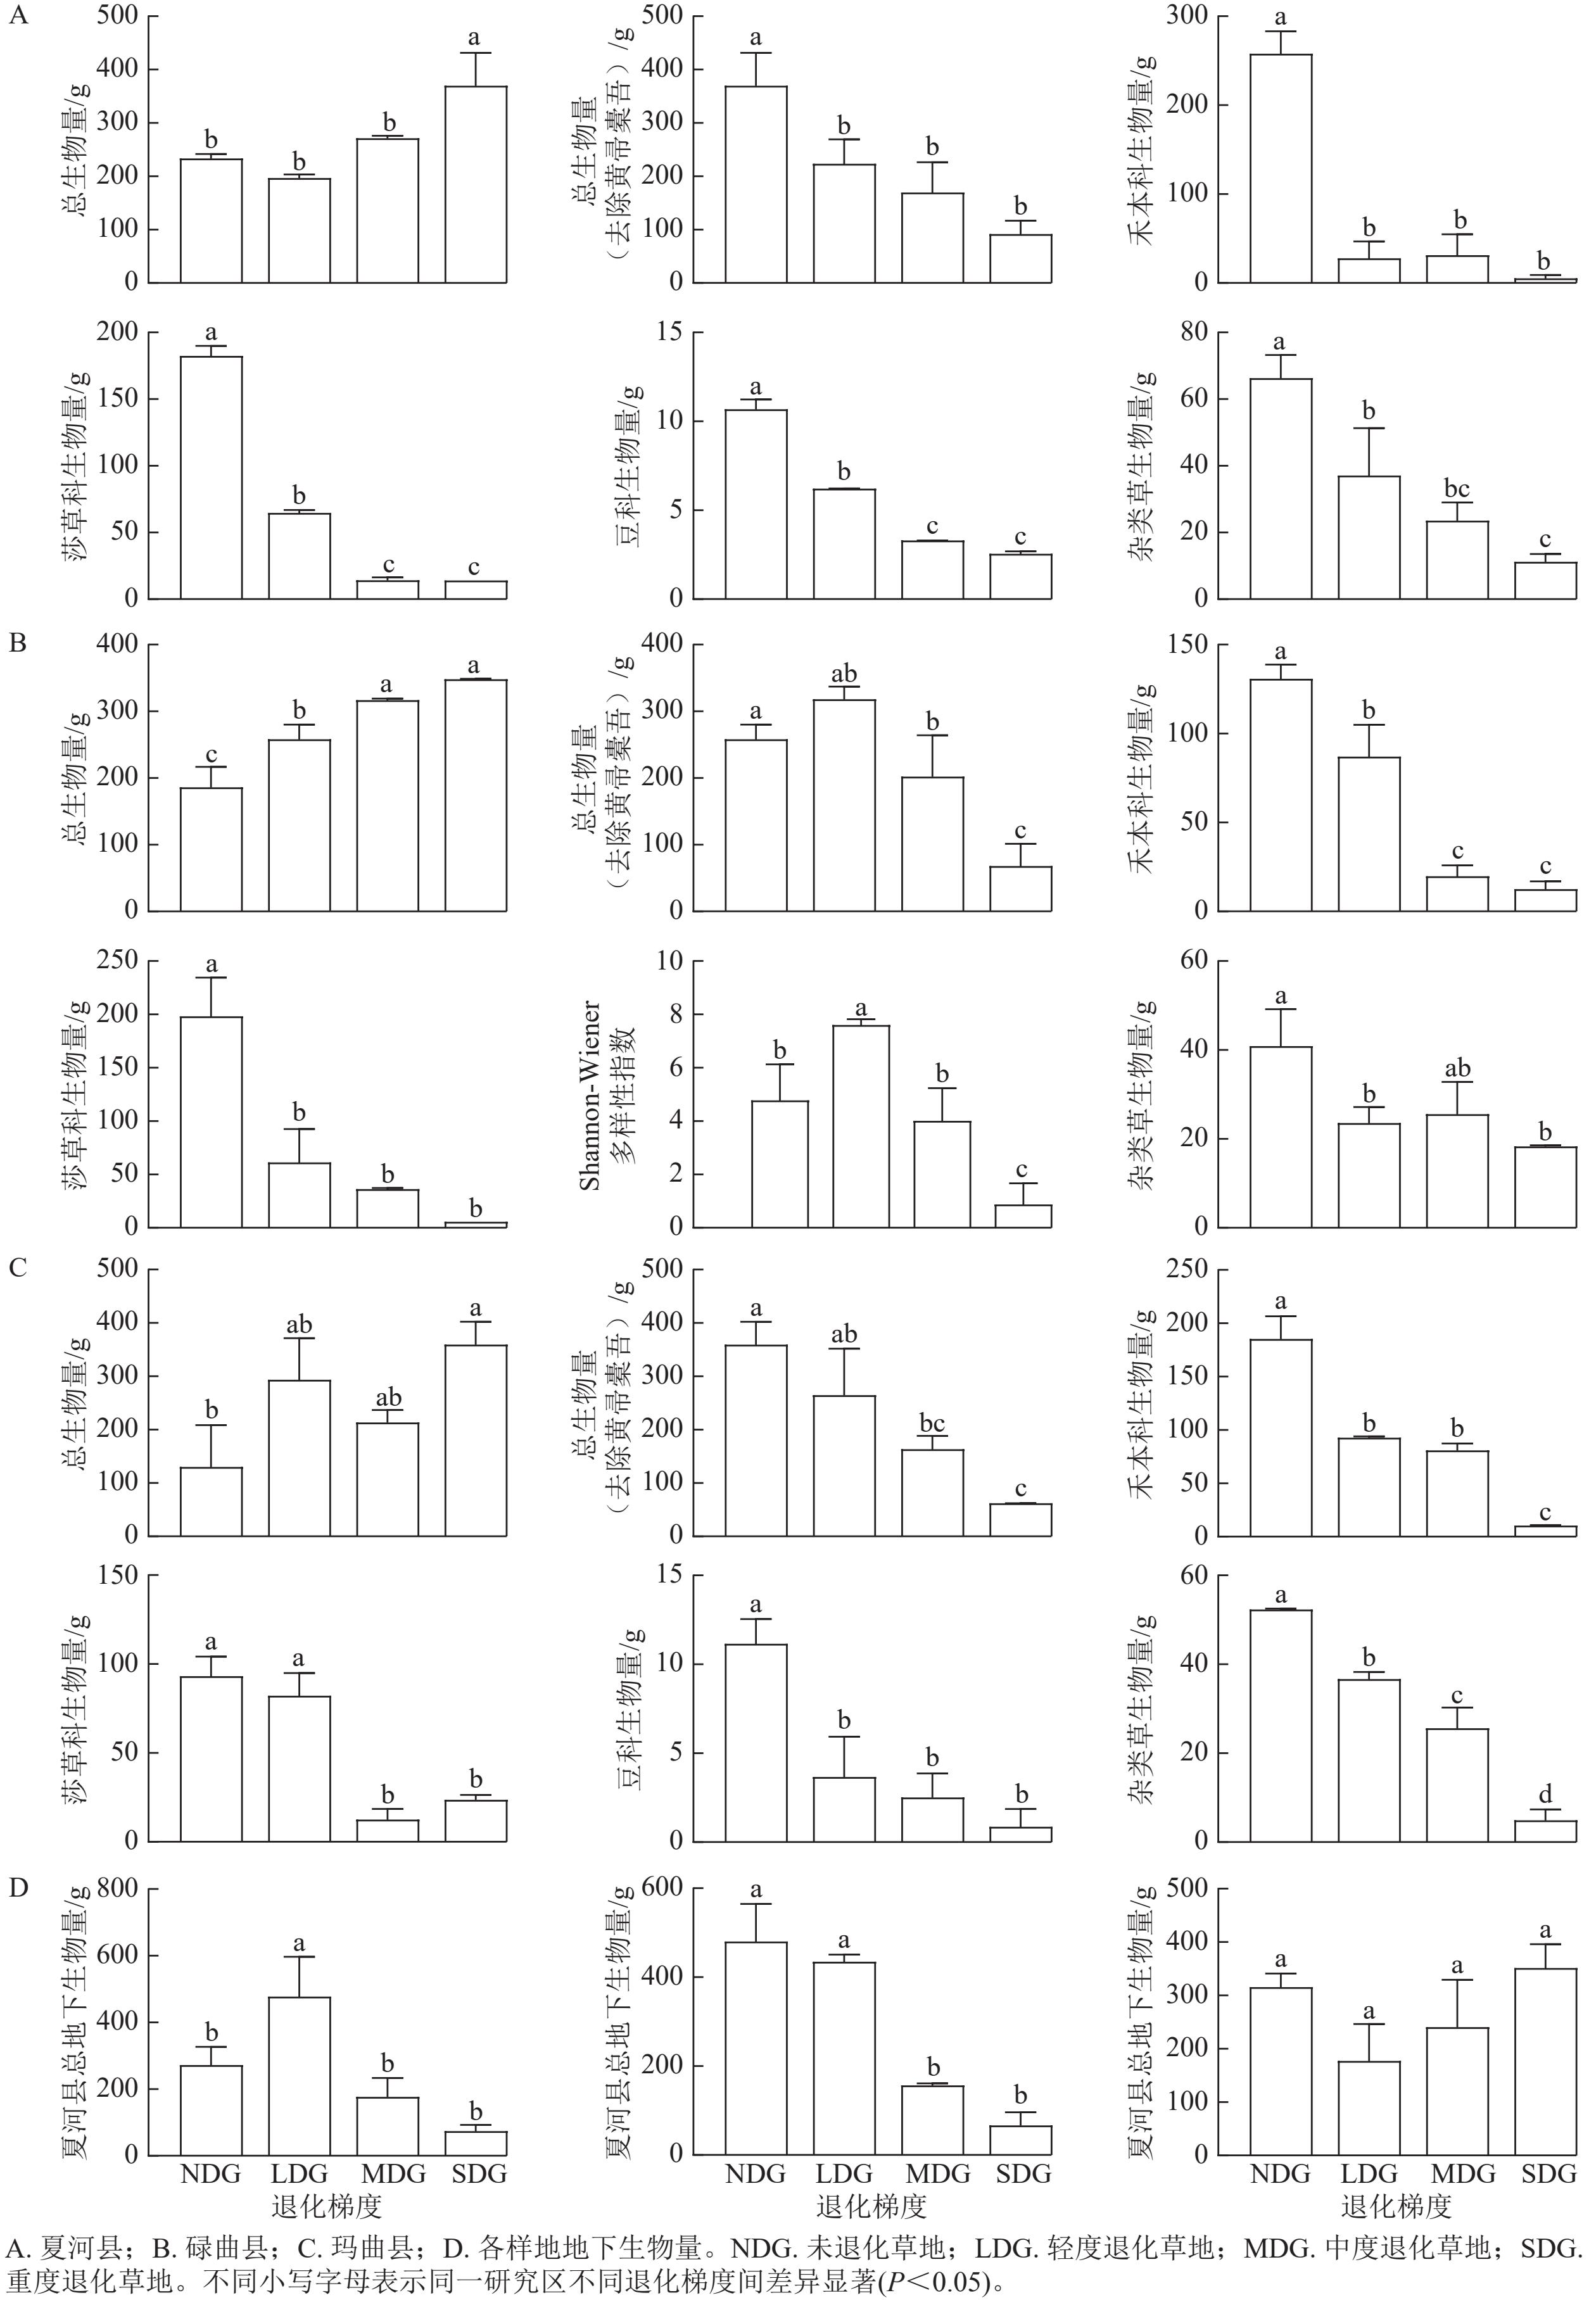
在夏河县样地(图3A),SDG的总生物量显著高于NDG、LDG和MDG (P<0.05);去除黄帚橐吾后,NDG的总生物量最高,且显著高于其他退化梯度(P<0.05)。功能群方面,禾本科生物量以NDG最高,LDG、MDG和SDG显著低于NDG (P<0.05),其中SDG禾本科生物量近乎为0;莎草科和豆科生物量以NDG最高、LDG次之、MDG较低,SDG与MDG接近;杂类草生物量以NDG最高,且与LDG存在显著差异(P<0.05),MDG与SDG无显著差异,但二者均低于NDG和LDG。在碌曲县样地(图3B),SDG总生物量最高,与NDG、LDG存在显著差异(P<0.05),MDG与SDG无显著差异;去除黄帚橐吾后,LDG总生物量最高,且与NDG无显著差异,但显著高于MDG和SDG (P<0.05)。功能群中,各退化梯度间禾本科生物量均存在显著差异(P<0.05);莎草科生物量以NDG最高,显著高于其他退化梯度(P<0.05);豆科生物量以LDG最高、NDG次之、SDG最低,SDG与其他退化梯度均存在显著差异(P<0.05);杂类草生物量以NDG最高、MDG次之,LDG与SDG无显著差异。在玛曲县样地(图3C),SDG的总生物量最高,MDG与LDG无显著差异,且二者显著高于NDG (P<0.05);去除黄帚橐吾后,NDG的总生物量最高,SDG显著低于其他退化梯度(P<0.05)。功能群方面,禾本科生物量以NDG最高,LDG与MDG无显著差异,SDG与其他退化梯度均存在显著差异(P<0.05);莎草科生物量以NDG与LDG较高,且二者无显著差异,均高于SDG、MDG;豆科生物量以NDG最高,其余退化梯度间无显著差异;各退化梯度间杂类草生物量均存在显著差异(P<0.05)。
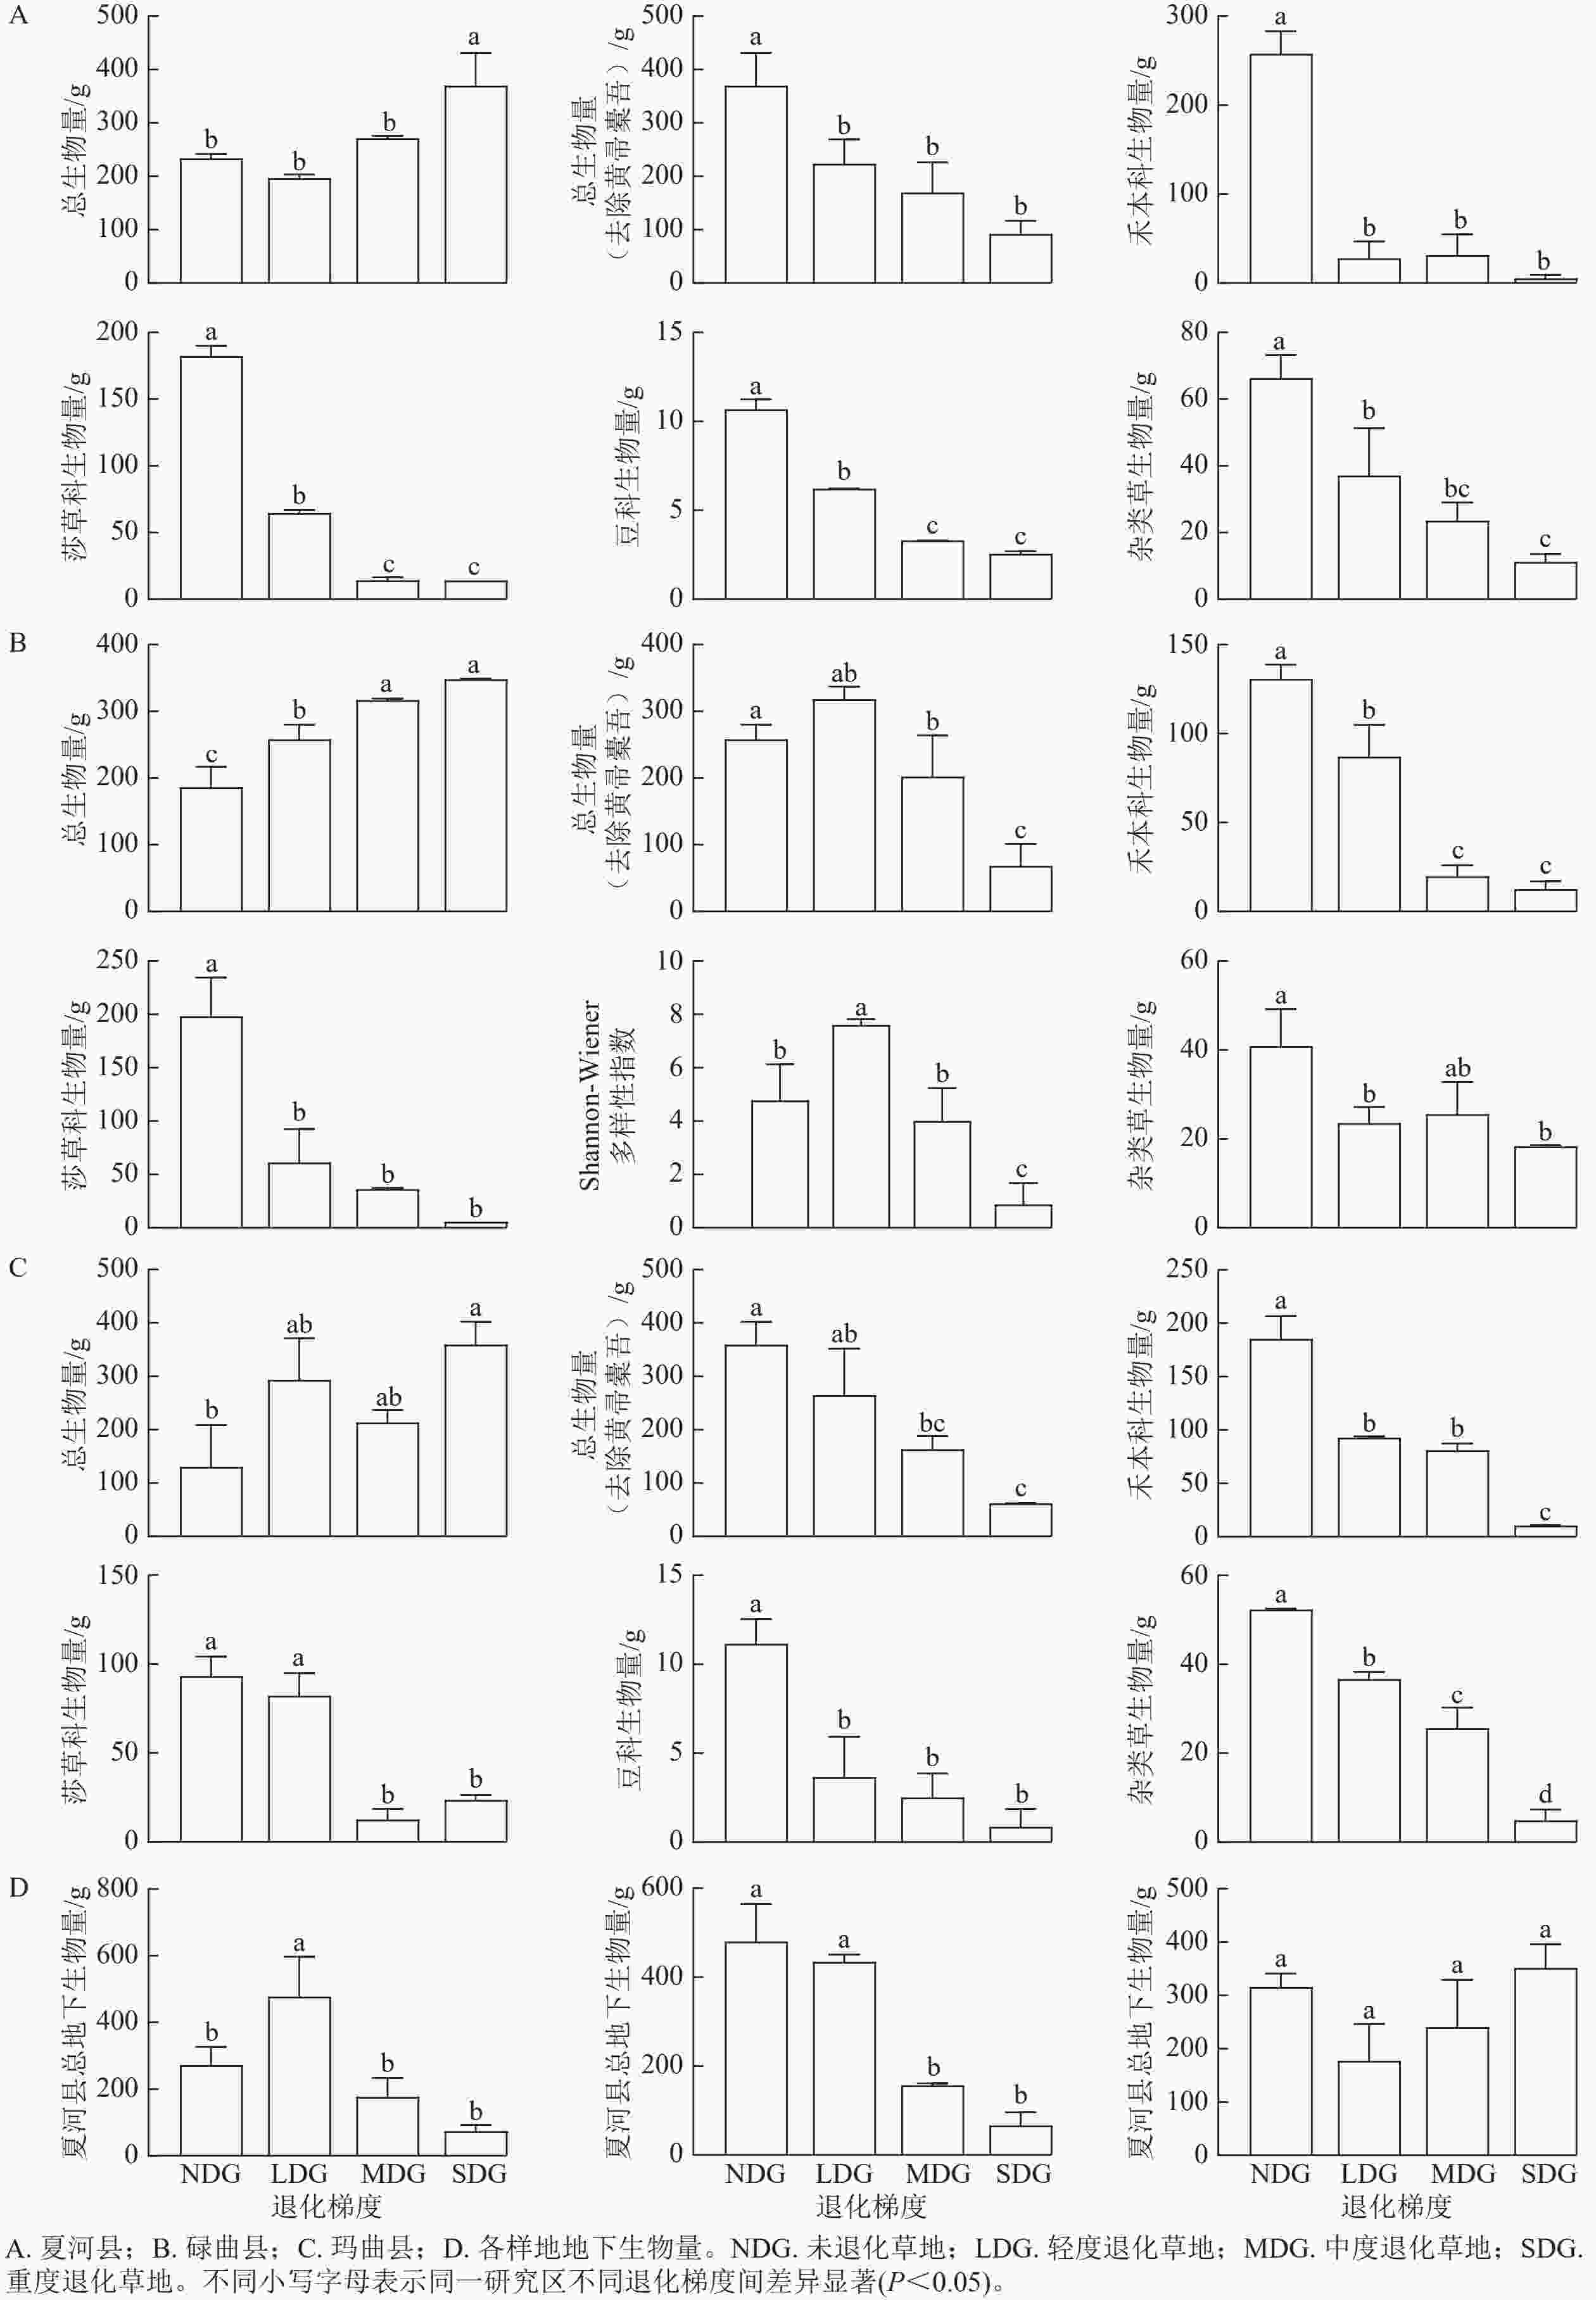
图 3 各样地不同退化梯度草地群落生物量变化
Figure 3. Changes in biomass of grassland communities along degradation gradients in various sample plots
各样地不同退化梯度下草地群落地下生物量的变化如图3D所示。在夏河县样地,LDG的地下生物量最高,且显著高于NDG、MDG、SDG (P<0.05),其余各退化梯度间无显著差异。在碌曲县样地,NDG的地下生物量最高,LDG与NDG无显著差异,且二者显著高于MDG、SDG (P<0.05),MDG与SDG无显著差异。在玛曲县样地,地下生物量从高到低依次为:SDG、NDG、MDG、LDG,但各退化梯度间均无显著差异。
-
由表4可知:群落物种多样性指数与各生物量指标之间存在显著关联(P<0.05)。夏河县样地结果表现为:莎草科地上生物量与Shannon-Wiener多样性指数、Pielou均匀度指数及Margalef丰富度指数均呈显著正相关(P<0.05)。总地下生物量与Shannon-Wiener多样性指数及Margalef丰富度指数同样呈显著正相关(P<0.05),与Pielou均匀度指数亦呈正相关。值得注意的是,总地上生物量与总地下生物量之间呈极显著负相关(P<0.01);莎草科地上生物量与总地下生物量呈显著正相关(P<0.05),豆科地上生物量与总地下生物量亦呈显著正相关(P<0.05)。
表 4 各样地草地群落物种多样性指数与草地生物量的相关性分析
Table 4. Correlation analysis between species diversity indices and grassland biomass in the sample plots
地区 Shannon-Wiener
多样性指数Pielou
均匀度指数Margalef
丰富度指数Simpson
多样性指数TAB TAB-Lv GrB CyB LeB FrB TuB 夏河县 TAB −0.476 −0.618 −0.619 −0.095 1.000 TAB-Lv 0.571 0.311 0.524 0.048 −0.690 1.000 GrB 0.333 0.228 0.262 0.071 −0.476 0.738 1.000 CyB 0.833* 0.719* 0.833* 0.405 −0.595 0.810* 0.595 1.000 LeB 0.476 0.216 0.619 0 −0.810* 0.929* 0.810* 0.780* 1.000 FrB 0.667 0.419 0.595 0.214 −0.667 0.976** 0.714* 0.833* 0.905** 1.000 TuB 0.762* 0.551 0.714* 0.476 −0.905** 0.643 0.476 0.738* 0.714* 0.667 1.000 碌曲县 TAB −0.190 0.095 −0.762* −0.143 1.000 TAB-Lv −0.595 −0.762* 0.357 −0.643 −0.619 1.000 GrB 0.095 −0.095 0.905** 0.119 −0.929** 0.619 1.000 CyB 0.143 −0.143 0.643 0.071 −0.952** 0.619 0.857* 1.000 LeB −0.381 −0.643 0.333 −0.453 −0.690* 0.881* 0.571 0.643 1.000 FrB 0.452 0.119 0.571 0.357 −0.929** 0.405 0.762* 0.881* 0.571 1.000 TuB −0.167 −0.500 0.548 −0.214 −0.833* 0.810* 0.762* 0.833* 0.881* 0.714* 1.000 玛曲县 TAB 0.238 0.143 −0.310 0.405 1.000 TAB-Lv 0.214 0.190 0.738* 0.095 −0.595 1.000 GrB 0.071 0.119 0.667 −0.024 −0.643 0.976** 1.000 CyB 0.214 −0.214 0.810* 0 −0.167 0.738* 0.690* 1.000 LeB −0.048 0.048 0.500 −0.167 −0.619 0.881* 0.929** 0.690* 1.000 FrB 0.190 0.048 0.762* 0.762* −0.619 0.976** 0.952* 0.786* 0.905* 1.000 TuB −0.262 −0.286 −0.429 −0.405 0.024 −0.286 −0.238 0.048 0.071 −0.214 1.000 说明:TAB.总地上生物量;TAB-Lv.总生物量(去除黄帚橐吾);GrB.禾本科地上生物量;CyB.莎草科地上生物量;LeB.豆科地上生物量;FrB.杂类草地上生物量;TuB.总地下生物量。*. 显著相关(P<0.05),**. 极显著相关(P<0.01)。 在碌曲县样地中,总地上生物量与Margalef丰富度指数呈显著负相关(P<0.05),且与禾本科、莎草科及杂类草地上生物量间呈极显著负相关(P<0.01)。同时,其与总地下生物量也呈显著负相关(P<0.05)。去除黄帚橐吾后,总生物量与Pielou均匀度指数呈显著负相关(P<0.05),而与禾本科、莎草科、豆科地上生物量及总地下生物量均呈显著正相关(P<0.05)。禾本科地上生物量与Margalef丰富度指数呈极显著正相关(P<0.01);莎草科地上生物量与各多样性指数均无显著相关,但与禾本科地上生物量呈显著正相关(P<0.05);豆科地上生物量分别与去除黄帚橐吾后的总地上生物量及总地下生物量呈显著正相关(P<0.05);杂类草地上生物量则与禾本科、莎草科地上生物量均呈显著正相关(P<0.05)。此外,总地下生物量不仅与去除黄帚橐吾后的总地上生物量呈显著正相关(P<0.05),同时也与禾本科、莎草科、豆科及杂类草地上生物量均呈显著正相关(P<0.05)。
在玛曲县样地中,去除黄帚橐吾后的总生物量与Margalef丰富度指数呈显著正相关(P<0.05)。禾本科地上生物量与去除黄帚橐吾后的总地上生物量呈极显著正相关(P<0.01)。莎草科地上生物量不仅与Margalef丰富度指数呈显著正相关(P<0.05),还与去除黄帚橐吾后的总地上生物量及禾本科地上生物量均呈显著正相关(P<0.05)。豆科地上生物量则与去除黄帚橐吾后的总地上生物量、莎草科地上生物量呈显著正相关(P<0.05),与禾本科地上生物量呈极显著正相关(P<0.01)。此外,杂类草地上生物量与Margalef丰富度指数、Simpson多样性指数均呈显著正相关(P<0.05),与去除黄帚橐吾后的总地上生物量呈极显著正相关(P<0.01),且与禾本科、莎草科及豆科地上生物量也均呈显著正相关(P<0.01)。
-
草地退化最直观的表现为植被群落结构改变[22],重要值可量化物种群落优势地位,明确物种层级与组成特征[23]。生态位宽度衡量物种资源利用能力,宽度越大,物种环境适应能力与资源利用能力越强,通常处于群落优势地位[24]。本研究中,3个样地NDG内,冷地早熟禾、垂穗披碱草、扁蓿豆、鹅绒委陵菜重要值较高,决定了未退化草地群落的基本结构与功能。随退化加剧,黄帚橐吾盖度上升,禾本科、莎草科、豆科植物重要值显著下降,黄帚橐吾逐渐成为优势种,取代垂穗披碱草等优良牧草,推测其通过快速生长繁殖及分泌化感物质抑制优质牧草生长,形成资源竞争[25−26]。区域物种重要值与生态位宽度表现不一致,二者是反映物种生态重要性的不同指标[27]。相关性分析显示:二者呈饱和曲线关系,生态位宽度受重要值、环境资源总量及种间竞争等因素限制[28]。3个样地二者均呈极显著正相关,体现了“资源利用能力驱动物种多样性”的生态机制[29],且相关性强度存在差异,推测与样地生境异质性、物种组成相关[30]。夏河县生境异质性高、物种生态位分化明显,相关性最强,玛曲县因物种竞争激烈或优势种生态位策略特殊,相关性较弱。
生物多样性是维系生态系统功能与服务的基石,草地物种多样性水平可反映群落结构稳定性与健康状况[31−32]。本研究中,夏河县不同退化梯度间多样性指数差异不显著,Shannon-Wiener多样性指数、Pielou均匀度指数、Margalef丰富度指数及Simpson多样性指数在LDG相对较高;玛曲县Shannon-Wiener多样性指数在MDG相对较高。在一定盖度范围内,黄帚橐吾对物种多样性具有一定维持作用,盖度过高则表现为抑制效应[33]。碌曲县Shannon-Wiener多样性指数以LDG最低,退化初期黄帚橐吾扩张可降低群落多样性;随退化程度增加,多样性有所回升,但群落以毒杂草为主,优质牧草占比降低[34]。总体来看,毒害草盖度增加可降低草地物种多样性,这与黄帚橐吾通过资源竞争与化感作用抑制优良牧草生长密切相关。
生物量分配反映植物生长策略,功能群生物量体现其群落地位与作用[35]。本研究中,三地草地总地上生物量随黄帚橐吾盖度升高显著上升,主要由黄帚橐吾生物量贡献;剔除黄帚橐吾后,地上生物量显著降低,重度退化梯度显著低于其他退化梯度,与周华坤等[36]的研究结果一致,即毒害草蔓延可维持总生物量,但优良牧草盖度比例降低。三地禾本科、莎草科与杂类草地上生物量均以未退化梯度最高,对黄帚橐吾盖度变化响应显著。碌曲县杂类草生物量在退化梯度间差异较弱,与区域物种多样性变化格局一致。豆科生物量在夏河、玛曲以未退化梯度最高,在碌曲县以轻度退化梯度最高,与优势种竞争减弱相关;退化后期生境恶化,豆科生物量显著降低,这一结果与李俊松等[37]的研究结果一致。
地下生物量对草地退化的响应较地上生物量更为敏感[38]。夏河县地下生物量在退化梯度间存在显著差异,退化初期植物光合产物更多向地下分配以维持根系生长,后期土壤结构与养分条件恶化,根系生长受抑。碌曲县地下生物量在不同退化梯度间差异显著,退化后期毒杂草比例上升,根系生物量相应提高。玛曲县地下生物量随退化加剧显著降低,与土壤物理结构、养分及微生物环境退化相关,印证黄帚橐吾盖度增加可加剧草地退化[39]。
Pearson相关性分析表明:三地黄帚橐吾型草地物种多样性与生物量的相关性存在显著区域差异。夏河县莎草科地上生物量与3类多样性指数呈显著正相关,总地下生物量与Shannon-Wiener多样性指数、Margalef丰富度指数及莎草科、豆科生物量呈显著正相关,总地上与总地下生物量呈极显著负相关,体现植物在退化梯度下的资源分配权衡特征[40]。碌曲县总地上生物量与Margalef丰富度指数、总地下生物量及各功能群生物量呈显著或极显著负相关,剔除黄帚橐吾后相关关系反转,表明黄帚橐吾是改变群落协同关系的关键因子[41]。玛曲县剔除黄帚橐吾后,总生物量与Margalef丰富度指数、各功能群生物量呈显著正相关,禾本科与豆科生物量呈极显著正相关,体现群落恢复潜力,反映区域环境与黄帚橐吾干扰的共同作用[42]。
-
本研究通过对甘南州夏河、碌曲和玛曲黄帚橐吾型退化高寒草地的植物群落结构特征研究,明确了在未退化至重度退化梯度上植物群落结构与功能的演变规律。随着退化加剧,黄帚橐吾逐步取代冷地早熟禾、垂穗披碱草等优良牧草成为优势种,导致禾本科、莎草科等重要值显著下降,群落组成发生根本性转变。地上总生物量虽随黄帚橐吾盖度增加而上升,但剔除其贡献后则显著降低,反映出草地生产力随退化而降低。地下生物量对不同区域退化进程的响应模式各异,体现了环境异质性对根系分配的调控作用。本研究表明黄帚橐吾的种群扩张通过生态竞争驱动了草地的逆向演替,在超过生态阈值后导致群落多样性下降与功能衰退。
本文已在中国知网网络首发,可在知网搜索、下载并阅读全文。
甘南州不同地区黄帚橐吾型退化高寒草地的植物群落结构变化
DOI: 10.11833/j.issn.2095-0756.20260149
Changes in plant community structure of Ligularia virgaurea-induced alpine grasslands in different regions of Gannan Prefecture
-
摘要:
目的 明确甘南藏族自治州高寒草地在黄帚橐吾Ligularia virgaurea扩张驱动下的植物群落逆向演替规律,揭示毒草型退化草地的群落结构与功能变化特征。 方法 以夏河、碌曲、玛曲三县境内典型黄帚橐吾型退化高寒草地为研究对象,设置未退化、轻度退化、中度退化、重度退化4个退化梯度,采用野外植被样方调查与数量生态学分析方法,系统探讨不同退化阶段群落结构、物种多样性及生物量的变化规律。 结果 随着退化程度加剧,禾本科Poaceae、莎草科Cyperaceae等优良牧草优势度显著下降(P<0.05),群落优势地位逐步被黄帚橐吾取代;群落物种多样性表现出明显空间异质性,夏河和玛曲样地的Shannon-Wiener指数、Pielou均匀度指数多在轻度或中度退化阶段最高,碌曲样地则在轻度退化阶段最低,物种丰富度在轻度或中度退化阶段总体显著高于其他梯度(P<0.05)。地上总生物量在3个研究区均以重度退化阶段显著最高(P<0.05),剔除黄帚橐吾后,夏河、玛曲样地未退化阶段生物量最高,碌曲样地以轻度退化最高,且优良牧草生物量均在未退化阶段达到峰值。地下生物量变化存在区域差异,夏河、碌曲样地地下生物量在重度退化阶段最低,玛曲样地则以重度退化阶段最高。 结论 黄帚橐吾扩张是驱动甘南高寒草地群落逆向演替、形成毒草型退化的关键因子,可为区域毒草型退化草地的生态修复与近自然群落重建提供科学依据。图3表4参42 Abstract:Objective This study examined the retrogressive succession of alpine grasslands in Gannan Tibetan Autonomous Prefecture under Ligularia virgaurea expansion, and the associated shifts in community structure and functional characteristics of poisonous-weed-dominated degraded grasslands. Method Taking the typical Ligularia virgaurea-degraded alpine grasslands in Xiahe, Luqu, and Maqu counties as the study area, 4 degradation gradients (non-degraded, lightly degraded, moderately degraded, and severely degraded) were established. Through field vegetation quadrat surveys combined with quantitative ecological analysis, the variations in community structure, species diversity, and biomass were systematically investigated across different successional stages of degradation. Result With increasing degradation intensity, the dominance of desirable forage species from Poaceae and Cyperaceae decreased significantly (P<0.05), and the community dominance was progressively replaced by Ligularia virgaurea. Species diversity showed marked spatial heterogeneity across sites. In Xiahe and Maqu sites, the Shannon-Wiener index and Pielou evenness index were generally highest at the lightly or moderately degraded stages, while in Luqu site, these indices were lowest at the lightly degraded stage. Species richness was significantly (P< 0.05) higher at the lightly or moderately degraded stages than at the other degradation gradients. Aboveground total biomass was significantly (P<0.05) highest at the severely degraded stage in all 3 counties. However, when Ligularia virgaurea biomass was excluded, the highest biomass was observed at the non-degraded stage in Xiahe and Maqu, and at the lightly degraded stage in Luqu. Biomass of desirable forage species consistently peaked at the non-degraded stage across all sites. Belowground biomass showed pronounced regional heterogeneity across sites. In Xiahe and Luqu sites, belowground biomass reached its minimum at the severely degraded stage, whereas in Maqu site, it peaked at the severely degraded stage. Conclusion Overall, the findings demonstrate that Ligularia virgaurea expansion is a key driver of retrogressive succession and the formation of poisonous-weed-dominated degradation in the alpine grasslands of Gannan. These results provide a scientific basis for ecological restoration and near-natural community reconstruction of poisonous-weed-degraded grasslands in this region. [Ch, 3 fig. 4 tab. 42 ref.] -
图 1 各样地不同退化梯度草地群落主要物种重要值与生态位宽度的相关性分析
Figure 1 Correlation between importance value and niche breadth of major species in grassland communities along different degradation gradient
图 2 各样地不同退化梯度草地群落物种多样性变化
Figure 2 Changes in species diversity of grassland communities along degradation gradients in various sample plots
图 3 各样地不同退化梯度草地群落生物量变化
Figure 3 Changes in biomass of grassland communities along degradation gradients in various sample plots
表 1 各地区不同退化程度下的主要植被类型
Table 1. Major vegetation types across regions under varying degradation level
样地 退化序列 黄帚橐吾盖度/% 总物种数/种 主要优势植物 夏河县 NDG 0 d 21 冷地早熟禾、垂穗披碱草、扁蓿豆、高原毛茛 LDG 20.00±2.31 c 23 红棕薹草、冷地早熟禾、扁蓿豆、鹅绒委陵菜 MDG 48.67±2.91 b 23 双柱头藨草、黄帚橐吾、扁蓿豆、冷地早熟禾 SDG 107.00±2.65 a 22 扁蓿豆、小嵩草、鹅绒委陵菜、黄帚橐吾 碌曲县 NDG 0 d 23 冷地早熟禾、红棕薹草、小嵩草、鹅绒委陵菜 LDG 21.33±2.40 c 20 红棕薹草、扁蓿豆、冷地早熟禾、鹅绒委陵菜 MDG 44.00±2.08 b 21 黑褐苔草、冷地早熟禾、黄帚橐吾、扁蓿豆 SDG 102.33±2.85 a 22 扁蓿豆、紫花地丁、鸢尾、黄帚橐吾 玛曲县 NDG 0 d 26 鹅绒委陵菜、冷地早熟禾、垂穗披碱草、扁蓿豆 LDG 18.00±2.08 c 22 红棕薹草、高山唐松草、垂穗披碱草、冷地早熟禾 MDG 39.00±2.52 b 22 扁蓿豆、黑褐苔草、冷地早熟禾、隐子草 SDG 92.33±1.20 a 22 小嵩草、黄帚橐吾、矮嵩草、紫花地丁 说明:同列不同小写字母表示不同退化序列间差异显著(P<0.05)。冷地早熟禾Poa crymophila、垂穗披碱草Elymus nutans、扁蓿豆Medicago ruthenicus、高原毛茛Ranunculus tanguticus、红棕薹草Carex przewalskii、鹅绒委陵菜Potentilla anserina、双柱头藨草Scirpus distigmaticus、小嵩草Kobresia pygmaea、黑褐苔草Carex atrofusca、紫花地丁Viola philippica、鸢尾Iris tectorum、高山唐松草Thalictrum alpinum、隐子草Cleistogenes serotina、矮嵩草Kobresia humilis。  下载: 导出CSV
表 2 草地退化梯度下各样地优势物种与重要值特征
Table 2. Dominant species and importance values along degradation gradient
地区 功能群 物种 重要值/% NDG LDG MDG SDG 夏河县 禾本科 冷地早熟禾 5.75±0.88 a 7.41±0.42 a 7.26±0.74 a 4.15±4.15 a 垂穗披碱草 10.73±0.75 b 13.93±0.62 a 6.91±2.05 c − 隐子草 − − − 4.52±0.52 莎草科 矮嵩草 1.77±0.35 b 1.65±0.34b 2.09±0.46 ab 2.55±0.27 a 黑褐苔草 − 3.94±0.77 b 6.27±0.12 a 6.31±0.20 a 红棕薹草 4.27±1.09 b 7.60±0.18 a 7.78±0.56 a − 小嵩草 − 4.30±0.85 a 1.82±1.09 b 3.27±0.25 a 双柱头藨草 − − 2.72±0.42 − 豆科 扁蓿豆 6.54±0.34 a 6.83±0.19 a 7.05±0.56 a 3.88±0.69 b 菊科 黄帚橐吾 − 7.53±0.03 b 8.17±0.67 ab 8.63±0.69 a 蔷薇科 鹅绒委陵菜 5.74±0.57 b 6.53±0.31 a 6.59±0.29 a 5.42±0.10 b 钉柱委陵菜 3.13±0.53 a 2.95±0.06 ab 1.79±0.36 c 2.35±0.44 bc 毛茛科 高山唐松草 − 1.49±0.29 a 1.66±0.32 a − 茜草科 刺果猪殃殃 − 4.06±0.88 a 3.32±0.63 a − 鸢尾科 鸢尾 − − − 1.96±0.39 伞形科 柴胡 3.85±0.18 b 3.71±0.45 b 4.31±0.35 b 5.71±1.12 a 堇菜科 紫花地丁 2.76±0.50 b 2.20±0.45 b − 4.45±0.17 a 碌曲县 禾本科 冷地早熟禾 7.71±0.05 a 7.25±1.27 ab 5.54±1.06 bc 4.63±0.88 c 垂穗披碱草 10.21±0.35 a 9.25±2.52 a 10.11±1.92 a 9.45±1.81 a 隐子草 − − − 5.55±1.60 莎草科 矮嵩草 2.27±0.44 a 2.01±0.44 a 2.15±0.41 a 2.38±0.46 a 黑褐苔草 − 2.13±0.41 b 5.66±0.29 a 2.65±0.51 b 红棕薹草 5.94±0.49 b 8.12±1.56 a 6.47±0.15 b − 小嵩草 2.55±0.30 b 3.59±0.07 a 3.82±0.69 a 3.55±0.68 a 双柱头藨草 − 1.54±0.32 b 2.67±0.51 a − 豆科 扁蓿豆 6.99±0.60 a 6.78±0.15 ab 6.81±0.65 ab 5.41±1.27 b 菊科 黄帚橐吾 − 7.01±0.10 c 8.31±0.47 b 9.87±1.07 a 蔷薇科 鹅绒委陵菜 6.84±0.49 ab 5.85±0.14 b 5.96±0.59 b 7.55±0.77 a 钉柱委陵菜 2.41±0.46 a 3.00±0.03 a 2.57±0.26 a 2.40±0.46 a 毛茛科 高山唐松草 − − 2.17±0.42 a 1.98±0.23 a 茜草科 刺果猪殃殃 − 3.98±0.75 − − 鸢尾科 鸢尾 − − − 2.57±0.57 a 伞形科 柴胡 3.86±0.41 b 2.67±0.36 c 4.77±0.44 a 3.18±0.61 bc 堇菜科 紫花地丁 2.31±0.44 b 2.17±0.42 b − 4.97±0.50 a 玛曲县 禾本科 冷地早熟禾 6.70±0.55 b 8.15±0.39 a 8.01±0.10 a − 垂穗披碱草 9.74±2.70 a 11.85±1.36 a 11.23±4.34 a − 隐子草 − − 3.13±0.04 a 3.35±0.65 a 莎草科 矮嵩草 − − 2.25±0.43 a 2.91±0.56 a 黑褐苔草 2.76±0.53 b 5.23±0.23 a 5.79±0.89 a − 红棕薹草 4.07±0.77 b 6.45±0.52 a 3.65±0.71 b − 小嵩草 3.80±0.63 b 2.42±0.46 c 3.64±0.70 b 7.19±0.09 a 双柱头藨草 − 2.37±0.46 − − 豆科 扁蓿豆 6.79±1.36 a 6.71±0.67 a 7.00±1.00 a 7.81±1.75 a 菊科 黄帚橐吾 − 8.00±1.00 a 8.76±0.86 a 11.08±3.18 a 蔷薇科 鹅绒委陵菜 6.70±1.58 a 6.92±0.89 a 4.37±0.83 ab 6.53±1.25 b 钉柱委陵菜 2.93±0.52 a 3.10±0.22 a 2.50±0.48 ab 1.78±0.36 b 毛茛科 高山唐松草 1.13±0.25 c 2.07±0.15 b 2.21±0.43 ab 2.81±0.45 a 茜草科 刺果猪殃殃 − − − − 鸢尾科 鸢尾 2.99±0.58 a − 2.34±0.45 a − 伞形科 柴胡 2.35±0.35 b 2.35±0.45 b 4.33±0.34 a 5.60±1.62 a 堇菜科 紫花地丁 − − 2.37±0.19 b 5.17±0.68 a 说明:同行不同小写字母表示同一物种不同序列间差异显著(P<0.05)。“−”表示该种植物不存在。豆科Fabaceae、菊科Asteraceae、蔷薇科Rosaceae、毛茛科Ranunculaceae、茜草科Rubiaceae、鸢尾科Iridaceae、伞形科Apiaceae、堇菜科Violaceae、钉柱委陵菜Potentilla saundersiana、刺果猪殃殃Galium echinocarpum、柴胡Bupleurum chinense。
下载: 导出CSV
表 3 各样地不同退化梯度优势物种生态位宽度
Table 3. Niche breadth of dominant species across degradation gradients in all study sites
地区 编号 优势物种 生态位宽度 地区 编号 优势物种 生态位宽度 NDG LDG MDG SDG NDG LDG MDG SDG 夏河县 1 冷地早熟禾 0.945 0.979 0.973 0.932 碌曲县 10 黄帚橐吾 – 0.943 0.997 0.992 2 垂穗披碱草 0.997 0.988 0.989 0.941 11 鹅绒委陵菜 0.996 0.995 0.992 0.993 3 隐子草 – – – 0.932 12 钉柱委陵菜 0.931 0.954 0.993 0.931 4 矮嵩草 0.926 0.928 0.930 0.933 13 高山唐松草 – – 0.929 0.901 5 黑褐苔草 – 0.933 0.969 0.921 14 刺果猪殃殃 – 0.933 – – 6 红棕薹草 0.933 0.937 0.976 – 15 鸢尾 – – – 0.931 7 小嵩草 – 0.955 0.932 0.925 16 柴胡 0.990 0.985 0.992 0.941 8 双柱头藨草 – – 0.979 – 17 紫花地丁 0.931 0.932 – 0.992 9 扁蓿豆 0.968 0.968 0.995 0.923 玛曲县 1 冷地早熟禾 0.993 0.991 0.976 – 10 黄帚橐吾 – 0.915 0.995 0.996 2 垂穗披碱草 0.998 0.998 0.994 – 11 鹅绒委陵菜 0.992 0.959 0.969 0.960 3 隐子草 – – 0.912 0.931 12 钉柱委陵菜 0.948 0.953 0.924 0.933 4 矮嵩草 – – 0.931 0.932 13 高山唐松草 – 0.931 0.930 – 5 黑褐苔草 0.955 0.994 0.931 – 14 刺果猪殃殃 – 0.807 0.933 – 6 红棕薹草 0.931 0.995 0.933 – 15 鸢尾 – – – 0.926 7 小嵩草 0.910 0.932 0.979 0.968 16 柴胡 0.995 0.957 0.933 0.928 8 双柱头藨草 – 0.931 – – 17 紫花地丁 0.974 0.923 – 0.949 9 扁蓿豆 0.986 0.992 0.974 0.987 碌曲县 1 冷地早熟禾 0.998 0.980 0.931 0.963 10 黄帚橐吾 – 0.990 0.994 0.995 2 垂穗披碱草 0.995 0.994 0.977 0.972 11 鹅绒委陵菜 0.933 0.993 0.965 0.978 3 隐子草 – – – 0.947 12 钉柱委陵菜 0.930 0.992 0.952 0.924 4 矮嵩草 0.931 0.962 0.932 0.931 13 高山唐松草 0.930 0.984 0.909 0.931 5 黑褐苔草 – 0.931 0.998 0.931 14 刺果猪殃殃 – – – – 6 红棕薹草 0.994 0.976 0.978 – 15 鸢尾 0.931 – 0.931 – 7 小嵩草 0.991 0.979 0.933 0.931 16 柴胡 0.942 0.931 0.931 0.947 8 双柱头藨草 – 0.921 0.931 – 17 紫花地丁 – – 0.923 0.949 9 扁蓿豆 0.994 0.995 0.933 0.971 说明:“−”表示该种植物不存在。
下载: 导出CSV
表 4 各样地草地群落物种多样性指数与草地生物量的相关性分析
Table 4. Correlation analysis between species diversity indices and grassland biomass in the sample plots
地区 Shannon-Wiener
多样性指数Pielou
均匀度指数Margalef
丰富度指数Simpson
多样性指数TAB TAB-Lv GrB CyB LeB FrB TuB 夏河县 TAB −0.476 −0.618 −0.619 −0.095 1.000 TAB-Lv 0.571 0.311 0.524 0.048 −0.690 1.000 GrB 0.333 0.228 0.262 0.071 −0.476 0.738 1.000 CyB 0.833* 0.719* 0.833* 0.405 −0.595 0.810* 0.595 1.000 LeB 0.476 0.216 0.619 0 −0.810* 0.929* 0.810* 0.780* 1.000 FrB 0.667 0.419 0.595 0.214 −0.667 0.976** 0.714* 0.833* 0.905** 1.000 TuB 0.762* 0.551 0.714* 0.476 −0.905** 0.643 0.476 0.738* 0.714* 0.667 1.000 碌曲县 TAB −0.190 0.095 −0.762* −0.143 1.000 TAB-Lv −0.595 −0.762* 0.357 −0.643 −0.619 1.000 GrB 0.095 −0.095 0.905** 0.119 −0.929** 0.619 1.000 CyB 0.143 −0.143 0.643 0.071 −0.952** 0.619 0.857* 1.000 LeB −0.381 −0.643 0.333 −0.453 −0.690* 0.881* 0.571 0.643 1.000 FrB 0.452 0.119 0.571 0.357 −0.929** 0.405 0.762* 0.881* 0.571 1.000 TuB −0.167 −0.500 0.548 −0.214 −0.833* 0.810* 0.762* 0.833* 0.881* 0.714* 1.000 玛曲县 TAB 0.238 0.143 −0.310 0.405 1.000 TAB-Lv 0.214 0.190 0.738* 0.095 −0.595 1.000 GrB 0.071 0.119 0.667 −0.024 −0.643 0.976** 1.000 CyB 0.214 −0.214 0.810* 0 −0.167 0.738* 0.690* 1.000 LeB −0.048 0.048 0.500 −0.167 −0.619 0.881* 0.929** 0.690* 1.000 FrB 0.190 0.048 0.762* 0.762* −0.619 0.976** 0.952* 0.786* 0.905* 1.000 TuB −0.262 −0.286 −0.429 −0.405 0.024 −0.286 −0.238 0.048 0.071 −0.214 1.000 说明:TAB.总地上生物量;TAB-Lv.总生物量(去除黄帚橐吾);GrB.禾本科地上生物量;CyB.莎草科地上生物量;LeB.豆科地上生物量;FrB.杂类草地上生物量;TuB.总地下生物量。*. 显著相关(P<0.05),**. 极显著相关(P<0.01)。
下载: 导出CSV
-
[1] 边多, 李春, 杨秀海, 等. 藏西北高寒牧区草地退化现状与机理分析[J]. 自然资源学报, 2008, 23(2): 254−262. BIAN Duo, LI Chun, YANG Xiuhai, et al. Analysis of the situation of grassland degradation and it’s mechanism of the alpine pastoral area in northwestern Tibet[J]. Journal of Natural Resources, 2008, 23(2): 254−262. DOI: 10.11849/zrzyxb.2008.02.010. [2] YU Jialuo, SHI Peili, ZONG Ning, et al. The desertification process alters soil microbial metabolic limitations and their effects on soil carbon sequestration in a Tibetan alpine steppe[J]. Journal of Integrative Agriculture, 2025, 24(3): 845−858. DOI: 10.1016/j.jia.2024.07.038. [3] DONG Shikui, ZHANG Yong, SHEN Hao, et al. Grassland degradation and restoration[M]//DONG Shikui, ZHANG Yong, SHEN Hao, et al. Grasslands on the Third Pole of the World: Structure, Function, Process, and Resilience of Social-Ecological Systems. Cham: Springer, 2023: 269−310. DOI: 10.1007/978-3-031-39485-0_9. [4] 王玉琴, 宋梅玲, 周睿, 等. 高寒草甸不同黄帚橐吾密度斑块的植物群落结构特征[J]. 草地学报, 2022, 30(9): 2264−2272. WANG Yuqin, SONG Meiling, ZHOU Rui, et al. Characteristics of plant community structure of different Ligularia virgaurea density patches in alpine meadow[J]. Acta Agrestia Sinica, 2022, 30(9): 2264−2272. DOI: 10.11733/j.issn.1007-0435.2022.09.005. [5] DONG Rui, WEI Caibo, DONG Kechi, et al. The expansion of native poisonous plants in degraded Tibetan pastures enhances plant diversity via soil-mediated processes[J]. Ecological Indicators, 2025, 179: 114147. DOI: 10.1016/j.ecolind.2025.114147. [6] 马建国, 李玉满, 王树林, 等. 典型黄帚橐吾型退化草地形成过程中土壤和植被特征[J]. 应用生态学报, 2023, 34(8): 2153−2160. MA Jianguo, LI Yuman, WANG Shulin, et al. Soil and vegetation characteristics during the formation of typical Ligularia virgaurea degraded grassland[J]. Chinese Journal of Applied Ecology, 2023, 34(8): 2153−2160. DOI: 10.13287/j.1001-9332.202308.007. [7] 余钱雯. 黄帚橐吾密度与高寒草地植物和土壤养分关系的研究[D]. 西宁: 青海大学, 2024. YU Qianwen. Study on the Relationship Between the Density of Ligularia virgaurea and Plant and Soil Nutrients in Alpine Grassland[D]. Xining: Qinghai University, 2024. DOI: 10.27740/d.cnki.gqhdx.2024.000371. [8] SOGAN N, KALA S, KAPOOR N, et al. Phytochemical analysis of Spergula arvensis and evaluation of its larvicidal activity against malarial vector An. culicfiacies[J]. South African Journal of Botany, 2021, 137: 351−358. DOI: 10.1016/j.sajb.2020.11.006. [9] 朱慧, 马瑞君, 陈树思, 等. 高寒草场主要牧草对黄帚橐吾水浸液化感胁迫的生理响应[J]. 草业学报, 2007, 16(5): 102−106. ZHU Hui, MA Ruijun, CHEN Shusi, et al. Physiological responses of main pasture plants in psychro-grassland to allelopathic stress of aqueous extracts from Ligularia virgaurea[J]. Acta Prataculturae Sinica, 2007, 16(5): 102−106. DOI: 10.3321/j.issn:1004-5759.2007.05.014. [10] 张国娟, 刘旻霞, 李博文, 等. 玛曲高寒草甸植物黄帚橐吾与莓叶委陵菜种群点格局分析[J]. 生态学杂志, 2021, 40(6): 1660−1668. ZHANG Guojuan, LIU Minxia, LI Bowen, et al. Point pattern analysis of Ligularia virgaurea and Potentilla fragarioides populations in Maqu alpine meadow[J]. Chinese Journal of Ecology, 2021, 40(6): 1660−1668. DOI: 10.13292/j.1000-4890.202106.001. [11] 刘旻霞, 李博文, 孙瑞弟, 等. 高寒草甸黄帚橐吾种群根际/非根际土壤可培养微生物群落特征[J]. 生态学报, 2021, 41(12): 4853−4863. LIU Minxia, LI Bowen, SUN Ruidi, et al. Characteristics of culturable microbial communities in rhizosphere/non- rhizosphere soils of Ligularia virgaurea in alpine meadow elevation gradient[J]. Acta Ecologica Sinica, 2021, 41(12): 4853−4863. DOI: 10.5846/stxb202004240987. [12] 王树茂. 夏河退化草原人工种草各个模式性能分析报告[J]. 畜牧兽医杂志, 2021, 40(6): 160−162, 164. WANG Shumao. Analysis report on the performance of various models of artificial grass planting in Xiahe degraded grassland[J]. Journal of Animal Science and Veterinary Medicine, 2021, 40(6): 160−162, 164. DOI: 10.3969/j.issn.1004-6704.2021.06.052. [13] 许世洋, 李雪萍, 李敏权, 等. 青藏高原高寒草甸退化对草地群落多样性及土壤特性的影响[J]. 中国草地学报, 2022, 44(8): 20−27. XU Shiyang, LI Xueping, LI Minquan, et al. Effects of alpine meadow degradation on the grassland community diversity and soil properties on the Tibetan Plateau[J]. Chinese Journal of Grassland, 2022, 44(8): 20−27. DOI: 10.16742/j.zgcdxb.20210370. [14] ZHANG Shiting, LIU Junpeng, BAO Xiaohui, et al. Seed-to-seed potential allelopathic effects between Ligularia virgaurea and native grass species of Tibetan alpine grasslands[J]. Ecological Research, 2011, 26(1): 47−52. DOI: 10.1007/s11284-010-0751-x. [15] XUE Xian, GUO Jian, HAN Bangshuai, et al. The effect of climate warming and permafrost thaw on desertification in the Qinghai-Tibetan Plateau[J]. Geomorphology, 2009, 108(3/4): 182−190. DOI: 10.1016/j.geomorph.2009.01.004. [16] 王黎黎, 张克斌, 程中秋, 等. 半干旱区围栏封育草场植物生态位特征研究——以宁夏盐池长期定位监测点为例[J]. 湖南农业科学, 2011(13): 129−133. WANG Lili, ZHANG Kebin, CHENG Zhongqiu, et al. Niche characters of plants in fencing rangeland in semi-arid area−taking Yanchi County of Ningxia Province as an example[J]. Hunan Agricultural Sciences, 2011(13): 129−133. DOI: 10.16498/j.cnki.hnnykx.2011.13.047. [17] 徐满厚, 杨晓辉, 杜荣, 等. 增温改变高寒草甸植物群落异速生长关系[J]. 草业科学, 2021, 38(4): 618−629. XU Manhou, YANG Xiaohui, DU Rong, et al. Effects of simulated warming on the allometric growth patterns of an alpine meadow community on the Qinghai-Tibet Plateau[J]. Pratacultural Science, 2021, 38(4): 618−629. DOI: 10.11829/j.issn.1001-0629.2020-0694. [18] 张世雄, 秦瑞敏, 杨晓艳, 等. 山西吕梁山草本群落物种多样性的海拔梯度格局及与环境因子的关系[J]. 广西植物, 2020, 40(12): 1860−1868. ZHANG Shixiong, QIN Ruimin, YANG Xiaoyan, et al. Patterns of species diversity in herbaceous communities at different altitude gradients and their relationships with environmental factors in Lüliang Mountains in Shanxi Province, China[J]. Guihaia, 2020, 40(12): 1860−1868. DOI: 10.11931/guihaia.gxzw201909020. [19] 布仁图雅, 姜慧敏. 三种重要值计算方法的比较分析[J]. 环境与发展, 2014, 26(6): 64−67. BU Rentuya, JIANG Huimin. Comparative analysis of three different IV analyzing methods[J]. Environment and Development, 2014, 26(6): 64−67. DOI: 10.3969/j.issn.1007-0370.2014.06.020. [20] THUKRAL A K, BHARDWAJ R, KUMAR V, et al. New indices regarding the dominance and diversity of communities, derived from sample variance and standard deviation[J]. Heliyon, 2019, 5(10): e02606. DOI: 10.1016/j.heliyon.2019.e02606. [21] PIELOU E C. Niche width and niche overlap: a method for measuring them[J]. Ecology, 1972, 53(4): 687−692. DOI: 10.2307/1934784. [22] WANG Xiaoyun, XIAO Yuanming, WANG Wenying, et al. Alpine steppe degradation weakens ecosystem multifunctionality through the decline in climax dominant species on the Qinghai-Tibetan Plateau[J]. Frontiers in Plant Science, 2025, 16: 1650352. DOI: 10.3389/fpls.2025.1650352. [23] 周云娟. 四川荣县金花乡桫椤自然保护区桫椤(Alsophila spinulosa)种群结构与动态分析[D]. 雅安: 四川农业大学, 2011. ZHOU Yunjuan. Population Structure & Dynamics Analysis of Alsophila spinulosa in Jinhua Nature Reserve, Rongxian, Sichuan[D]. Ya’an: Sichuan Agricultural University, 2011. [24] 陈文业, 戚登臣, 李广宇, 等. 甘南高寒退化草地生态位特征及生产力研究[J]. 自然资源学报, 2010, 25(1): 80−90. CHEN Wenye, QI Dengchen, LI Guangyu, et al. Study on degraded grassland niche characteristics and productivity of alpine meadow at Maqu in south of Gansu Province[J]. Journal of Natural Resources, 2010, 25(1): 80−90. [25] 刘左军, 杜国祯, 陈家宽. 不同生境下黄帚橐吾(Ligularia virgaurea)个体大小依赖的繁殖分配[J]. 植物生态学报, 2002, 26(1): 44−50. LIU Zuojun, DU Guozhen, CHEN Jiakuan. Size-dependent reproductive allocation of Ligularia virgaurea in different habitats[J]. Chinese Journal of Plant Ecology, 2002, 26(1): 44−50. [26] 王明理. 高寒草场优势毒杂草黄帚橐吾对牧草化感作用的研究[D]. 兰州: 西北师范大学, 2006. WANG Mingli. Allelopathy of the Dominant Noxious Weed Ligularia virgaurea on Pasture Plants in Psychro-grasslands[D]. Lanzhou: Northwest Normal University, 2006. [27] 黄绪梅. 荒漠草原植被特征对降水减少的响应[D]. 银川: 宁夏大学, 2022. HUANG Xumei. Response in a Desert Steppe Vegetation Characteristics to Changes in Precipitation Reduction[D]. Yinchuan: Ningxia University, 2022. DOI: 10.27257/d.cnki.gnxhc.2022.000179. [28] 邓逸飞, 王郅臻, 段文标, 等. 小兴安岭地区不同演替阶段林下植物多样性及其优势种生态位特征[J]. 生态学报, 2025, 45(12): 6000−6011. DENG Yifei, WANG Zhizhen, DUAN Wenbiao, et al. Understory plant diversity and niche characteristics of dominant species at different succession stages in Xiaoxing’an Mountains[J]. Acta Ecologica Sinica, 2025, 45(12): 6000−6011. DOI: 10.20103/j.stxb.202408292067. [29] 张孟容, 郭敏娜, 蔡翠芳. 基于ArcGIS的运城市盐湖区药用植物多样性分析[J]. 山西中医药大学学报, 2020, 21(6): 452−456. ZHANG Mengrong, GUO Minna, CAI Cuifang. Analysis of diversity of medicinal plants of Yuncheng Yanhu District based on ArcGIS[J]. Journal of Shanxi University of Chinese Medicine, 2020, 21(6): 452−456. DOI: 10.19763/j.cnki.2096-7403.2020.06.19. [30] CARDINALE B J, DUFFY J E, GONZALEZ A, et al. Biodiversity loss and its impact on humanity[J]. Nature, 2012, 486(7401): 59−67. DOI: 10.1038/nature11148. [31] ZHANG Yong, DONG Shikui, GAO Qingzhu, et al. Responses of alpine vegetation and soils to the disturbance of plateau pika (Ochotona curzoniae) at burrow level on the Qinghai-Tibetan Plateau of China[J]. Ecological Engineering, 2016, 88: 232−236. DOI: 10.1016/j.ecoleng.2015.12.034. [32] 尹海燕, 初晓辉, 单贵莲, 等. 不同大狼毒覆盖度退化亚高山草甸群落结构及物种多样性研究[J]. 云南农业大学学报(自然科学), 2019, 34(3): 473−478. YIN Haiyan, CHU Xiaohui, SHAN Guilian, et al. Study on the community structure and species diversity of degraded subalpine meadow with different coverages of Euphorbia jolkinii[J]. Journal of Yunnan Agricultural University (Natural Science), 2019, 34(3): 473−478. DOI: 10.12101/j.issn.1004-390X(n).201804052. [33] 邓燕, 李钒, 姚树冉, 等. 不同程度退化草地的植被土壤特征及其相互间的关系[J]. 草业科学, 2021, 38(7): 1260−1269. DENG Yan, LI Fan, YAO Shuran, et al. Vegetation and soil characteristics of degraded grassland and their relationship[J]. Pratacultural Science, 2021, 38(7): 1260−1269. DOI: 10.11829/j.issn.1001-0629.2021-0101. [34] 王玉琴, 张千山, 王宏生, 等. 围封对黄帚橐吾型退化草地植被群落特征的影响[J]. 青海畜牧兽医杂志, 2024, 54(1): 1−7, 23. WANG Yuqin, ZHANG Qianshan, WANG Hongsheng, et al. Effects of enclosure on vegetation community characteristics of Ligularia virgaurea−dominatedegraded grassland[J]. Chinese Qinghai Journal of Animal and Veterinary Sciences, 2024, 54(1): 1−7, 23. DOI: 10.3969/j.issn.1003-7950.2024.01.001. [35] 张帆, 李元淳, 王新, 等. 青藏高原高寒草甸退化对草地群落生物量及其分配的影响[J]. 草业科学, 2021, 38(8): 1451−1458. ZHANG Fan, LI Yuanchun, WANG Xin, et al. Effect of rangeland degradation on biomass allocation in alpine meadows on the Qinghai-Tibet Plateau, China[J]. Pratacultural Science, 2021, 38(8): 1451−1458. DOI: 10.11829/j.issn.1001-0629.2020-0710. [36] 周华坤, 赵新全, 周立, 等. 青藏高原高寒草甸的植被退化与土壤退化特征研究[J]. 草业学报, 2005, 14(3): 31−40. ZHOU Huakun, ZHAO Xinquan, ZHOU Li, et al. A study on correlations between vegetation degradation and soil degradation in the ‘Alpine Meadow’ of the Qinghai-Tibetan Plateau[J]. Acta Prataculturae Sinica, 2005, 14(3): 31−40. DOI: 10.3321/j.issn:1004-5759.2005.03.005. [37] 李俊松, 万正林, 白林忠, 等. 勐仑热带季节雨林草本层主要物种生态位与种间联结[J]. 绿色科技, 2023, 25(6): 1−5. LI Junsong, WAN Zhenglin, BAI Linzhong, et al. Niche and interspecific association of main species in understory herbaceous layer of tropical seasonal rainforest in Menglun[J]. Journal of Green Science and Technology, 2023, 25(6): 1−5. DOI: 10.16663/j.cnki.lskj.2023.06.046. [38] 孟祥玉, 范舒欣, 董丽, 等. 北京城市森林林下植物多样性与土壤因子的相关性[J]. 东北林业大学学报, 2023, 51(7): 102−114. MENG Xiangyu, FAN Shuxin, DONG Li, et al. Correlation between understory plant diversity and soil factors in Beijing urban forests[J]. Journal of Northeast Forestry University, 2023, 51(7): 102−114. DOI: 10.13759/j.cnki.dlxb.2023.07.017. [39] 李军豪, 杨国靖, 王少平. 青藏高原区退化高寒草甸植被和土壤特征[J]. 应用生态学报, 2020, 31(6): 2109−2118. LI Junhao, YANG Guojing, WANG Shaoping. Vegetation and soil characteristics of degraded alpine meadows on the Qinghai-Tibet Plateau, China: a review[J]. Chinese Journal of Applied Ecology, 2020, 31(6): 2109−2118. DOI: 10.13287/j.1001-9332.202006.002. [40] 魏晶晶, 秦瑞敏, 张中华, 等. 不同退化程度高寒草地植物群落与土壤性质变化及相关性分析[J]. 草地学报, 2022, 30(11): 3035−3045. Wei Jingjing, QIN Runmin, ZHANG Zhonghua, et al. Characteristics and interrelationship of plant community and soil properties in different degraded alpine grasslands[J]. Acta Agrestia Sinica, 2022, 30(11): 3035−3045. DOI: 10.11733/j.issn.1007-0435.2022.11.020. [41] 马应忠. 乌兰县天然草地植被指数的计算及其相关性分析[J]. 中国草食动物科学, 2012, 32(4): 41−43. MA Yingzhong. Calculation of grassland vegetation indexes and their relationships[J]. China Herbivore Science, 2012, 32(4): 41−43. DOI: 10.3969/j.issn.2095-3887.2012.04.013. [42] 王玉琴. 黄帚橐吾斑块密度与高寒草甸植被和土壤的关系研究[D]. 西宁: 青海大学, 2023. WANG Yuqin. Study on Relationship Between the Patch Density of Ligularia virgaurea and Vegetation and Soil in Alpine Meadow[D]. Xining: Qinghai University, 2023. DOI:10.27740/d.cnki.gqhdx.2023.000030. -

-
链接本文:
https://zlxb.zafu.edu.cn/article/doi/10.11833/j.issn.2095-0756.20260149
 点击查看大图
计量
- 文章访问数: 10
- HTML全文浏览量: 5
- PDF下载量: 0
- 被引次数: 0
