



-
毛竹Phyllostachys edulis隶属于禾本科Poaceae刚竹属Phyllostachys,为大型常绿散生竹,是中国和东南亚地区具有重大经济价值和生态价值的竹类作物[1−2]。然而,毛竹开花周期长达60~80 a,且群体遗传多样性低[3],使得传统的人工杂交和选育等技术在毛竹育种中难以实施。因此,遗传转化技术成为毛竹品种改良的重要途径,而建立高效、稳定的离体再生体系,是实现遗传转化的首要前提。
目前,已有以毛竹未成熟胚为外植体建立组培体系的报道[4],但该体系仍面临诸多瓶颈,如外植体灭菌困难,胚性愈伤组织诱导率低[5],增殖缓慢(30 d仅增长3~4 mm),继代培养中褐化严重,分化频率低,且存在较强的基因型依赖性[6]。因此,毛竹组织培养技术亟待进一步优化。在再生体系优化研究中,2种添加物被证实具有关键作用。①灭草烟作为一种乙酰乳酸合成酶(ALS)抑制剂,可通过剂量依赖方式调控支链氨基酸的合成,从而对愈伤组织的增殖能力产生重要影响[7];②单磷酸腺苷(AMP)则主要参与能量代谢调节,并激活细胞再生全能性,在提升再生体系的效率与稳定性方面发挥积极作用[8]。
鉴于此,本研究以毛竹未成熟胚为外植体,探究消毒组合及灭草烟和单磷酸腺苷对毛竹愈伤组织诱导、增殖及分化阶段的影响,旨在构建高效、完整的毛竹组织培养再生体系,为毛竹遗传转化技术的建立提供科学依据。
-
供试毛竹未成熟种子于2024年7月采自广西壮族自治区天然开花毛竹林(25°12′36"N,110°46′12"E),采集后置于4 ℃冰箱中保存。并选取种皮完整、呈黄绿色的种子用于后续研究。
-
本研究培养基包括:①愈伤组织诱导培养基(CIM)。依照HUANG等[5]的愈伤组织诱导培养基配方,将激素质量浓度调整如下:2.0 mg·L−12,4-二氯苯氧乙酸(2,4-D)+1.0 mg·L−1萘乙酸(NAA)+1.0 mg·L−16-苄基腺嘌呤(6-BA)+0.5 mg·L−1激动素(KT),30 d后观察愈伤组织生长过程并统计愈伤组织诱导率;②毛竹愈伤组织继代增殖培养基(CSM)。依照HUANG等[5]的愈伤组织继代增殖培养基[5],灭草烟设置为0、0.2、0.5、2.0,8.0 mg·L−1 5个梯度;③芽诱导培养基(SIM)。依照HUANG等[5]的芽诱导培养基[5],单磷酸腺苷设置为0、1、2、3、4 mmol·L−1 5个梯度;④生根培养基(RIM)。1/2 MS + 30 g·L−1蔗糖 + 2.5 g·L−1结冷胶(Gelrite)+2 mg·L−1吲哚丁酸(IBA)。各类培养基pH调至5.8,121 ℃高压蒸汽灭菌20 min。
-
毛竹未成熟胚愈伤组织诱导及继代在(25±2) ℃下暗培养,分化及生根培养在(25±1) ℃条件下进行,光照强度为43.8 μmol·m−2·s−1,光周期为16 h光照/8 h黑暗。
-
在毛竹组织培养体系构建过程中,种子的高污染率是限制该技术发展的核心瓶颈,而有效降低初始污染率,是实现毛竹愈伤组织高效诱导的首要关键步骤。毛竹未成熟胚体积小、组织幼嫩,过度消毒易导致胚损伤甚至死亡,消毒不足则污染率高。因此,筛选对未成熟胚伤害性小且灭菌效果更优的消毒方法,是本研究的重要内容之一。
毛竹未成熟种子去除种皮,保留种子根部连接部分避免污染,选取饱满的灰绿色种子用表面活性剂(Tween-80)清洗10 min,流动水冲洗30 min备用。本研究以体积分数为75%的乙醇处理30、45、60 s,并配合体积分数为20%、25%的次氯酸钠(有效氯体积分数约5%的原液稀释),共设6种消毒组合(表1)。具体操作流程:乙醇处理后,种子转入含体积分数0.1%Tween-20的次氯酸钠溶液中,于0.1 MPa真空条件下灭菌25 min。真空处理可使消毒液更好地渗透至种子表面及缝隙,增强对内外源菌的灭菌效果。灭菌后用无菌水冲洗3~5次,在无菌滤纸上用手术刀划破种皮基部取出胚(直径约1.3 mm),并将其接种于愈伤诱导培养基,上胚轴朝上。每个处理50颗未成熟胚,3次重复。后置于25 ℃恒温培养箱中进行暗培养。接种2周后统计未成熟胚污染率,30 d后统计愈伤组织诱导率。
表 1 消毒组合实验方案
Table 1. Combination of disinfection experiments
消毒组合 乙醇处理时间/s 不同体积分数的次氯酸钠处理 1 30 20%,抽真空25 min 2 30 25%,抽真空25 min 3 45 20%,抽真空25 min 4 45 25%,抽真空25 min 5 60 20%,抽真空25 min 6 60 25%,抽真空25 min -
为了改善愈伤组织的增殖状况,本研究在愈伤组织继代增殖培养基上添加0、0.2、0.5、2.0和8.0 mg·L−1灭草烟。放置到暗培养箱中培养30 d观察其增殖效果,记录统计其状态并拍照,之后每次继代间隔时间为25 d。每个处理50个愈伤块,3次重复。
-
本研究在HUANG等[5]的芽诱导培养基上,分别添加0、1、2、3和4 mmol·L−1单磷酸腺苷,得到5种分化培养基。本研究选择2种不同基因型(#13-2和#6-4)的毛竹愈伤组织作为实验材料进行不定芽分化诱导,基因型#13-2为胚性愈伤组织,质地较疏松,易于诱导再生苗;基因型#6-4质地相对致密,诱导再生能力相对较差。将愈伤组织接种到分化培养基上,放置在16 h光照/8 h黑暗、(25±1) ℃条件下进行芽分化诱导。隔1个月更换新鲜分化培养基并剔除褐化愈伤组织,处理3个月后统计愈伤组织生长情况及芽诱导率。每个处理50个愈伤块,3次重复。
-
当不定芽生长至2~3 cm时转移至生根培养基,在16 h光照/8 h黑暗、(25±1) ℃条件下生根培养,光照强度为43.8 μmol·m−2·s−1。
-
将根长4~5 cm的再生苗在温度为(25±1)℃,湿度为75%的培养箱中开盖驯化1周,于25 ℃水中冲洗掉根部培养基,移植到使用木村营养液浇透的市售混合基质土壤中。驯化时由于叶片脱水严重,会导致萎蔫,可以适当喷水或者剪去一部分叶片,防止再生苗无法适应环境的变化而死去。
-
各指标计算公式为:未污染率=(未污染数/总接种数)×100%;芽诱导率=(分化出芽的愈伤组织数量/诱导分化的愈伤组织总数)×100%;愈伤组织诱导率=诱导出愈伤组织的外植体数/接种外植体×100%;愈伤组织增殖率=(最终时间点愈伤面积−起始时间点愈伤面积)/起始时间点愈伤面积×100%;愈伤组织分化率=已分化的愈伤组织块数/接种组织块数×100%;成苗率=种胚成苗数/接种种胚数×100%,即长根和长芽;胚性愈伤组织诱导率=诱导致密颗粒状愈伤组织的外植体数/接种外植体数×100%,统计时包含部分基部愈伤,上胚轴部分长芽情况;愈伤化率=有愈伤化趋势的种胚数/接种种胚数×100%。
-
本研究愈伤组织面积通过Image J软件统计。数据均通过Excel 2019和SPSS软件进行统计分析,采用单因素方差分析(one-way ANOVA)检验组间差异,并通过Duncan法进行多重比较,显著性水平为0.05。
-
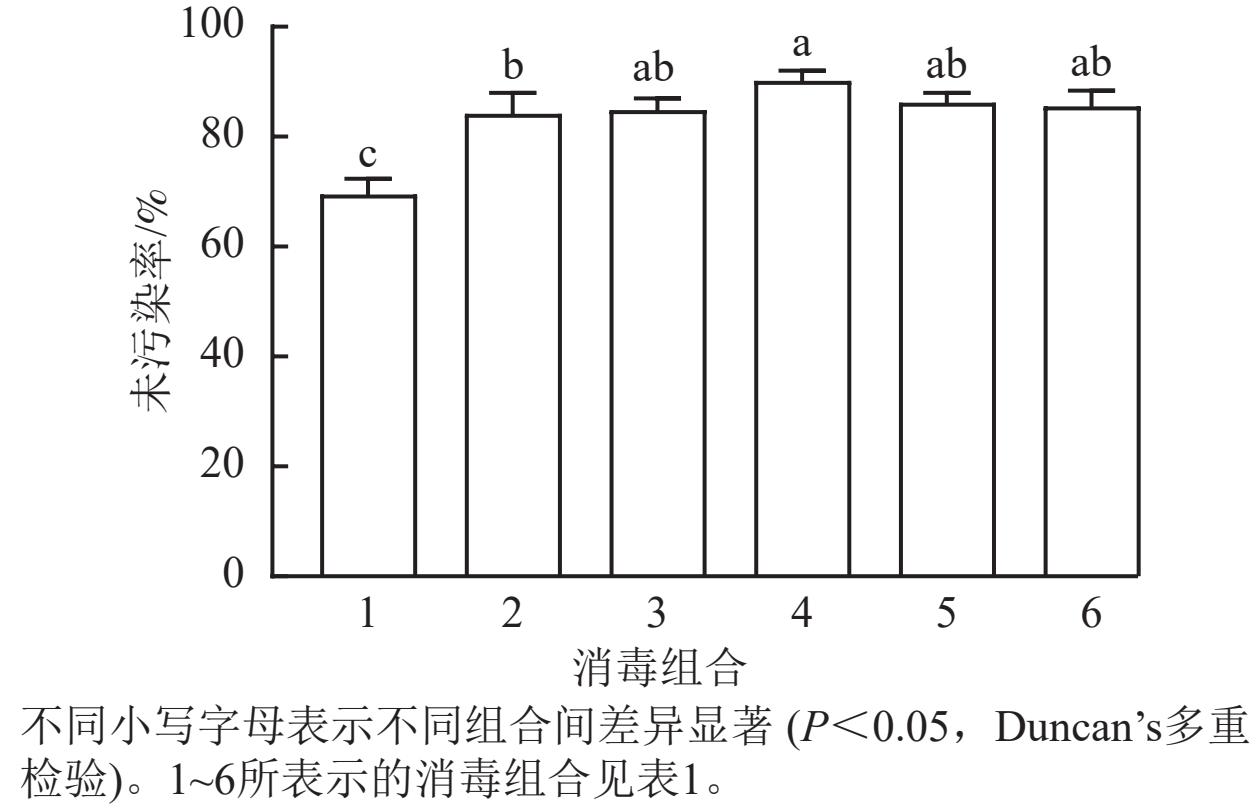
从图1可见:6种消毒组合未成熟胚污染率存在差异。其中,组合1的未污染率最低,仅为69%;而组合4的未污染率最高,达90%;其余消毒组合的未污染率较接近。综上,采用乙醇消毒45 s,并结合体积分数为25%的次氯酸钠真空灭菌25 min,能明显降低未成熟胚的污染率。
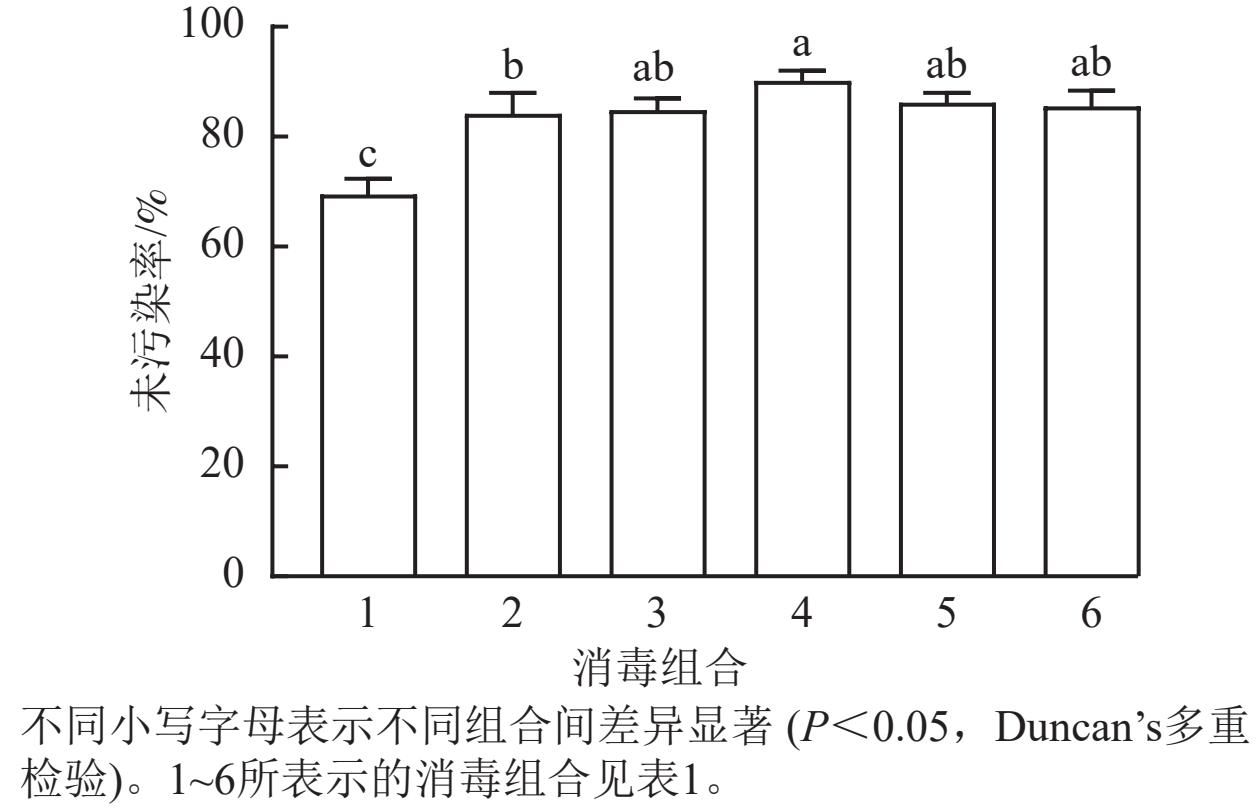
图 1 不同消毒方法对毛竹胚未污染率的影响
Figure 1. Effect of different sterilization methods on the non-contamination rate of P. edulis embryos
-
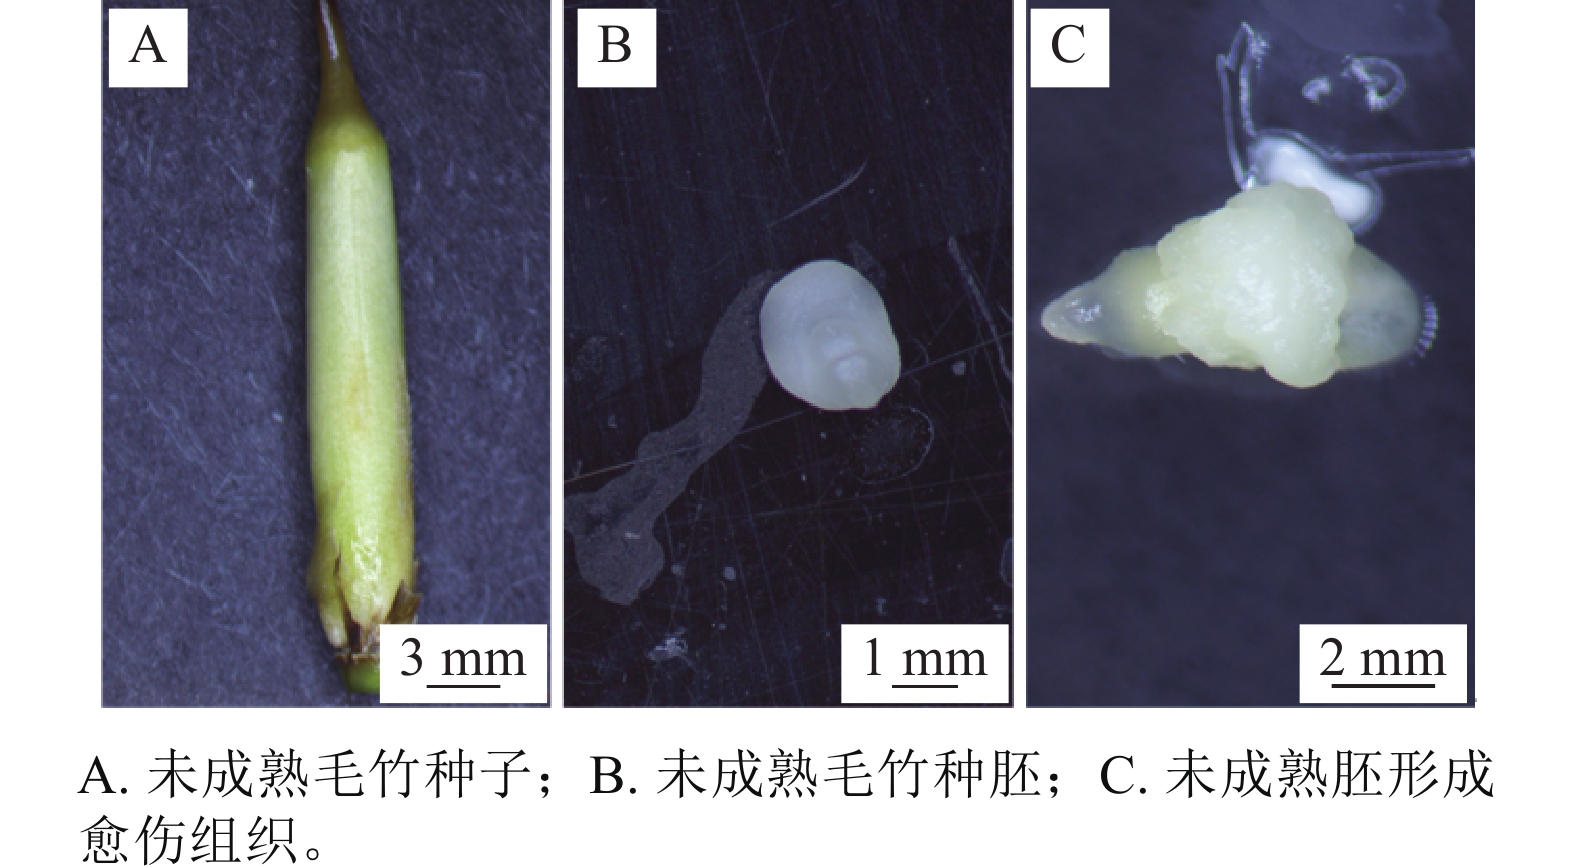
在超净工作台内,使用手术刀从种子(图2A)中剥离未成熟胚(图2B),接种于愈伤组织诱导培养基上,暗培养诱导愈伤组织形成。
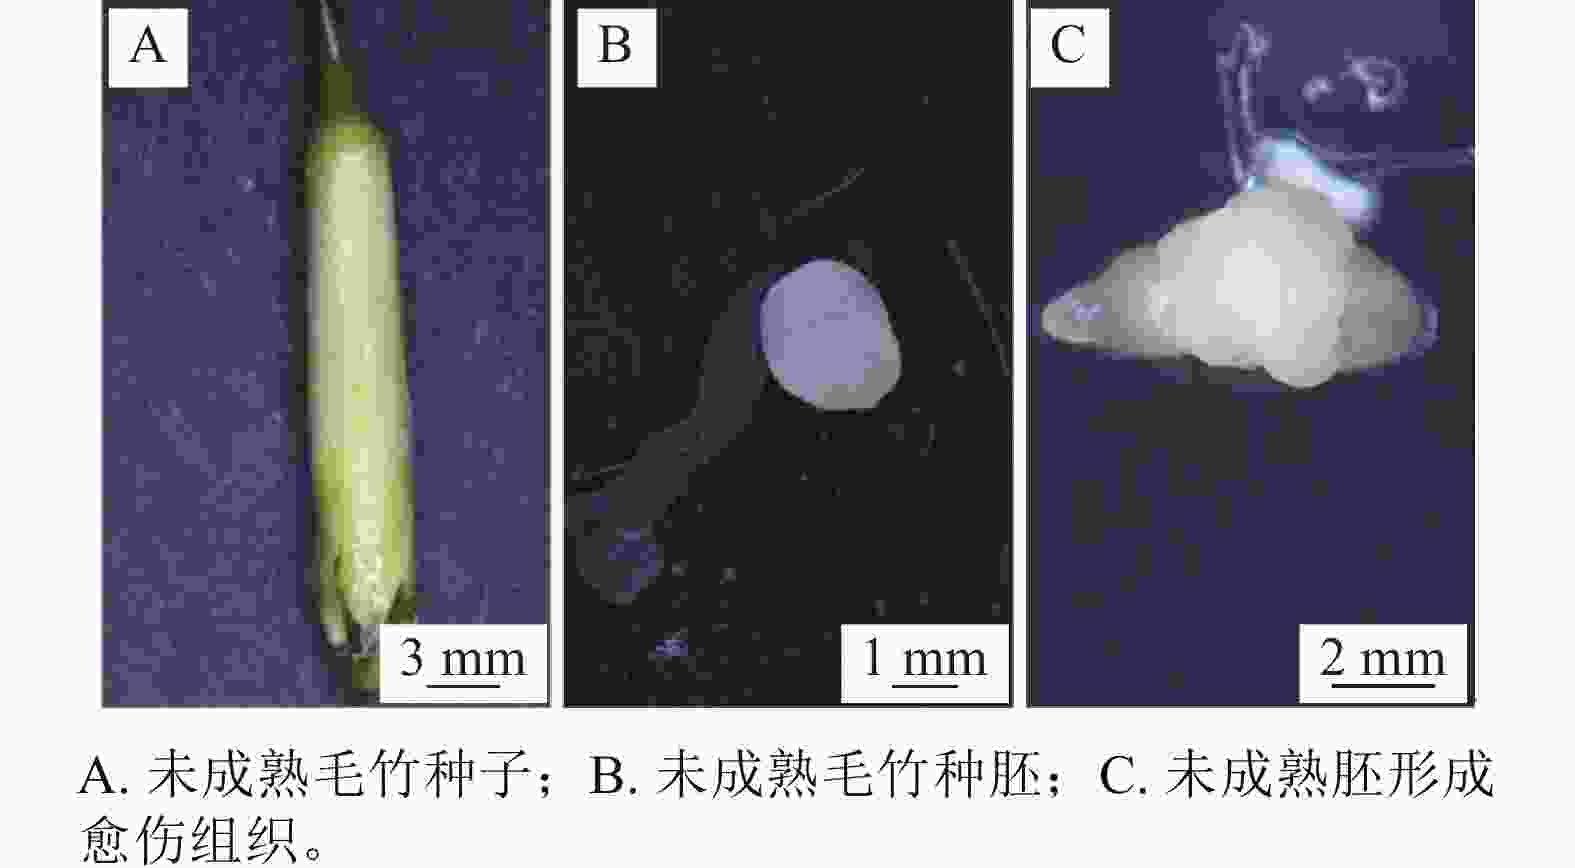
图 2 毛竹未成熟胚的愈伤组织诱导
Figure 2. Callus induction from immature embryo of P. edulis
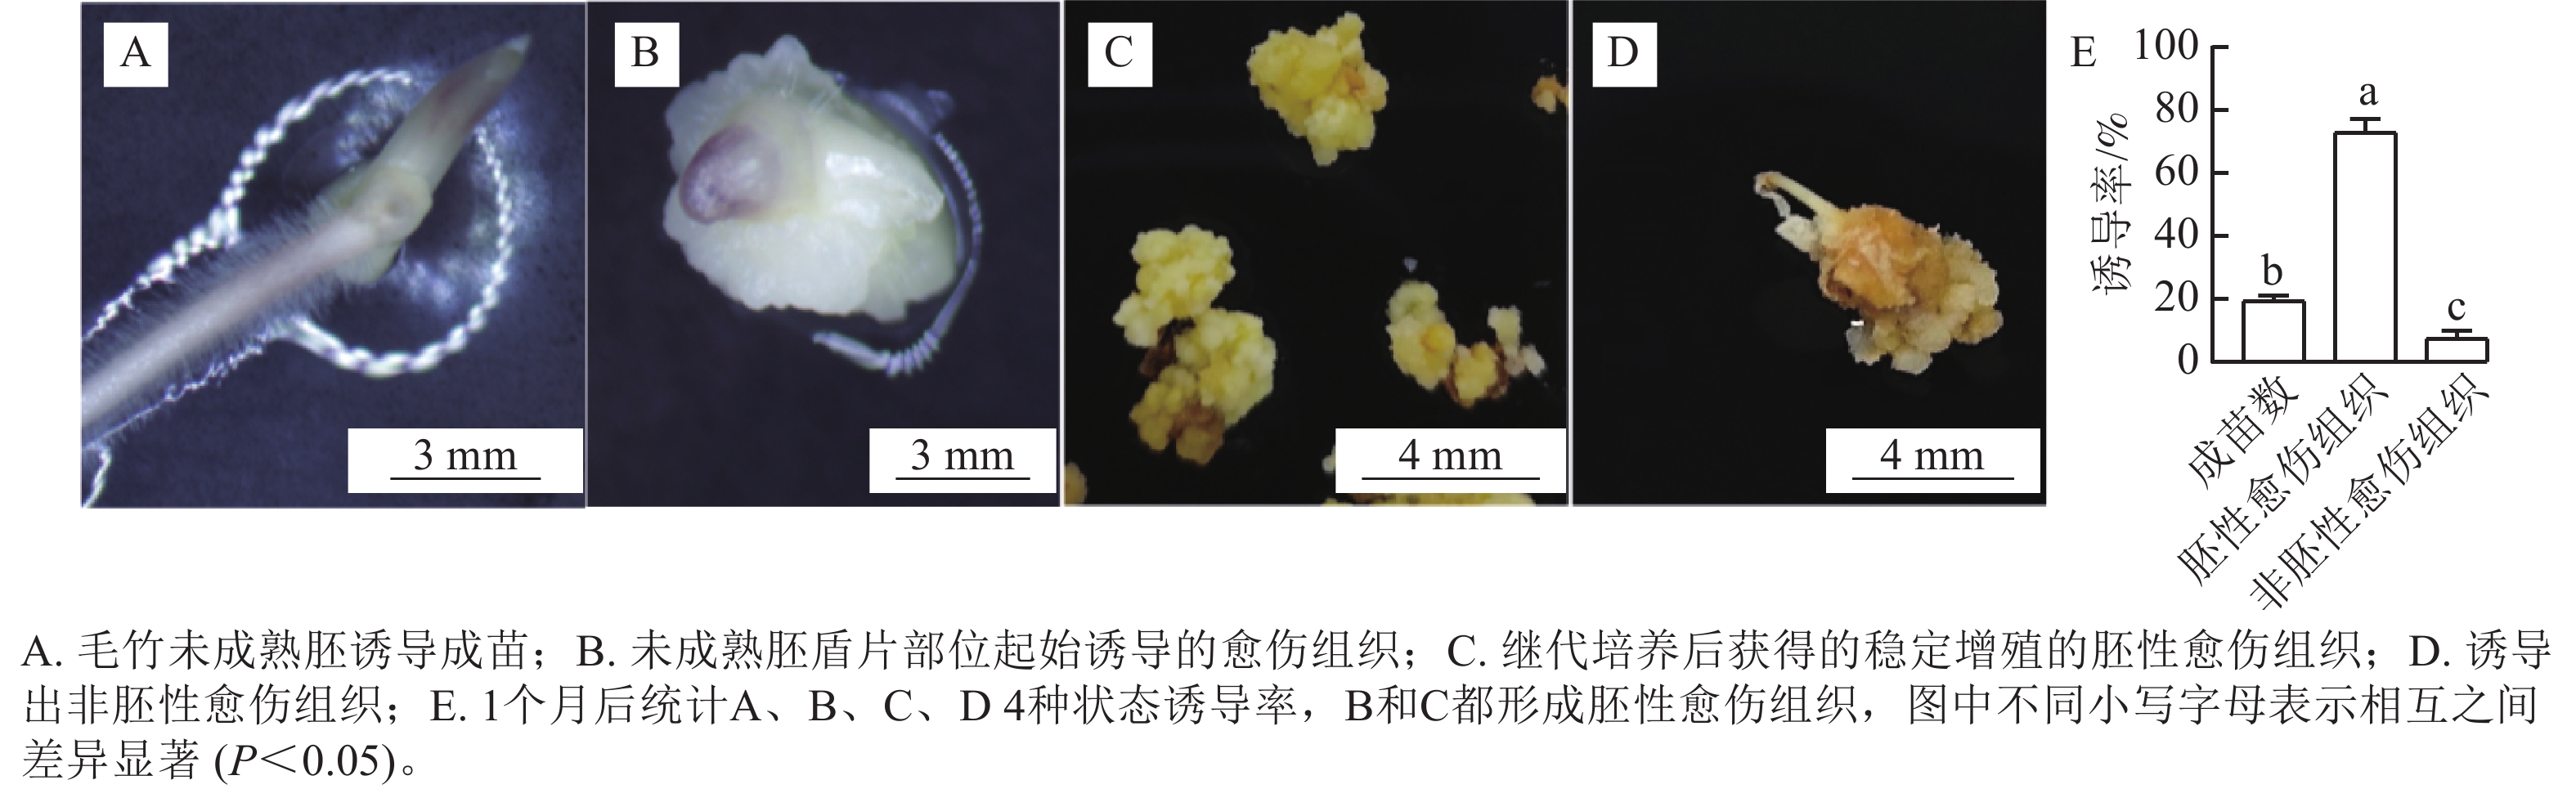
接种培养1周后,部分毛竹未成熟胚表面开始分化出淡黄白色的胚性愈伤组织(图2C),并随着培养时间延长逐步增殖膨大。在整个愈伤组织诱导周期内,未成熟胚最终呈现3种状态:直接萌发成苗(图3A)、诱导形成胚性愈伤组织(图3B和图3C)、诱导形成非胚性愈伤组织(图3D)。诱导1个月后,统计诱导产生愈伤组织的毛竹未成熟胚数量以及诱导产生淡黄白色愈伤组织(胚性愈伤组织)的毛竹未成熟胚数量,计算诱导率。图3E显示:成苗数占比为19.6%,胚性愈伤组织占比为73.0%,非胚性愈伤组织占比为7.4%。
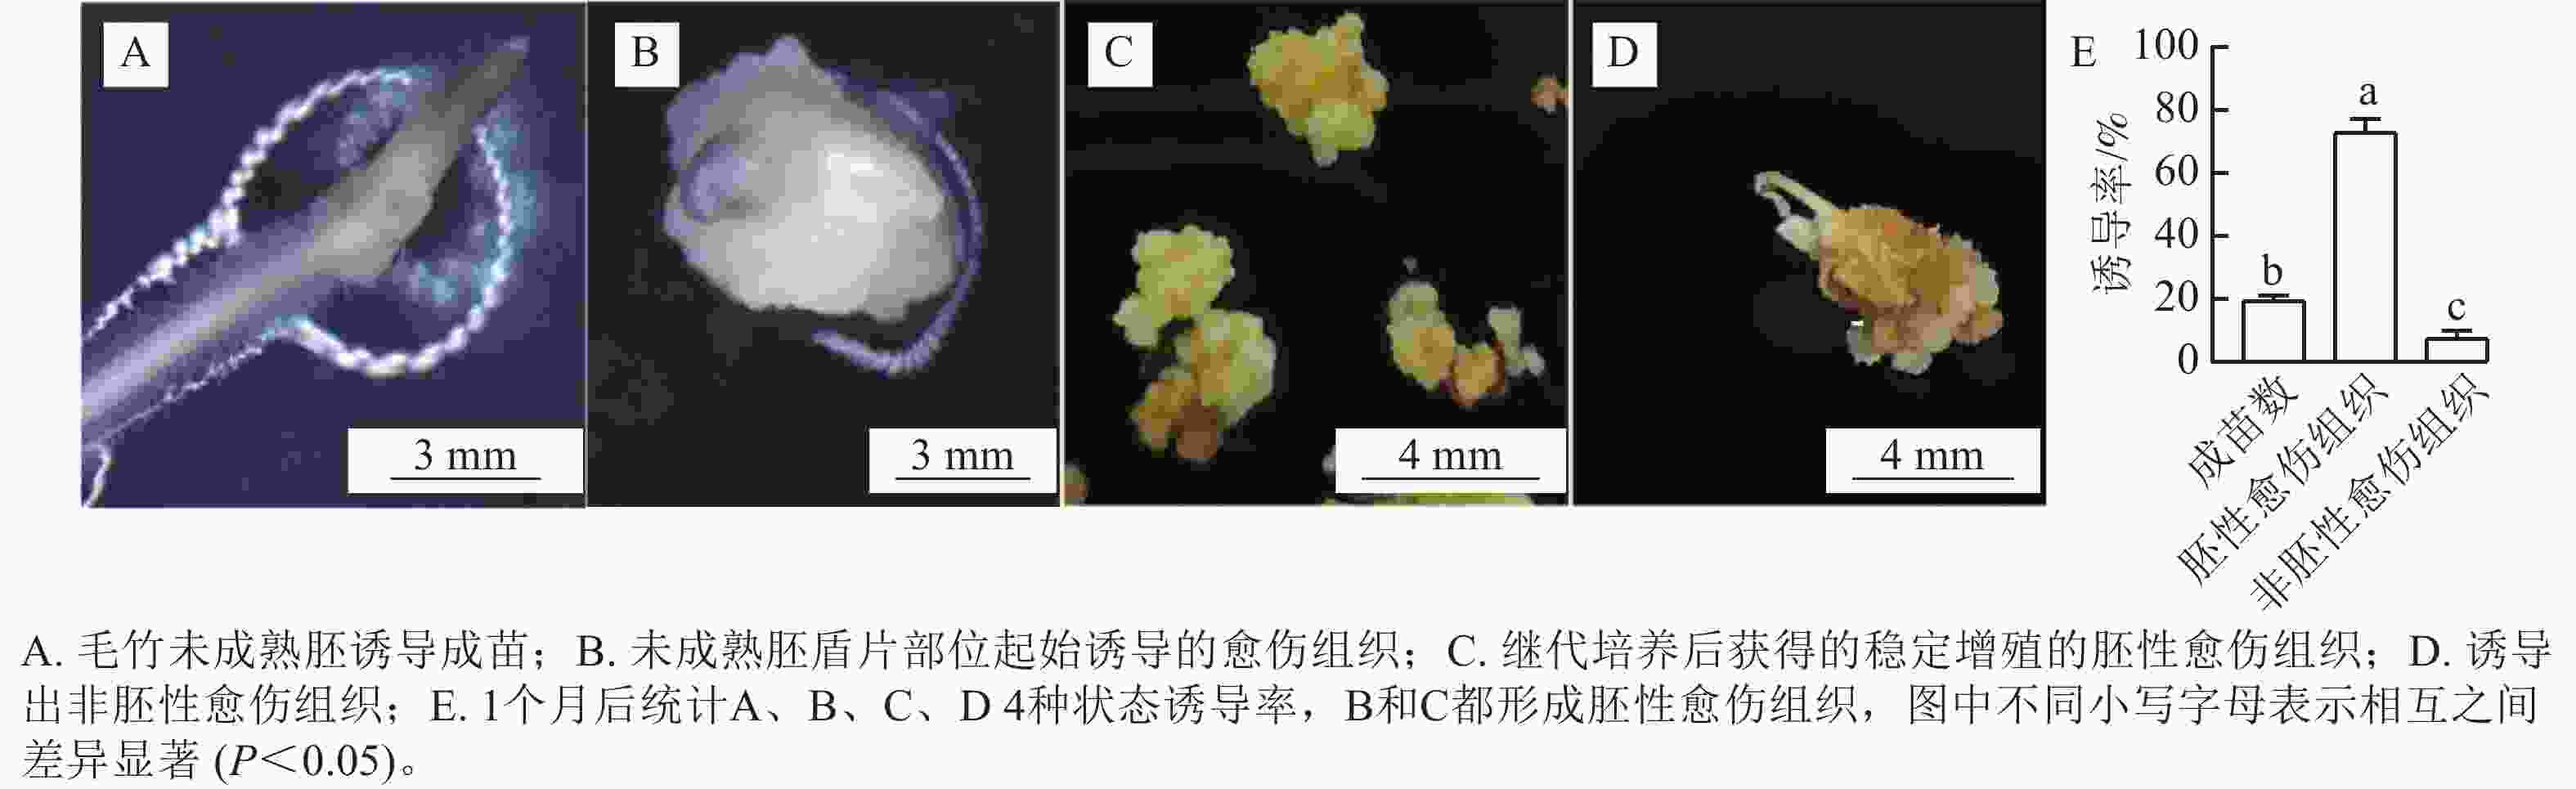
图 3 以毛竹未成熟胚为外植体的愈伤组织诱导
Figure 3. Induction of callus using immature embryos of P. edulis as explants
-
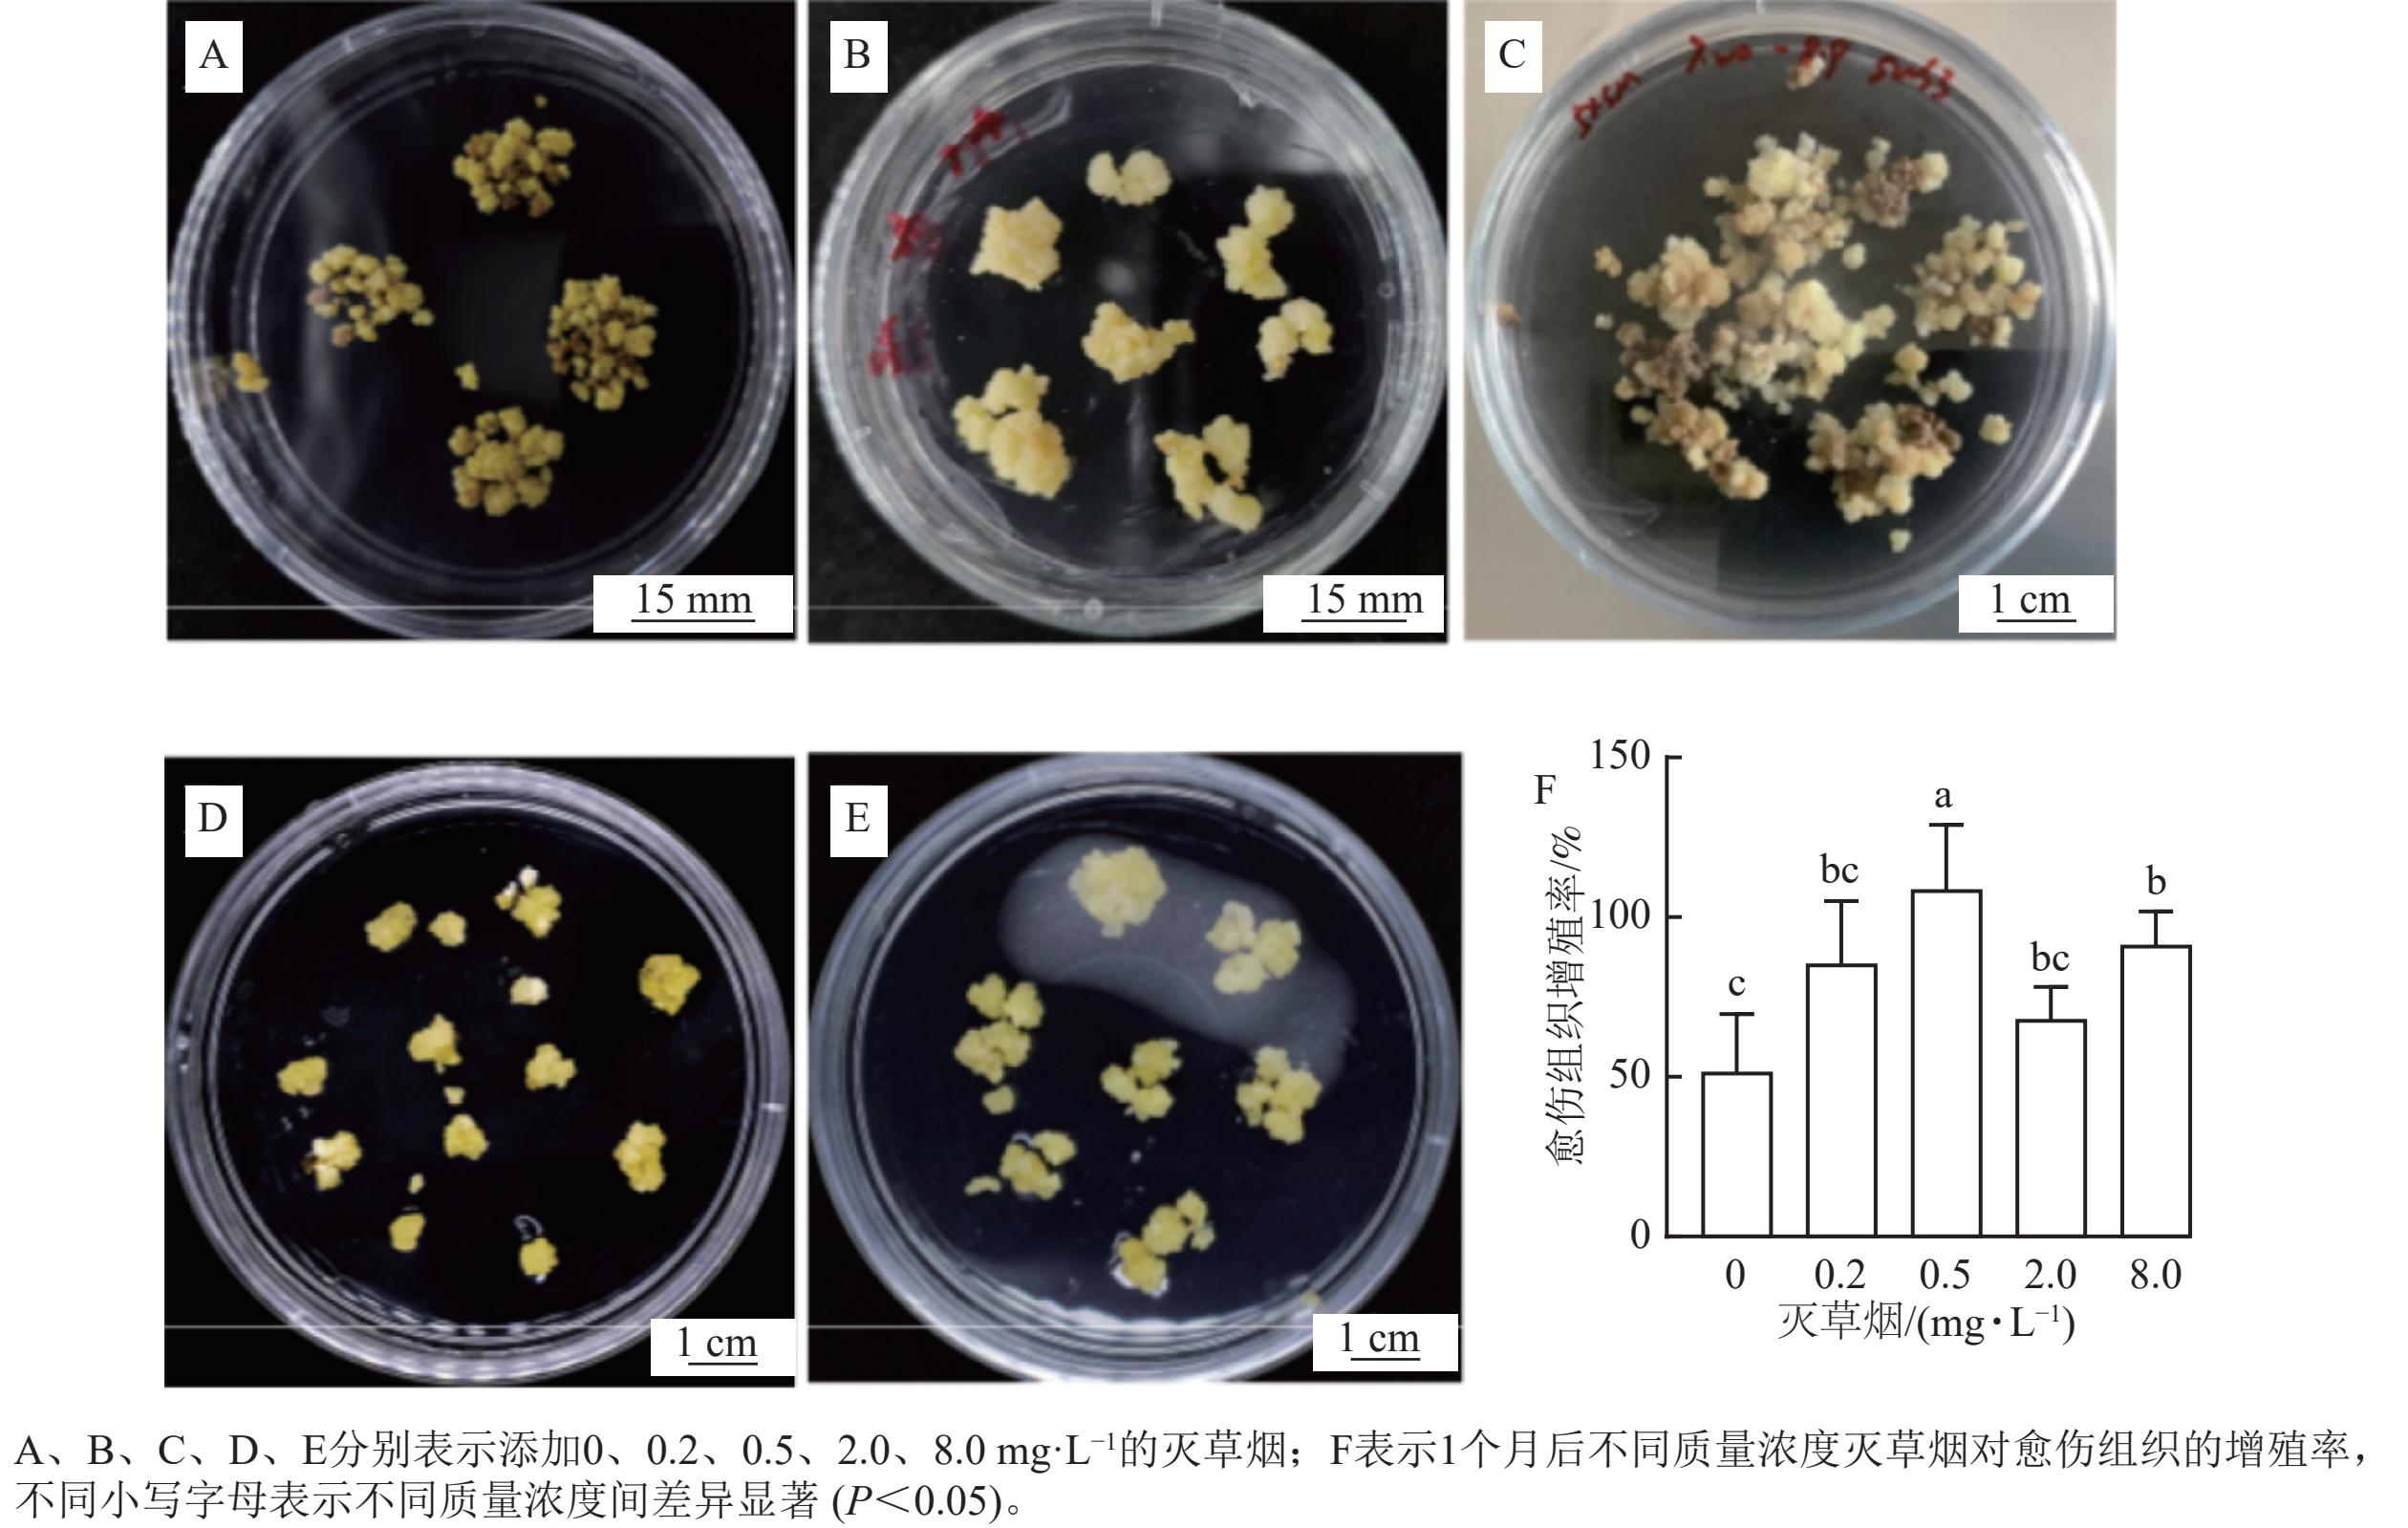
不同质量浓度的灭草烟处理愈伤组织,培养1个月后,与未添加灭草烟的对照(图4A)相比,各处理的愈伤组织生长状态均有明显改善。处理后的愈伤组织质地致密紧实,表面呈不规则凸起,增殖速率明显提升,且褐化程度明显降低(图4B~E)。以愈伤组织面积变化计算增殖率发现:0.5 mg·L−1灭草烟处理的愈伤组织,其增殖率显著高于其他处理(图4F,P<0.05)。
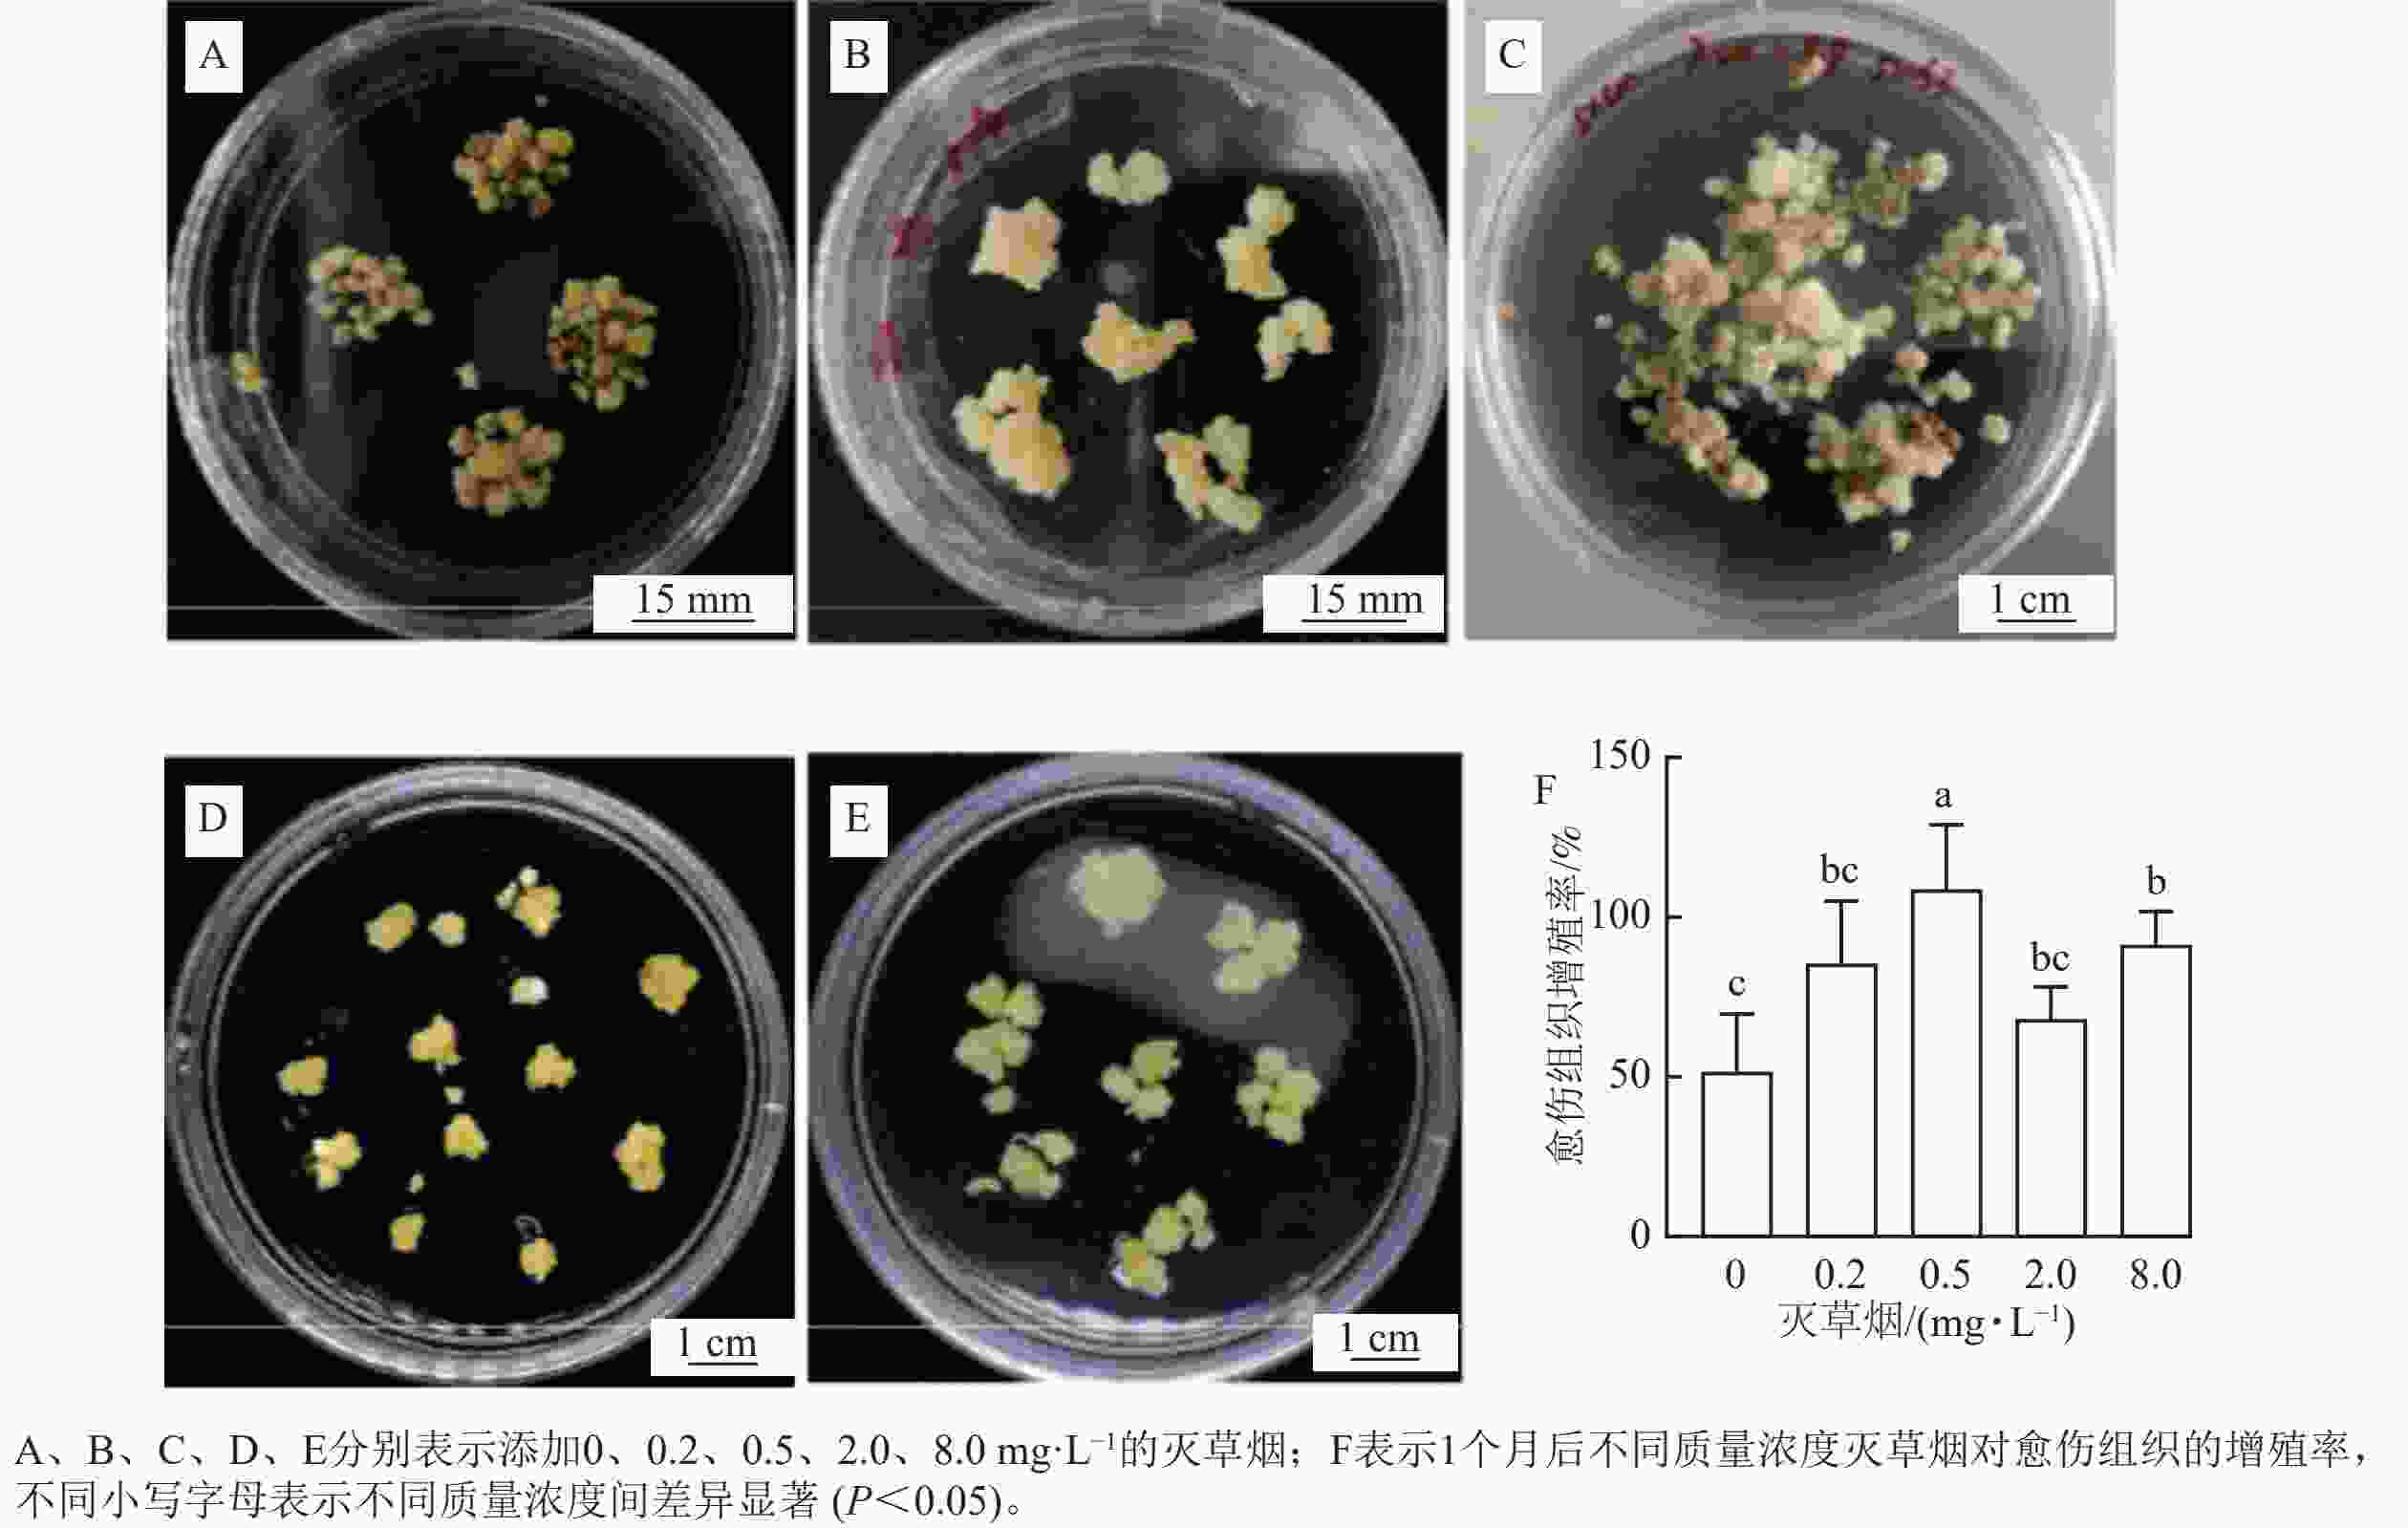
图 4 不同质量浓度灭草烟处理1个月对毛竹愈伤组织增殖的影响
Figure 4. Effect of different concentrations of imazapyr with one month treatment on the proliferation of P. edulis callus
-
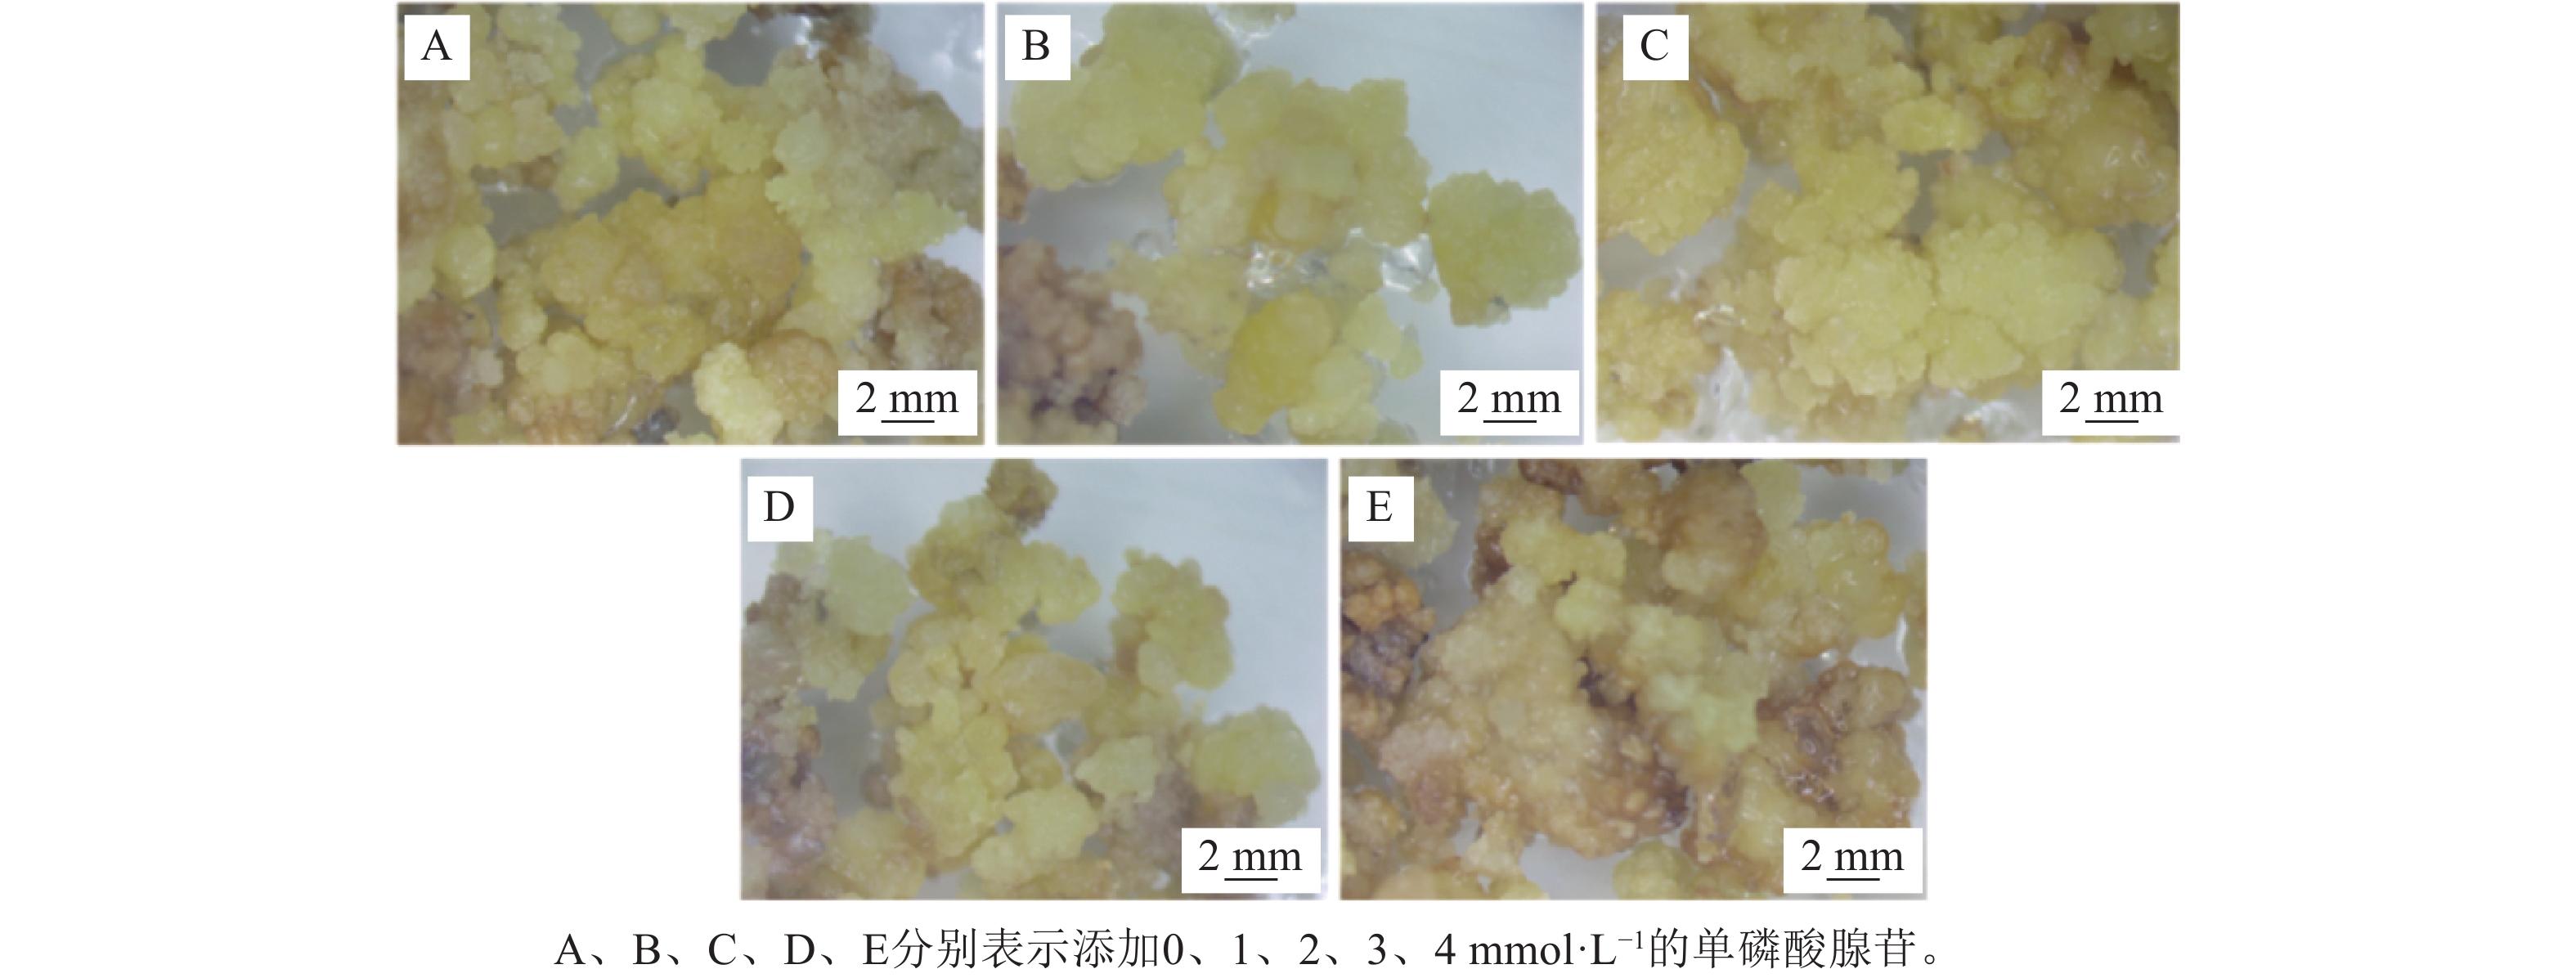
取生长状态一致的黄色致密型愈伤组织,接种至含不同浓度单磷酸腺苷的芽诱导分化培养基上。培养20 d后,与不添加单磷酸腺苷(图5A)相比,添加1 mmol·L−1单磷酸腺苷(图5B)的愈伤组织生长状态最好,新增殖愈伤组织未出现褐化或褐化程度轻,添加2 mmol·L−1单磷酸腺苷(图5C)会出现轻微水化现象,添加3 mmol·L−1单磷酸腺苷(图5D)开始出现褐化现象,但是褐化程度低于添加4 mmol·L−1单磷酸腺苷(图5E),结合以上结果,后续的毛竹愈伤组织分化诱导采用添加1 mmol·L−1单磷酸腺苷的芽诱导分化培养基进行实验。
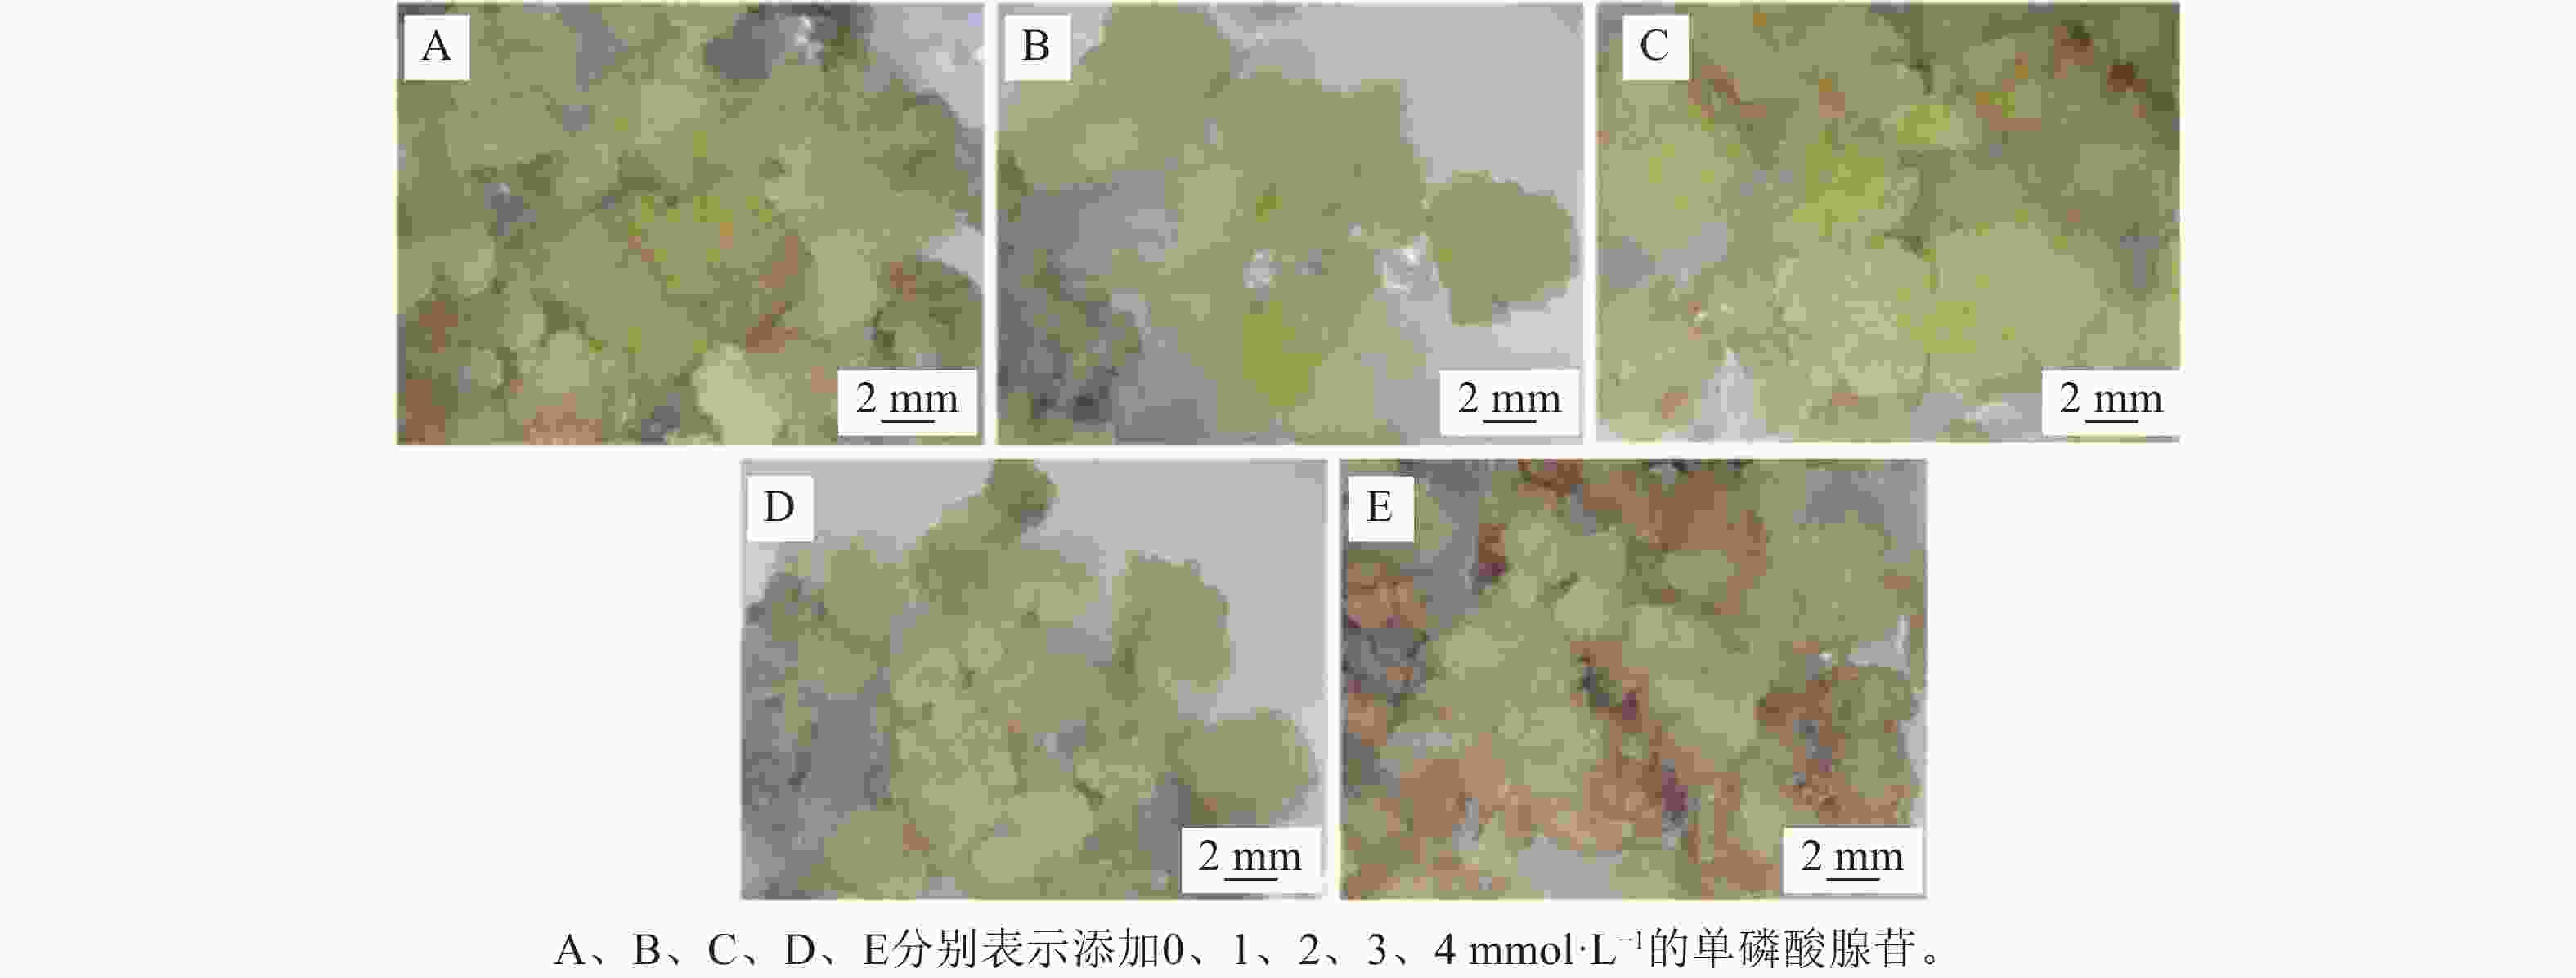
图 5 单磷酸腺苷处理20 d时毛竹愈伤组织不定芽分化表型
Figure 5. Adventitious bud differentiation phenotype of P. edulis callus treated with adenosine monophosphate for 20 days
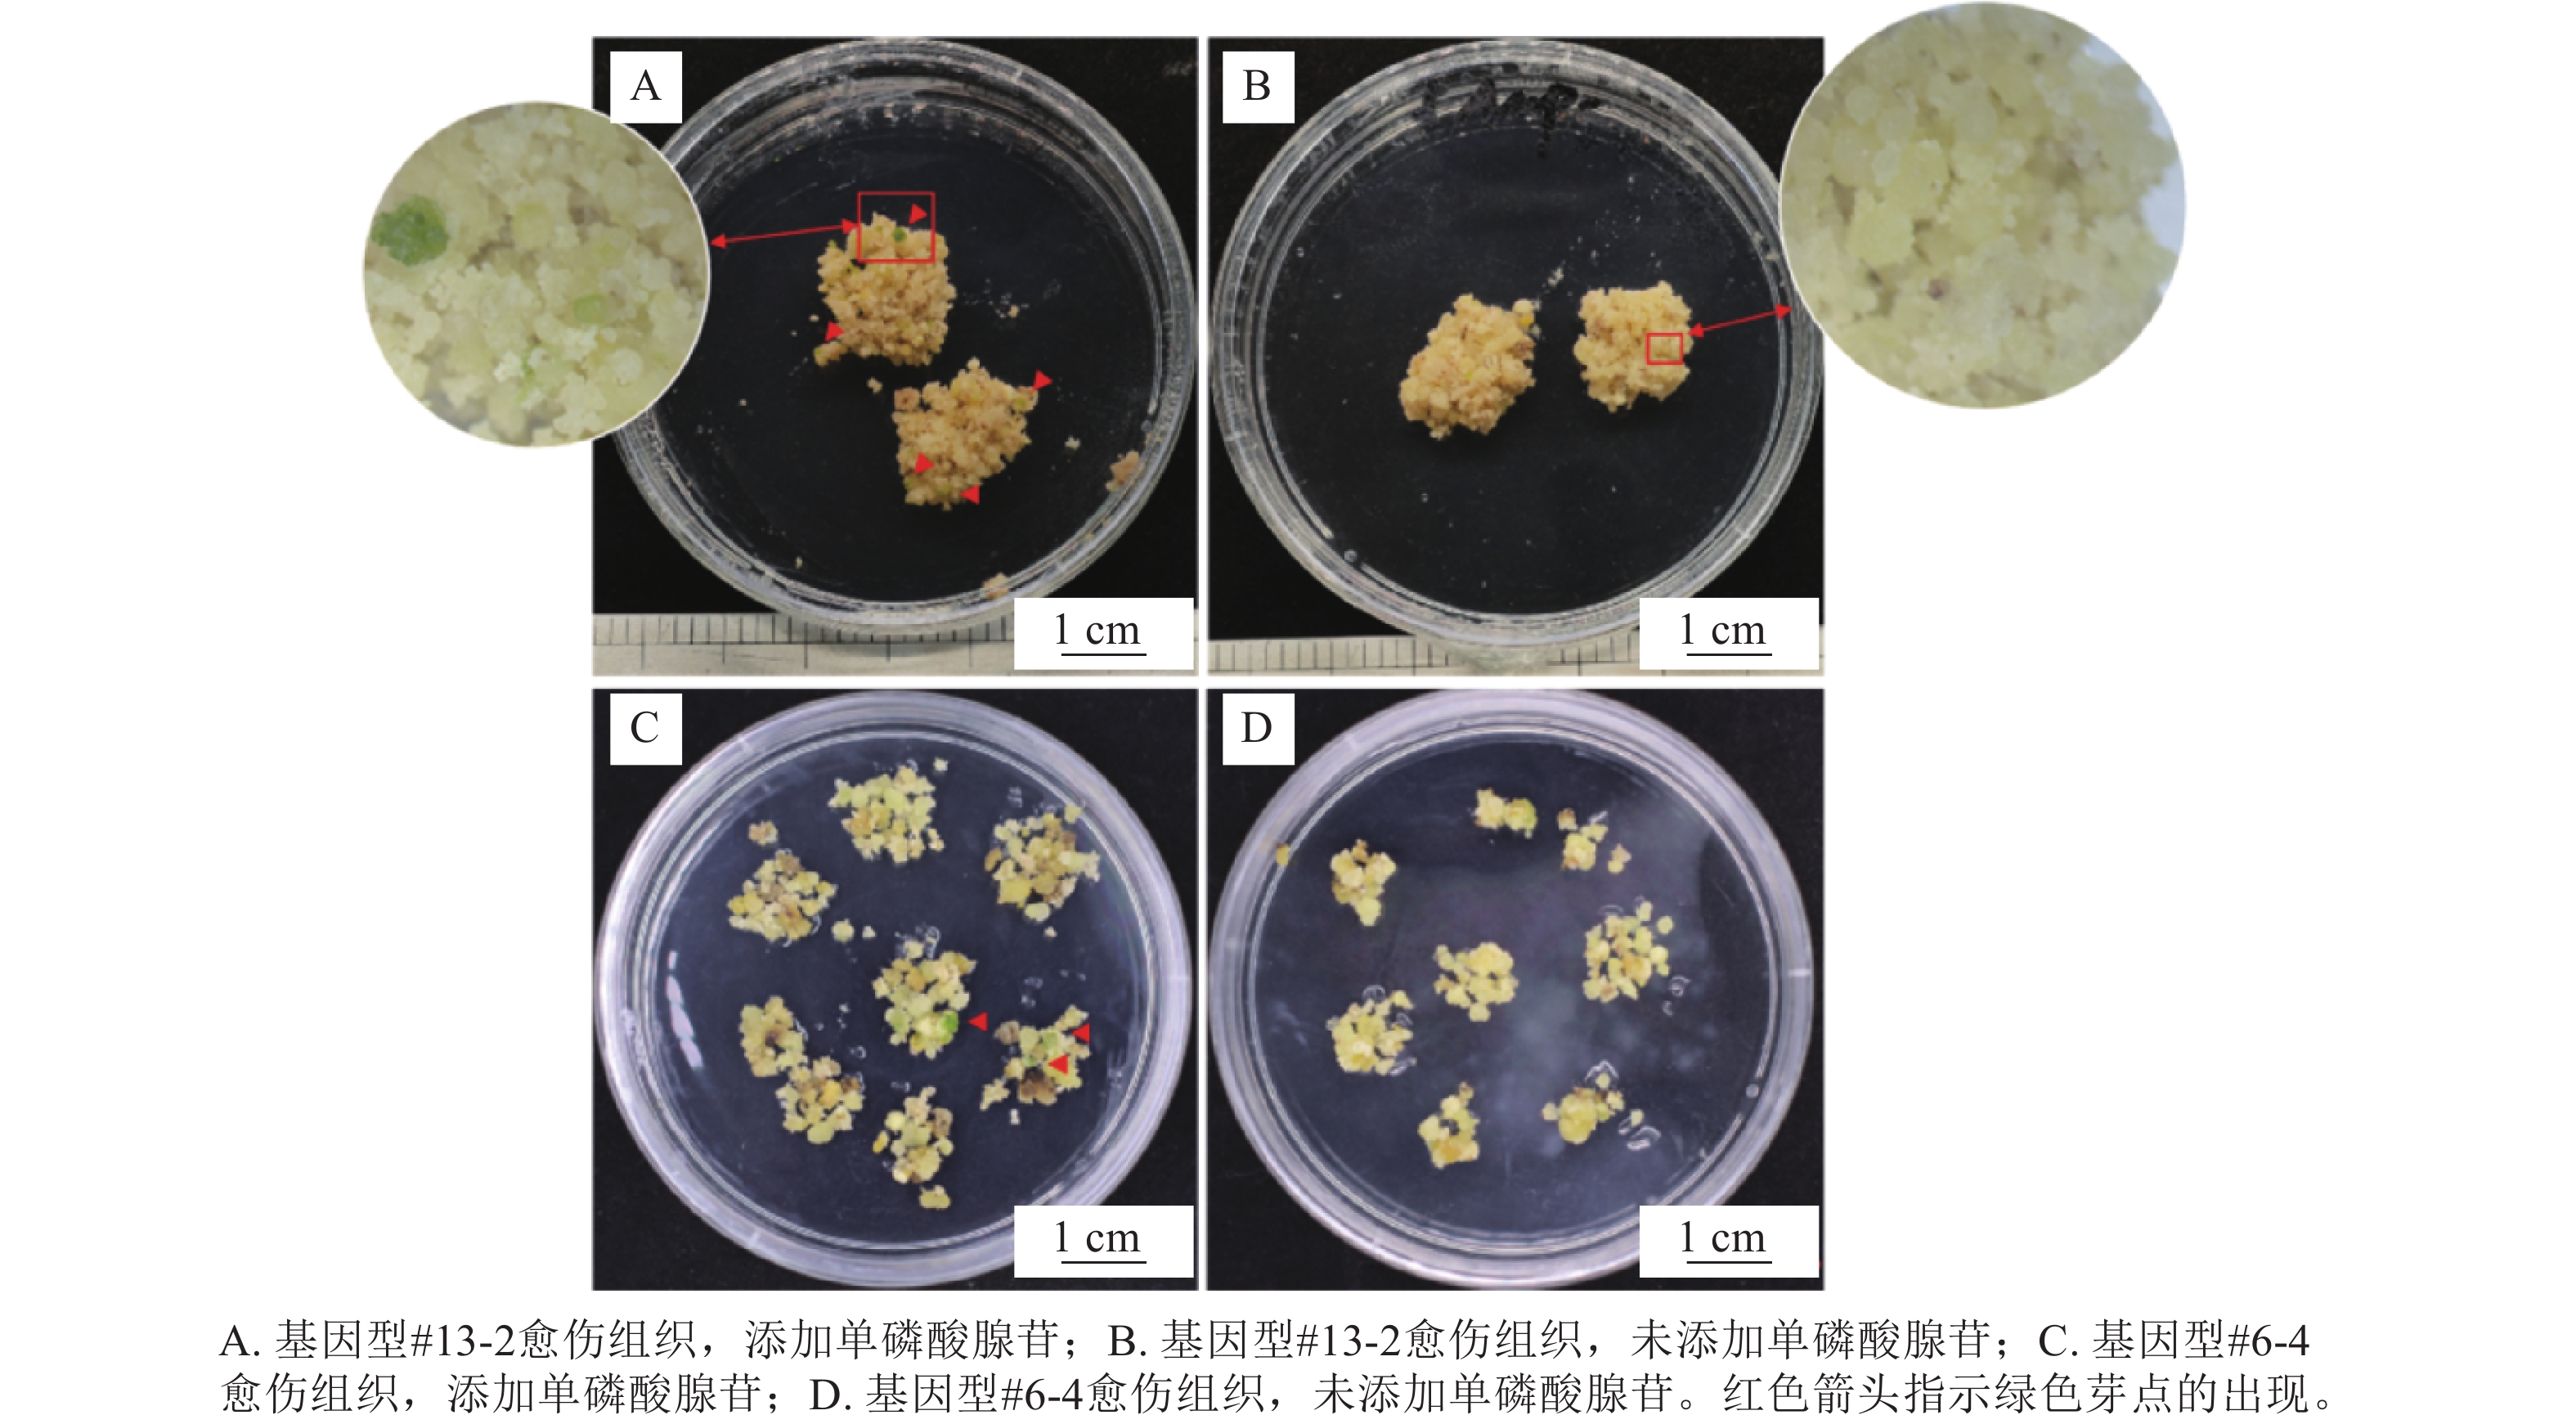
在分化培养基上培养15 d后,添加1 mmol·L−1单磷酸腺苷的处理组中,毛竹愈伤组织(基因型#13-2)开始出现绿色芽点(图6A),而未经单磷酸腺苷处理的对照组则未见此类结构形成(图6B)。基因型#6-4表现出与基因型#13-2相似的分化特征(图6C)。
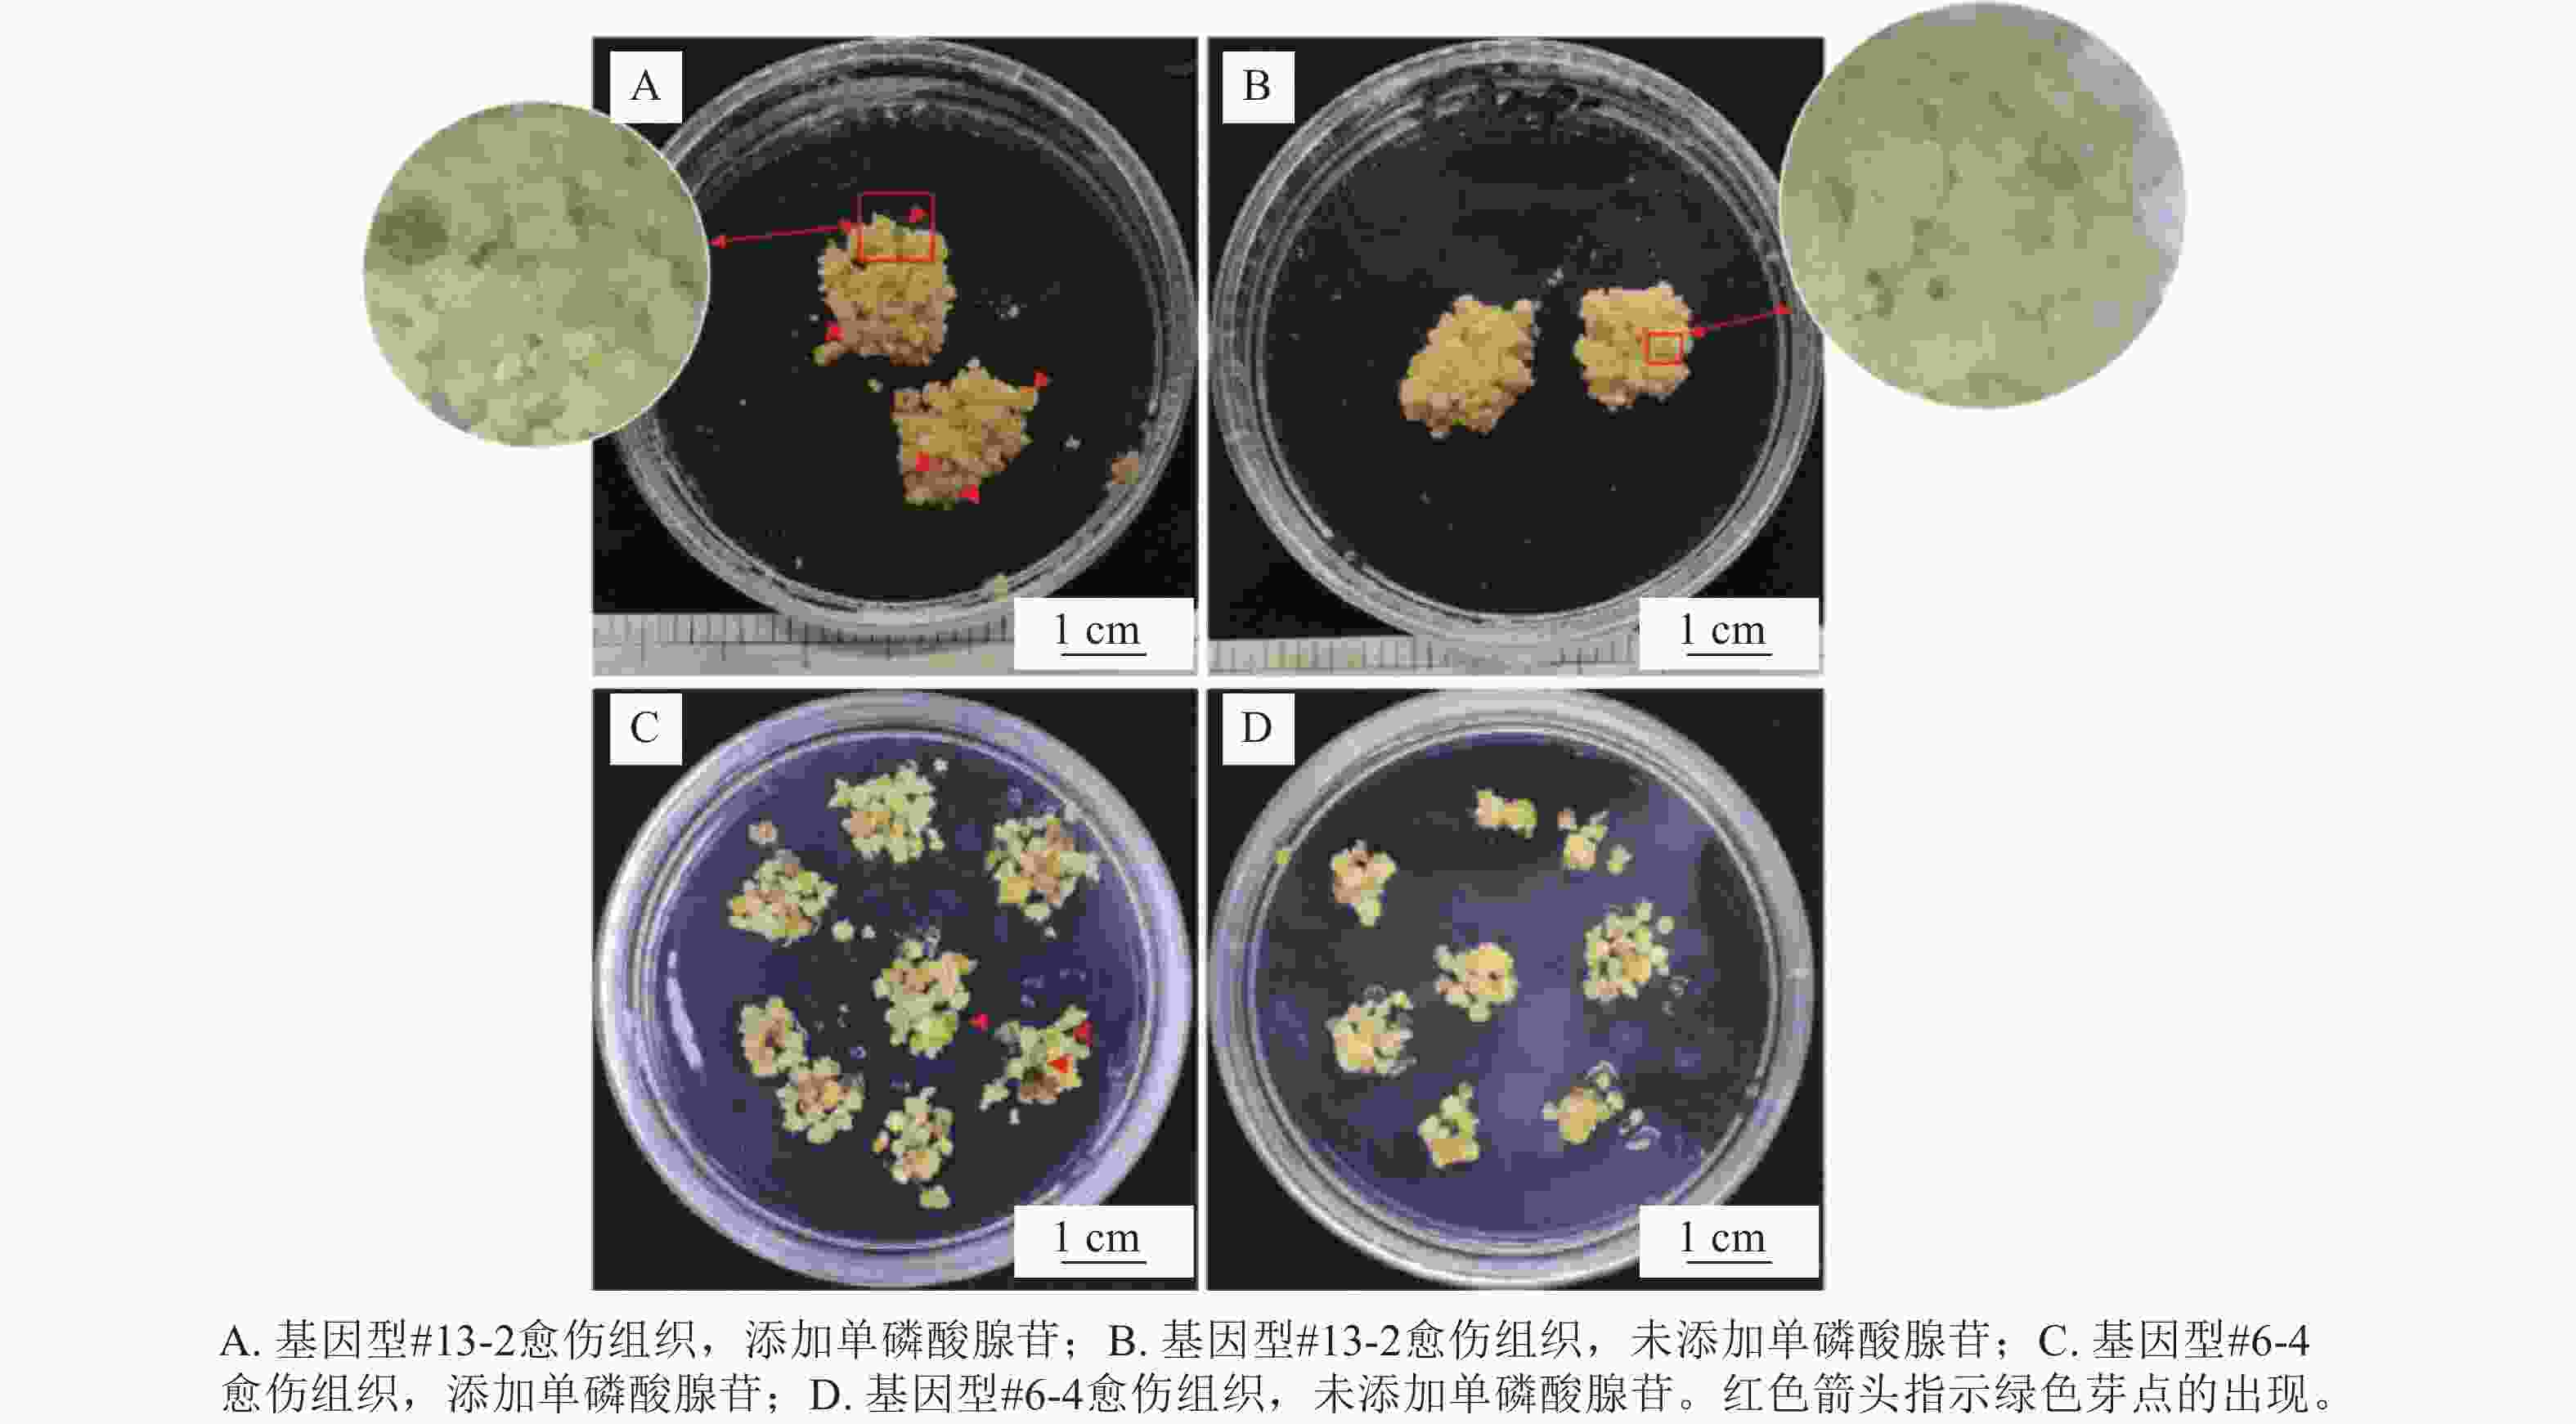
图 6 1 mmol·L−1单磷酸腺苷处理15 d对2种基因型毛竹愈伤组织不定芽的诱导效果
Figure 6. Effect of 1 mmol·L−1 adenosine monophosphate treatment for 15 days on the induction of adventitious shoots in callus tissue of 2 genotypes of P. edulis
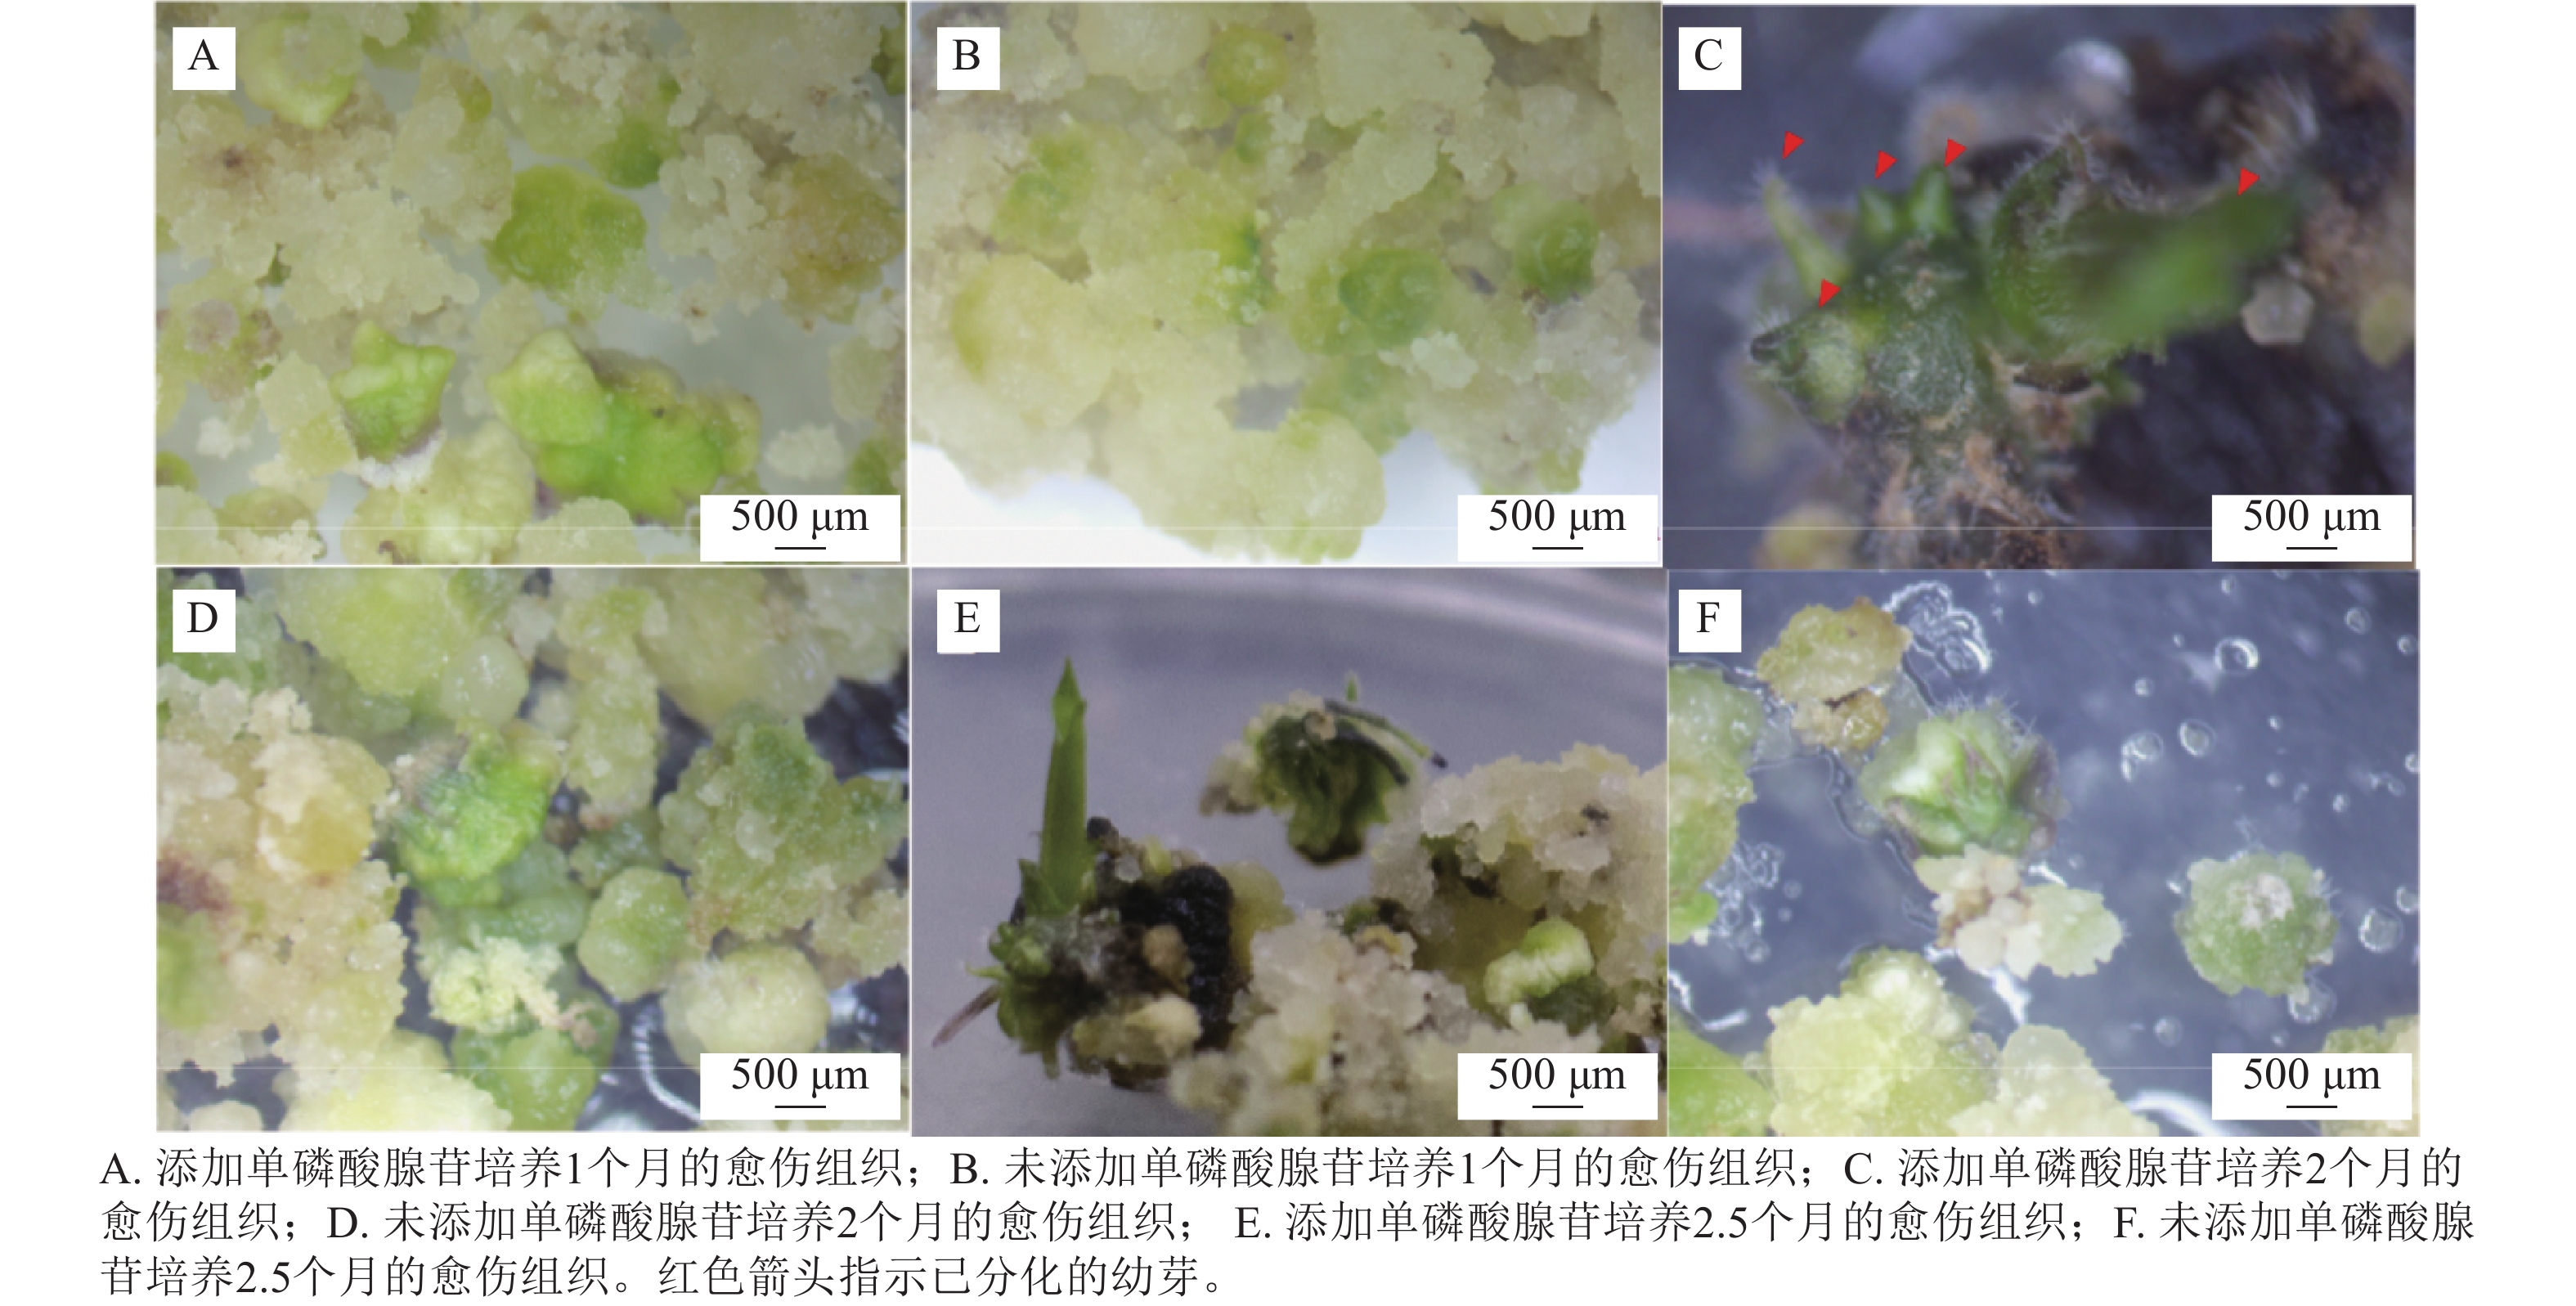
2种基因型的毛竹愈伤组织在含1 mmol·L−1单磷酸腺苷的分化培养基上培养1个月后,均出现分化芽点(图7A);而未添加单磷酸腺苷的对照组仅形成绿色小点,分化进程延迟约0.5个月(图7B)。培养2个月时,单磷酸腺苷处理组芽点明显增大(图7C);而对照组则和单磷酸腺苷处理组1个月时状态相似,开始有芽点产生(图7D)。培养2.5个月时,单磷酸腺苷处理组已分化出根和芽(图7E),而对照组的分化状态和培养2个月时的状态无明显差异(图7F)。可见,1 mmol·L−1单磷酸腺苷处理可使毛竹愈伤组织分化进程提前。
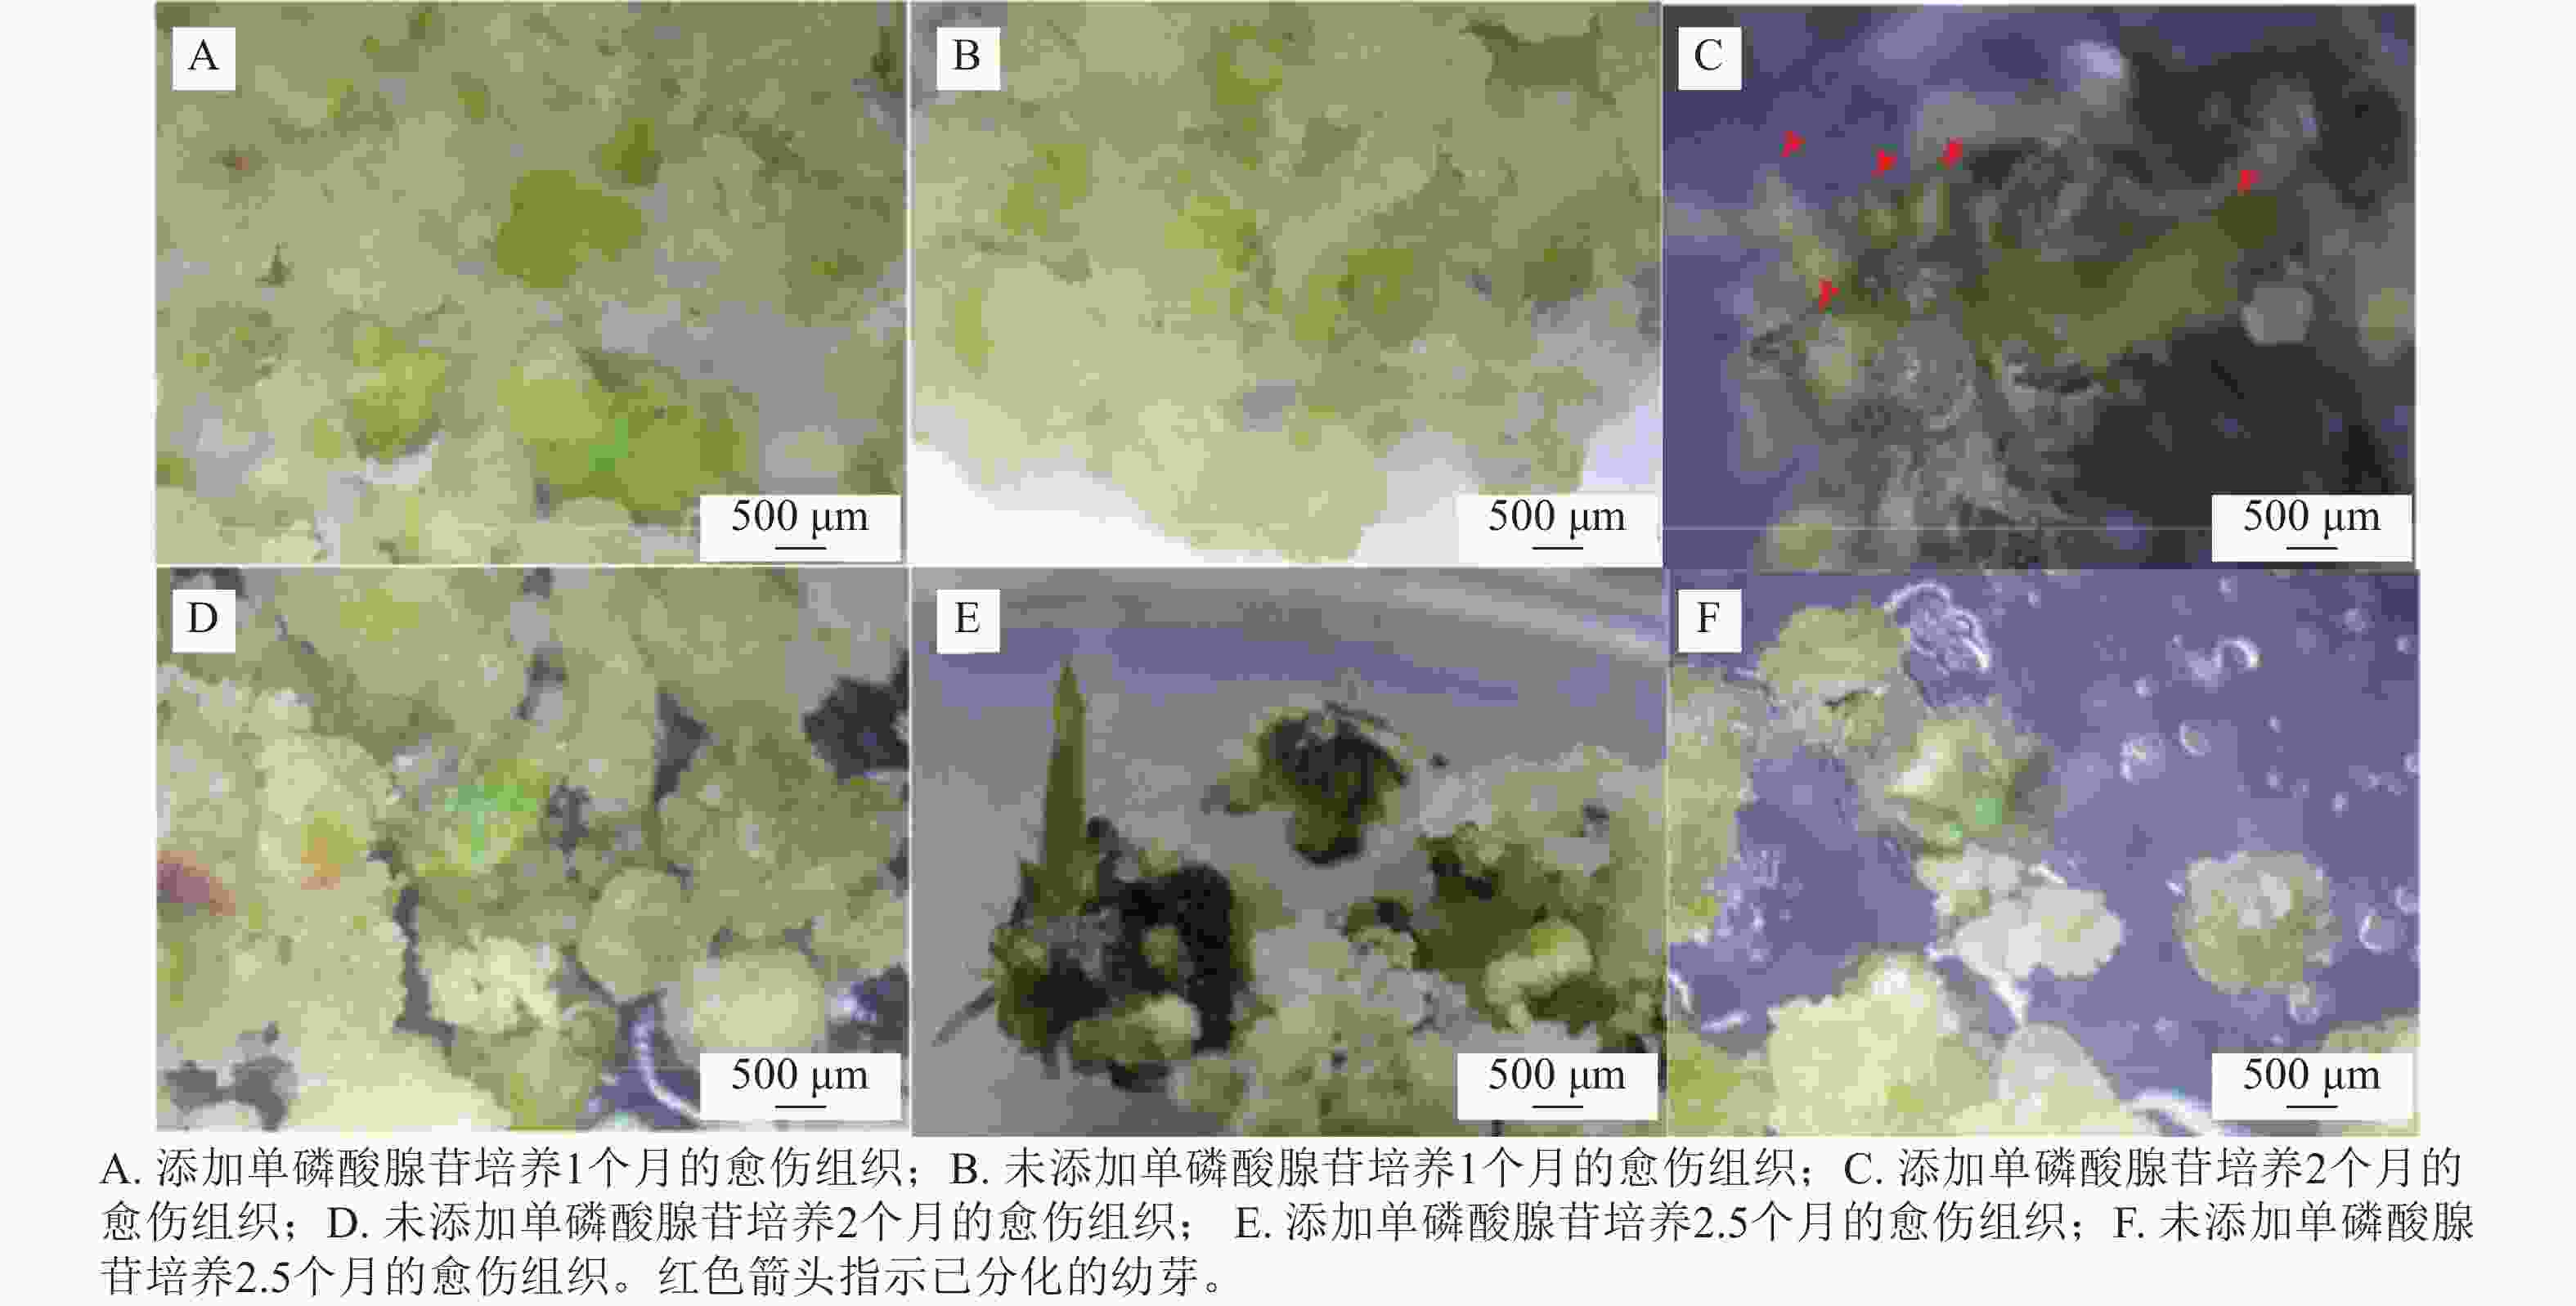
图 7 1 mmol·L−1单磷酸腺苷处理不同时间后毛竹愈伤组织不定芽诱导的表型
Figure 7. Phenotypic induction of adventitious shoots in P. edulis callus fter different time treatment with 1 mmol·L−1 adenosine monophosphate
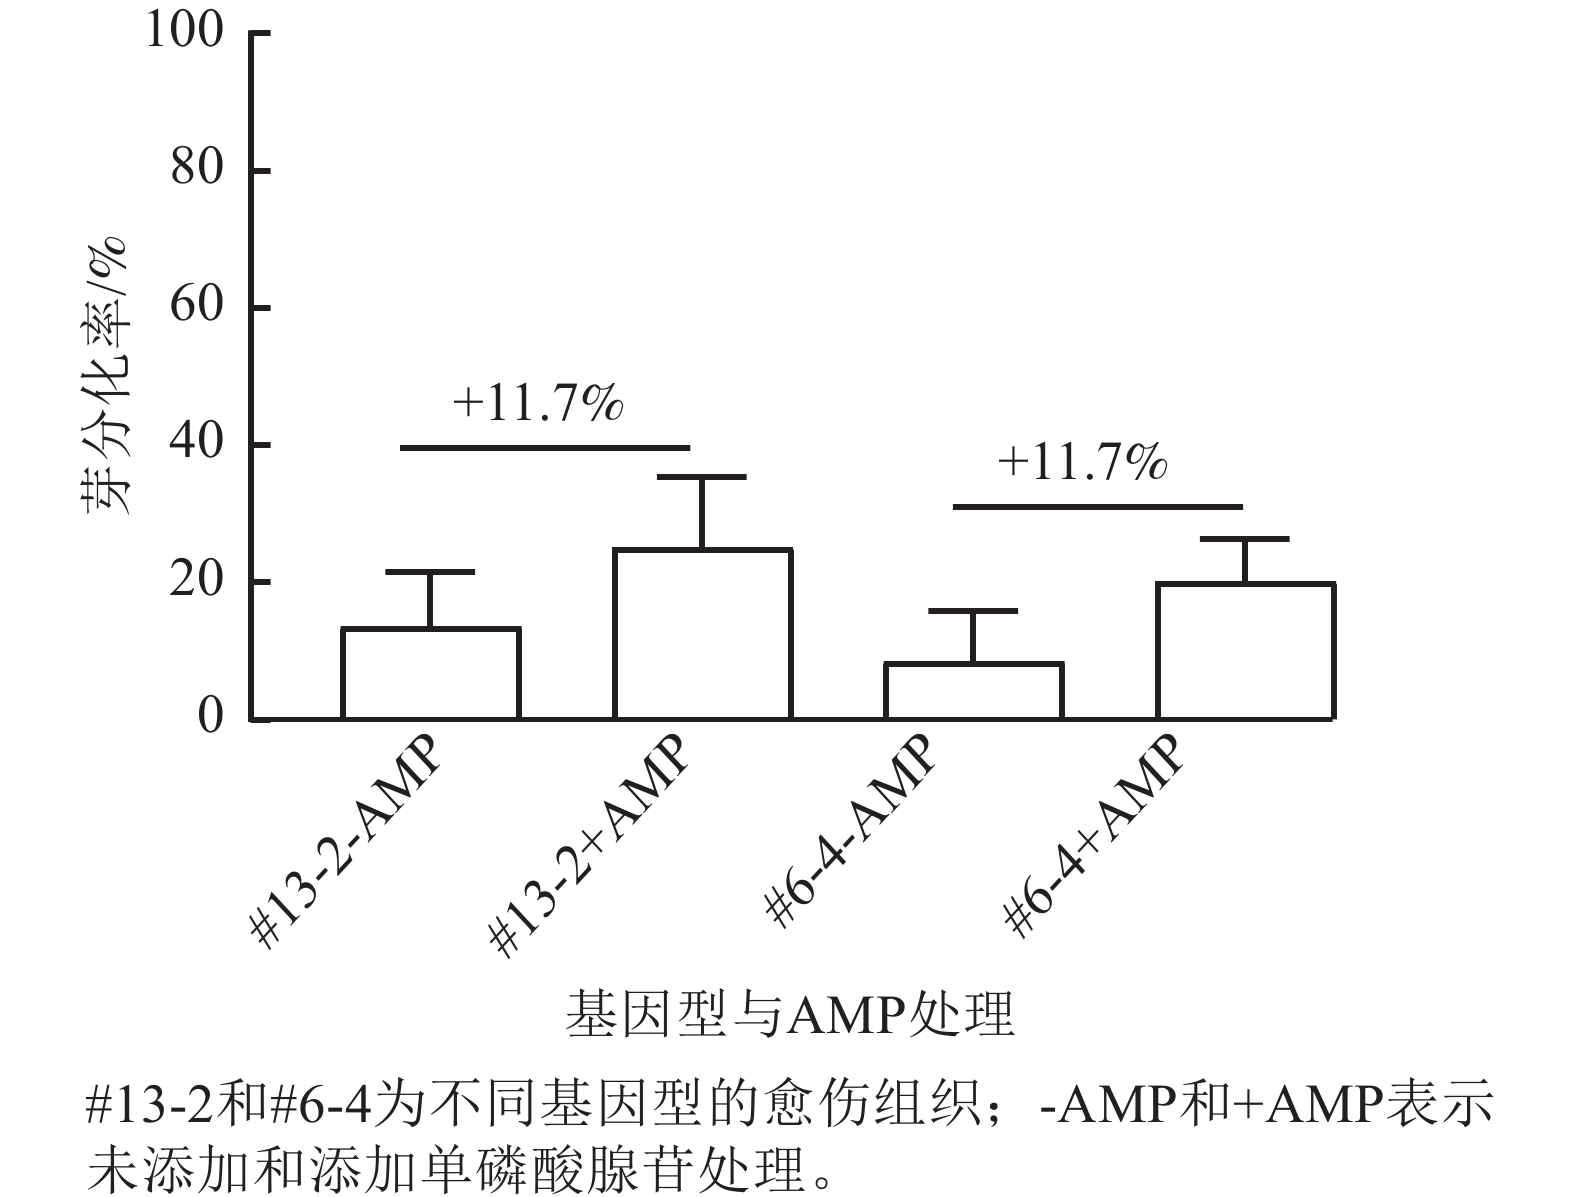
培养3个月后,统计2种基因型的芽分化率(图8)。相对易分化的基因型#13-2,其对照组(未添加单磷酸腺苷)分化率为13.3%,处理组(添加1 mmol·L−1单磷酸腺苷)为25.0%;而相对难分化的基因型#6-4,其对照组分化率为8.3%,处理组为20.0%。可见,2种基因型在添加单磷酸腺苷后,分化率均提高了11.7%,表明单磷酸腺苷对不同基因型愈伤组织的分化均具有促进作用。此外,在各处理条件下,基因型#13-2的分化率均高于基因型#6-4,说明基因型也是影响毛竹愈伤组织分化率的重要因素。
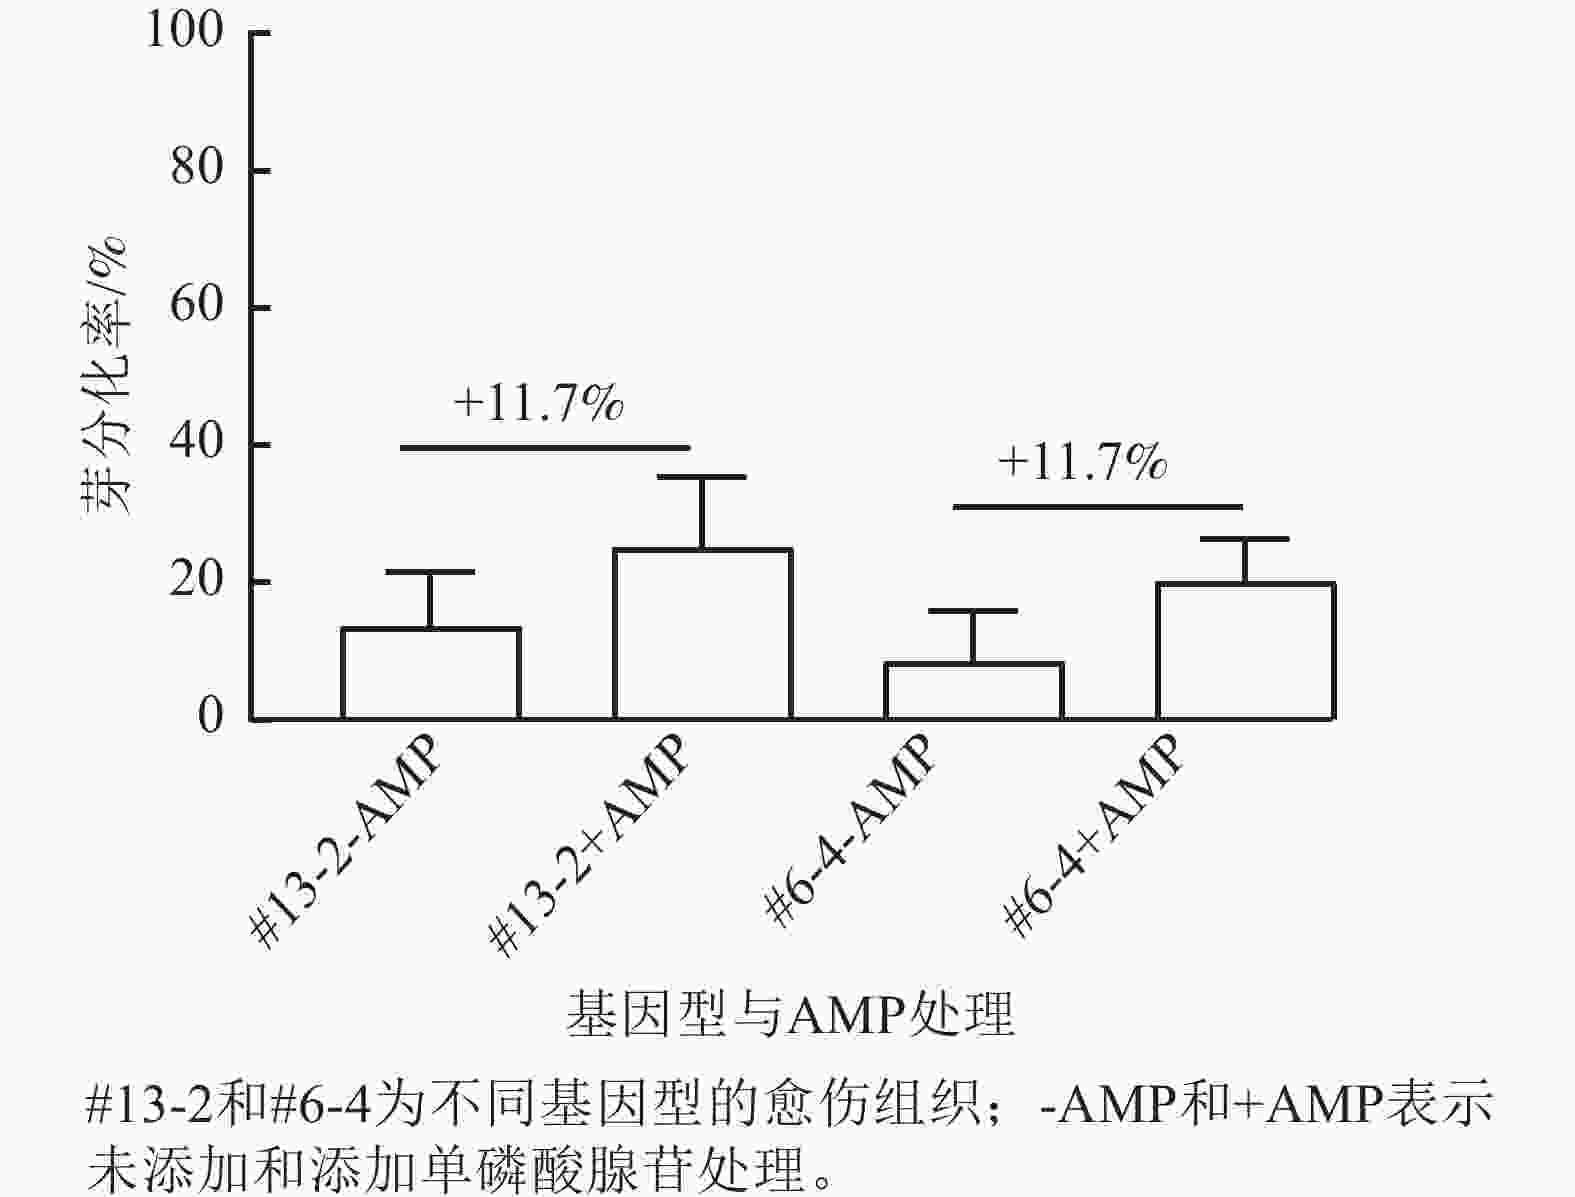
图 8 1 mmol·L−1单磷酸腺苷对毛竹愈伤组织分化率的影响
Figure 8. Effect of 1 mmol·L−1 adenosine monophosphate on the differentiation rate of P. edulis callus
-
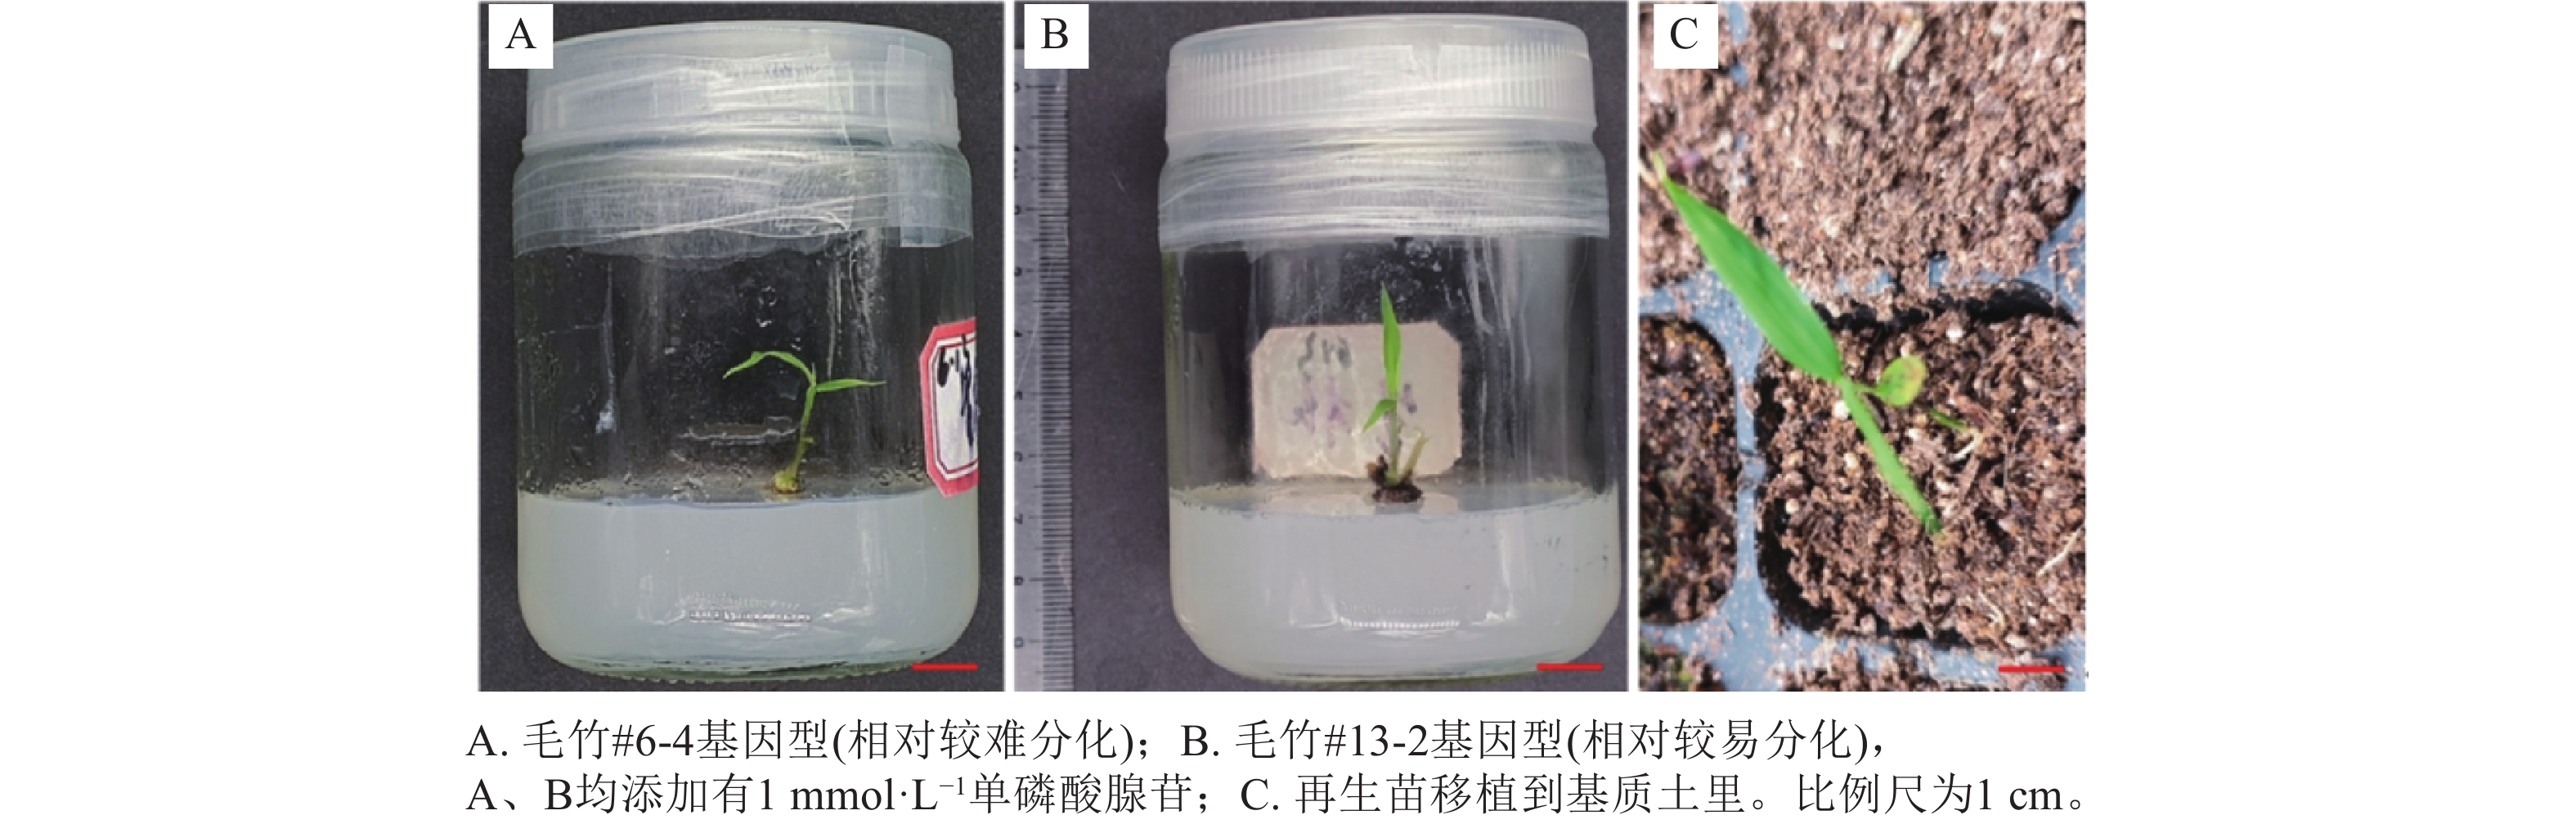
当分化出的不定芽生长至2~3 cm时,将其连同附着的愈伤组织一起转移到生根培养基中诱导生根,培养5周后,再生植株生根率达30% (图9A~B)。
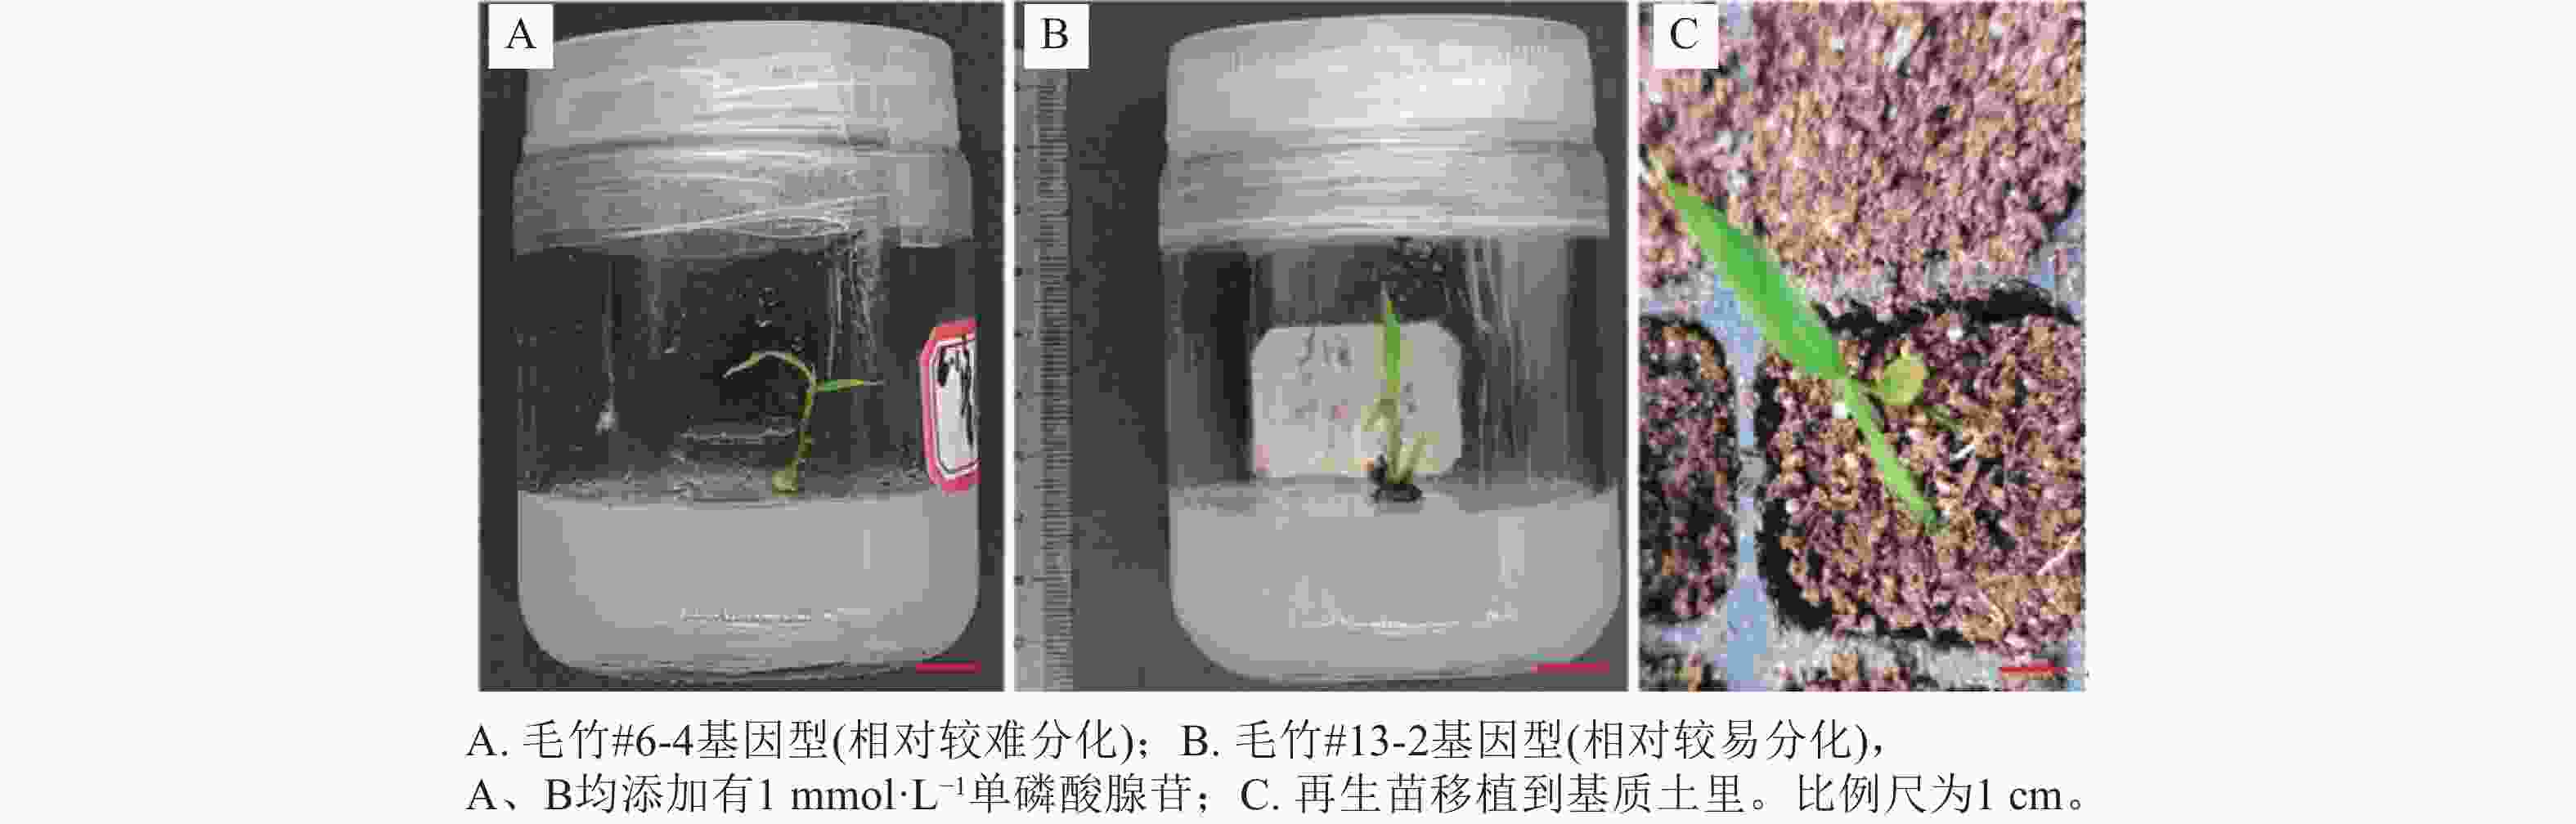
图 9 毛竹再生苗的获得
Figure 9. Regeneration of P. edulis plantlets
-
将无菌培养瓶中的再生苗开盖,于温度为(25±1)℃、湿度为75%的培养箱中驯化3 d,随后用25 ℃清水洗去根部残留培养基,移栽至以木村营养液浇透的市售混合基质中,并置于相同环境条件下继续培养。驯化期间,叶片因蒸腾失水易发生萎蔫,可适度喷水或剪除部分叶片以减少蒸腾面积,从而避免再生苗因环境变化而死亡。按此流程操作,再生苗成活率接近100% (图9C)。
-
针对外植体灭菌的难题,本研究统计了不同处理时长下,20%、25%次氯酸钠(体积分数)溶液与75%乙醇(体积分数)溶液组合使用的灭菌效果。结果表明:当采用75%乙醇消毒45 s、再以25%次氯酸钠溶液真空抽滤处理25 min时,毛竹种胚的消毒效果最佳,未污染率可达90%,优于其他处理组合。目前在毛竹种子的常规消毒处理中,常用的方法包括高锰酸钾消毒法、次氯酸钠消毒法[9]、氯气消毒法、升汞消毒法[10−11]、乙醇联合次氯酸钠消毒法[12],以及多种消毒方式组合使用的方案[6, 13]。高锰酸钾、氯气及氯化汞等均为高危险性化学试剂,在实际操作中不仅存在安全隐患,且易造成环境污染,其后续废液处理亦较为繁琐。相比之下,本方案在实现较高未污染率的同时,有效规避了上述风险与处理负担。乙醇的浸润作用能促进次氯酸钠渗入种皮缝隙,而真空抽滤则进一步增强了消毒试剂与种皮的接触效率,两者协同提高了灭菌效果。此外,剥取完整、饱满且无破损的毛竹未成熟胚,是保障后续愈伤组织诱导效率的重要前提。
-
毛竹愈伤组织分为胚性和非胚性愈伤组织。胚性愈伤组织细胞分裂能力旺盛,容易再分化成植株,而非胚性愈伤组织前期生长较快,但随着生长会慢慢褐化坏死,丧失再生能力[14−15]。本研究通过优化培养基配方,将毛竹胚性愈伤组织的诱导率提升至73%,明显高于先前毛竹再生研究中所报道的60%[5]。这一结果表明:本体系在愈伤组织获取效率方面具有明显优势,可为后续分化培养及遗传转化研究提供良好的材料基础。胚性愈伤组织的诱导依赖于外源激素配比与内源激素的协同调控。已有研究表明:2,4-D与6-BA的协同作用可抑制酚类氧化酶活性,减少褐化,并维持细胞持续分裂能力[16],这与本研究结果一致。
-
在毛竹愈伤组织诱导配方的基础上,本研究分别添加了0.2、0.5、2.0、8.0 mg·L−1的灭草烟进行对比试验。结果表明:与不添加灭草烟的对照相比,各添加处理均能有效减少愈伤组织的褐化现象,使其呈现乳白色或淡黄色的胚性愈伤组织状态,从而维持较高的再生潜力。而采用不含灭草烟的诱导配方进行继代培养时,愈伤组织虽能维持生长,但生长缓慢、状态较差,颜色呈暗黄色,且褐化死亡现象较为严重。目前,诸多研究证实除草剂可有效促进植物愈伤组织的诱导与培养,这类应用已在多种作物中得到验证。比如常见的2,4-D广泛应用于各类植物愈伤组织的诱导[17];水稻Oryza sativa幼胚愈伤组织培养中低浓度甲氧咪草烟(IMI)可显著提高愈伤组织成活率、丛生芽分化率及生根率[18];在小麦Triticum aestivum成熟胚愈伤组织诱导中,4 mg·L−1麦草畏(dicamba)的再生率优于2,4-D[19];GNASEKARAN等[20]在姜Zingiber officinale愈伤组织诱导研究表明:添加8 mg·L−1毒莠定(picloram)的培养基可获得最高的愈伤诱导频率及最大的生物量积累。除草剂促进愈伤组织培养的作用机制,主要体现在缓解褐化与调控分化2个核心方面。在缓解褐化方面,除草剂可通过调节细胞分裂和抗氧化酶活性,减少褐化现象[21];其中灭草烟可能通过类似机制抑制多酚氧化酶等褐化相关酶的活性,从而维持愈伤组织的活力。在调控分化层面,胚性愈伤组织的形成通常与激素平衡及细胞分裂模式相关[22];而灭草烟可能通过调节内源激素水平如增加细胞分裂素活性或降低生长素抑制作用,进一步诱导毛竹愈伤组织向胚性状态分化。
-
本研究在外源添加单磷酸腺苷的条件下,观察到毛竹愈伤组织芽再生效率显著提升,再生周期较对照缩短约30 d,表明单磷酸腺苷对毛竹这类再生困难的植物具有促进再生的作用。
在植物组织培养领域,众多植物种类在离体培养过程中存在从头器官发生障碍,导致其难以通过遗传操作进行有效改良[23]。针对这类组织培养顽固型物种,外源施加代谢物、多肽或小分子物质已被证实为一种有效策略,能够推动细胞命运转变,进而突破再生障碍。研究表明:在拟南芥Arabidopsis thaliana中,胚性愈伤组织的单磷酸腺苷含量高于非胚性愈伤组织,并且发现单磷酸腺苷可通过调控PLETHORA (PLT)转录因子家族,显著增强植物愈伤组织的再生能力,尤其在传统再生困难的物种中效果显著[8]。PLT家族是维持干细胞活性并驱动愈伤组织向根或芽分化的核心调控因子[24],且外源单磷酸腺苷处理后,PLT基因表达显著上调,PLT突变体中单磷酸腺苷无法促进再生[25]。从分子机制层面深入分析,低能量状态是导致植物愈伤组织再生失败的重要原因。单磷酸腺苷通过激活SnRK1激酶触发下游多重信号通路:一方面直接促进PLT基因表达,另一方面通过促进生长素运输或加速AUX/IAA抑制因子降解,增强生长素响应因子(ARF)的活性;ARF既可与PLT协同调控下游靶基因,又可与细胞分裂素信号通路中的Type-A响应调节因子(ARRs)发生互作,提高细胞对分裂素的响应效率,重新分配代谢资源,优先支持细胞分裂和分化所需的能量供应,从而克服再生障碍,促进芽再生[26]。本研究进一步拓展了单磷酸腺苷的应用范围,提示单磷酸腺苷促进再生的机制在毛竹中可能同样保守。后续可通过PLT基因表达分析及SnRK1活性检测对本研究中的调控通路作进一步验证。这为毛竹及其他再生困难植物的组织培养与遗传改良提供了全新的技术途径。
-
本研究以毛竹未成熟胚为试验材料,系统优化了外植体灭菌、愈伤组织诱导、增殖、分化及生根等核心环节,成功建立了毛竹未成熟胚愈伤组织诱导与植株再生体系,实现了从外植体到完整再生植株的全程贯通。该体系中,体积分数75%乙醇结合25%次氯酸钠溶液真空抽滤可实现安全高效的灭菌,0.2~8.0 mg·L−1的灭草烟可促进愈伤组织致密化增殖,外源施加1 mmol·L−1单磷酸腺苷可显著提高芽分化效率,不定芽在生根培养基上诱导的生根率为30%,再生苗经驯化后成活率高,各环节协同构成了完整的毛竹组织培养再生技术体系。本研究为毛竹良种快繁与遗传转化研究提供了技术支撑,也为其他再生困难的竹类植物组织培养体系的构建提供了参考。
Synergistic optimization of in vitro regeneration system of Phyllostachys edulis by imazapyr and adenosine monophosphate
-
摘要:
目的 毛竹Phyllostachys edulis作为重要的森林资源,其再生体系存在再生周期长、效率低、愈伤增殖慢等瓶颈问题。本研究通过优化外植体消毒方法,探究灭草烟和单磷酸腺苷对愈伤组织增殖和分化的影响,以建立高效、完整的毛竹组织培养再生体系。 方法 以毛竹未成熟种子为外植体,设置75%乙醇(体积分数)处理时间(30、45、60 s)与次氯酸钠溶液(体积分数20%、25%)共6种消毒组合,通过比较污染率筛选最优消毒方案;在愈伤组织继代培养基中分别添加0.2~8.0 mg·L−1灭草烟,探究不同质量浓度灭草烟对愈伤组织增殖的影响;在芽分化培养基中分别添加0、1、2、3、4 mmol·L−1单磷酸腺苷,比较2种基因型(#13-2和#6-4)愈伤组织的分化效率。 结果 75%乙醇消毒45 s,转入25%次氯酸钠溶液中,0.1 MPa真空处理25 min,污染率可降至10%,在所有处理中效果最优;毛竹未成熟胚愈伤组织诱导培养基优化后,状态优良的黄白色致密愈伤组织获得率为73%;在毛竹愈伤组织继代培养基中添加0.2~8.0 mg·L−1灭草烟均得到增殖状态良好的白色或淡黄色致密愈伤组织,其中以0.5 mg·L−1的增殖效果最佳。在分化培养基中添加1 mmol·L−1单磷酸腺苷,能有效促进毛竹愈伤组织芽分化,其分化率(22.50%±8.66%)显著高于未添加对照组(10.83%±7.93%)(P<0.05);2种基因型分化能力存在差异,基因型#13-2的芽分化率为25.0%,高于基因型#6-4 (20.0%)。生根培养基生根率为30%,再生苗驯化成活率达100%。 结论 外植体消毒方案的优化、灭草烟对愈伤组织增殖的促进与单磷酸腺苷对不定芽分化的调控,共同支撑了毛竹未成熟胚高效再生体系的建立,其中灭草烟与单磷酸腺苷分别作用于增殖和分化阶段,分环节协同提升再生效率。图9表1参26 Abstract:Objective Moso bamboo (Phyllostachys edulis) is an important forest resource whose regeneration system faces bottleneck problems including long regeneration cycles, low efficiency, and slow callus proliferation. This study aimed to construct an efficient and complete tissue culture regeneration system for Moso bamboo by optimizing explant disinfection methods and investigating the effects of different concentrations of imazapyr and adenosine monophosphate (AMP) on callus proliferation and differentiation. Method Immature seeds of Moso bamboo were used as explants. 6 disinfection combinations were established using 75% (V/V) ethanol treatment durations (30, 45, and 60 s) and sodium hypochlorite concentrations (20% and 25%, V/V), with the optimal disinfection protocol selected based on contamination rates. Imazapyr at concentrations of 0.2−8.0 mg·L−1 was added to the callus subculture medium to evaluate its effects on callus proliferation. AMP at concentrations of 0, 1, 2, 3, and 4 mmol·L−1 was supplemented to the shoot differentiation medium to compare the differentiation efficiency between 2 genotypes (#13-2 and #6-4). Result Disinfection with 75% ethanol for 45 s, followed by transfer to 25% sodium hypochlorite solution and vacuum treatment at 0.1 MPa for 25 min, yielded the best results, reducing the contamination rate to 10%. After optimization of the callus induction medium for immature embryos, the acquisition rate of well-developed yellowish-white, compact calli reached 73%. Addition of 0.2−8.0 mg·L−1 imazapyr to the subculture medium consistently produced well-proliferating white or light yellow compact calli, with 0.5 mg·L−1 yielding the optimal proliferation effect. Supplementation of the shoot differentiation medium with 1 mmol·L−1 AMP significantly promoted callus differentiation, achieving a shoot differentiation rate of 22.50%± 8.66%, which was significantly higher than that of the control without AMP (10.83%±7.93%). The differentiation capacity differed between the two genotypes, with genotype #13-2 exhibiting a shoot differentiation rate of 25.0%, higher than that of genotype #6-4 (20.0%). The rooting rate in the rooting medium was 30%, and the survival rate of acclimatized plantlets reached 100%. Conclusion The optimization of explant disinfection protocols, the promotion of callus proliferation by imazapyr, and the regulation of adventitious shoot differentiation by AMP collectively support the establishment of an efficient regeneration system for immature embryos of Moso bamboo, in which imazapyr and AMP act on the proliferation and differentiation stages, respectively, synergistically enhancing regeneration efficiency in a stage-specific manner. [Ch, 9 fig. 1 tab. 26 ref.] -
图 1 不同消毒方法对毛竹胚未污染率的影响
Figure 1 Effect of different sterilization methods on the non-contamination rate of P. edulis embryos
图 3 以毛竹未成熟胚为外植体的愈伤组织诱导
Figure 3 Induction of callus using immature embryos of P. edulis as explants
图 4 不同质量浓度灭草烟处理1个月对毛竹愈伤组织增殖的影响
Figure 4 Effect of different concentrations of imazapyr with one month treatment on the proliferation of P. edulis callus
图 5 单磷酸腺苷处理20 d时毛竹愈伤组织不定芽分化表型
Figure 5 Adventitious bud differentiation phenotype of P. edulis callus treated with adenosine monophosphate for 20 days
图 6 1 mmol·L−1单磷酸腺苷处理15 d对2种基因型毛竹愈伤组织不定芽的诱导效果
Figure 6 Effect of 1 mmol·L−1 adenosine monophosphate treatment for 15 days on the induction of adventitious shoots in callus tissue of 2 genotypes of P. edulis
图 7 1 mmol·L−1单磷酸腺苷处理不同时间后毛竹愈伤组织不定芽诱导的表型
Figure 7 Phenotypic induction of adventitious shoots in P. edulis callus fter different time treatment with 1 mmol·L−1 adenosine monophosphate
图 8 1 mmol·L−1单磷酸腺苷对毛竹愈伤组织分化率的影响
Figure 8 Effect of 1 mmol·L−1 adenosine monophosphate on the differentiation rate of P. edulis callus
表 1 消毒组合实验方案
Table 1. Combination of disinfection experiments
消毒组合 乙醇处理时间/s 不同体积分数的次氯酸钠处理 1 30 20%,抽真空25 min 2 30 25%,抽真空25 min 3 45 20%,抽真空25 min 4 45 25%,抽真空25 min 5 60 20%,抽真空25 min 6 60 25%,抽真空25 min  下载: 导出CSV
-
[1] RAMAKRISHNAN M, YRJÄLÄ K, VINOD K K, et al. Genetics and genomics of moso bamboo (Phyllostachys edulis): current status, future challenges, and biotechnological opportunities toward a sustainable bamboo industry[J]. Food and Energy Security, 2020, 9(4): e229. DOI: 10.1002/fes3.229. [2] 蒋政勤, 周明兵, 郑浩, 等. 毛竹Phyllostachys edulis retrotransposon 7(PHRE7)转座子的克隆与鉴定[J]. 浙江农林大学学报, 2019, 36(5): 917−927. JIANG Zhengqin, ZHOU Mingbing, ZHENG Hao, et al. Cloning and characterization of a long terminal repeat retrotransposon (Phyllostachys edulis retrotransposon 7) in Phyllostachys edulis[J]. Journal of Zhejiang A&F University, 2019, 36(5): 917−927. DOI: 10.11833/j.issn.2095-0756.2019.05.010. [3] ZHAO Hansheng, SUN Shuai, DING Yulong, et al. Analysis of 427 genomes reveals Moso bamboo population structure and genetic basis of property traits[J]. Nature Communications, 2021, 12: 5466. DOI: 10.1038/s41467-021-25795-x. [4] 项艳, 赵康, 李媛, 等. 毛竹种胚诱导愈伤组织形成的方法: CN104920213B[P/OL]. 2017-03-22. http://epub.cnipa.gov.cn/patent/CN104920213B. XIANG Yan, ZHAO Kang, LI Yuan, et al. Phyllostachys pubescens Embryo Induced Callus Formation Method: CN104920213B[P/OL]. 2017-03-22. http://epub.cnipa.gov.cn/patent/CN104920213B. [5] HUANG Biyun, ZHUO Renying, FAN Huijin, et al. An efficient genetic transformation and CRISPR/Cas9-based genome editing system for Moso bamboo (Phyllostachys edulis)[J]. Frontiers in Plant Science, 2022, 13: 822022. DOI: 10.3389/fpls.2022.822022. [6] 袁斯齐, 邹欢欢, 李子叶, 等. 毛竹种子愈伤组织诱导和增殖研究[J]. 农业与技术, 2025, 45(14): 104−108. YUAN Siqi, ZOU Huanhuan, LI Ziye, et al. Study on callus induction and proliferation of Phyllostachys pubescens seeds[J]. Agriculture & Technology, 2025, 45(14): 104−108. DOI: 10.19754/j.nyyjs.20250730022. [7] LIU Yaning, LI Zhengmao, LI Lixia, et al. Physiological and transcriptomic analysis of Spartina alterniflora in response to imazapyr acid stress[J]. BMC Plant Biology, 2025, 25(1): 630. DOI: 10.1186/s12870-025-06659-8. [8] LEE H G, JANG S Y, JIE E Y, et al. Adenosine monophosphate enhances callus regeneration competence for de novo plant organogenesis[J]. Molecular Plant, 2023, 16(12): 1867−1870. DOI: 10.1016/j.molp.2023.10.004. [9] 江涛, 李晨曦, 陈磊, 等. 毛竹组织培养中成熟种子消毒方法[J]. 江苏农业科学, 2017, 45(4): 103−106. JIANG Tao, LI Chenxi, CHEN Lei, et al. Disinfection method of mature seeds in tissue culture of Phyllostachys pubescens[J]. Jiangsu Agricultural Sciences, 2017, 45(4): 103−106. DOI: 10.15889/j.issn.1002-1302.2017.04.032. [10] 黄碧芸, 卓仁英, 乔桂荣. 毛竹不同类型愈伤组织比较分析[J]. 南京林业大学学报(自然科学版), 2023, 47(6): 141−149. HUANG Biyun, ZHUO Renying, QIAO Guirong. Comparative analysis of different types of callus in Moso bamboo[J]. Journal of Nanjing Forestry University (Natural Sciences Edition), 2023, 47(6): 141−149. DOI: 10.12302/j.issn.1000-2006.202203062. [11] MA Shuai, LI Jin, CHEN Jianying, et al. Research progress and a prospect analysis of asexual bamboo reproduction[J]. Horticulturae, 2023, 9(6): 685. DOI: 10.3390/horticulturae9060685. [12] 黄孝风, 钟秋蔚, 邹娜. 毛竹种子萌发及无菌水培技术研究[J]. 江汉大学学报(自然科学版), 2021, 49(4): 46−52. HUANG Xiaofeng, ZHONG Qiuwei, ZOU Na. Research on seed germination and aseptic hydroponics of Phyllostachys edulis[J]. Journal of Jianghan University (Natural Science Edition), 2021, 49(4): 46−52. DOI: 10.16389/j.cnki.cn42-1737/n.2021.04.006. [13] 潘枫, 邓波, 谢果芮, 等. 一种利用毛竹种胚高效诱导毛竹无菌苗的方法: 中国 CN120113590A [P/OL]. 2025-06-10. https://d.wanfangdata.com.cn/patent/ZL_CN202411830821.8_CN120113590A_20250610. PAN Feng, DENG Bo, XIE Guorui, et al. A Method for Efficiently Inducing Aseptic Seedlings of Phyllostachys edulis Using Seed Embryos: CN120113590A[P/OL]. 2025-06-10. https://d.wanfangdata.com.cn/patent/ZL_CN202411830821.8_CN120113590A_20250610. [14] KONG Simeng, LIU Huan, WANG Kaiting, et al. An efficient embryogenic cell suspension enabling somatic embryogenesis in Phyllostachys edulis[J]. Plant Cell, Tissue and Organ Culture (PCTOC), 2026, 165(1): 28. DOI: 10.1007/s11240-026-03426-x. [15] KUMARI A, BAGRI J, YADAV S K, et al. Integrated metabolomics, transcriptional, and physicochemical analysis reveals key metabolites and genes associated with somatic embryogenesis in Phyllostachys pubescens[J]. Scientific Reports, 2026. DOI: 10.1038/s41598-026-56240-y. [16] 李达旭, 张玉, 刘刚, 等. 禾本科牧草胚性愈伤组织诱导及再生研究进展[J]. 草业与畜牧, 2014(5): 53−57, 62. LI Daxu, ZHANG Yu, LIU Gang, et al. Progress in embryogenic callus induction and regeneration research of gramineous forage[J]. Prataculture & Animal Husbandry, 2014(5): 53−57, 62. DOI: 10.3969/j.issn.1673-8403.2014.05.014. [17] 刘振林, 潘玉霞, 杨盼盼, 等. 人工合成除草剂2,4-D在植物组织培养中的应用进展[J]. 河北科技师范学院学报, 2013, 27(2): 43−47. LIU Zhenlin, PAN Yuxia, YANG Panpan, et al. The applied progress of 2,4-D in plant tissue culture[J]. Journal of Hebei Normal University of Science & Technology, 2013, 27(2): 43−47. DOI: 10.3969/j.issn.1672-7983.2013.02.010. [18] 唐靖雯, 洪文静, 钱晶晶, 等. 叠氮化钠及甲氧咪草烟对水稻幼胚愈伤组织成活、丛生芽分化及生根的影响[J]. 安徽科技学院学报, 2024, 38(6): 33−39. TANG Jingwen, HONG Wenjing, QIAN Jingjing, et al. Effects of sodium azide and methotrexate on callus survival, cluster bud differentiation and rooting of immature embryos of rice[J]. Journal of Anhui Science and Technology University, 2024, 38(6): 33−39. DOI: 10.19608/j.cnki.1673-8772.2024.0605. [19] BAHIELDIN A, DYER W E, QU R. Concentration effects of dicamba on shoot regeneration in wheat[J]. Plant Breeding, 2000, 119(5): 437−439. DOI: 10.1046/j.1439-0523.2000.00523.x. [20] GNASEKARAN P, RAHMAN Z A, CHEW B L, et al. Picloram enhanced the callus induction, growth kinetics, antioxidant potentials, and secondary metabolites production of Zingiber officinale var. rubrum callus cultures[J]. Plant Cell, Tissue and Organ Culture (PCTOC), 2023, 155(3): 843−859. DOI: 10.1007/s11240-023-02603-6. [21] 温银元, 郭平毅, 尹美强, 等. 扑草净对远志幼苗根系活力及氧化胁迫的影响[J]. 生态学报, 2012, 32(8): 2506−2514. WEN Yinyuan, GUO Pingyi, YIN Meiqiang, et al. Effect of prometryne on root activity and oxidative stress of Polygala tenuifolia Willd. seedling roots[J]. Acta Ecologica Sinica, 2012, 32(8): 2506−2514. DOI: 10.5846/stxb201109281427. [22] SUO Jingqi, ZHOU Chenlu, ZENG Zhanghui, et al. Identification of regulatory factors promoting embryogenic callus formation in barley through transcriptome analysis[J]. BMC Plant Biology, 2021, 21(1): 145. DOI: 10.1186/s12870-021-02922-w. [23] BIDABADI S S, JAIN S M. Cellular, molecular, and physiological aspects of in vitro plant regeneration[J]. Plants, 2020, 9(6): 702. DOI: 10.3390/plants9060702. [24] ZHAI Ning, XU Lin. Pluripotency acquisition in the middle cell layer of callus is required for organ regeneration[J]. Nature Plants, 2021, 7(11): 1453−1460. DOI: 10.1038/s41477-021-01015-8. [25] YIN Ruilian, CHEN Ruiying, XIA Keke, et al. A single-cell transcriptome atlas reveals the trajectory of early cell fate transition during callus induction in Arabidopsis[J]. Plant Communications, 2024, 5(8): 100941. DOI: 10.1016/j.xplc.2024.100941. [26] ZHANG Shiqi, YU Ruixue, YU Dongxue, et al. The calcium signaling module CaM-IQM destabilizes IAA-ARF interaction to regulate callus and lateral root formation[J]. Proceedings of the National Academy of Sciences of the United States of America, 2022, 119(27): e2202669119. DOI: 10.1073/pnas.2202669119. -

-
链接本文:
https://zlxb.zafu.edu.cn/article/doi/10.11833/j.issn.2095-0756.20260148
 点击查看大图
计量
- 文章访问数: 6
- HTML全文浏览量: 1
- PDF下载量: 0
- 被引次数: 0
